

Выращивание раков повышает разнообразие почвенных микроорганизмов: сравнение двух моделей севооборота
Интегрированное с рисом земледелие (IFA), как давно признанная сельскохозяйственная модель, может эффективно повышать продуктивность сельского хозяйства и обеспечивать экологические преимущества. Севооборот рис–пшеница и севооборот рис–раки (Procambarus clarkii) являются двумя наиболее широко применяемыми моделями IFA в Китае. В данном исследовании мы сравнили различия в почвенных микробных сообществах и предсказали их функции в этих двух моделях IFA путём секвенирования 16S рРНК и анализа биоинформации.
Аннотация
Результаты показали, что выращивание раков эффективно увеличивало численность и разнообразие почвенных микроорганизмов. Основными филами с различной представленностью между двумя группами были Actinobacteriota, Bacteroidota и Desulfobacterota, тогда как основными различающимися родами были Bacteroidetes_vadinHA17, Sphingomonas и Thiobacillus. Анализ процентного сходства (SIMPER) показал, что эти виды также вносили наибольший вклад в различия в микробном составе между двумя группами. Анализ предсказания методом случайного леса был использован для выявления потенциальных биомаркеров для различения двух микробных сообществ. Actinobacteriota, Desulfobacterota и Spirochaetota были идентифицированы как потенциальные филы-биомаркеры. Streptomyces, Kribbella и Paludibacter могли бы служить потенциальными родами-биомаркерами. Анализ функциональной аннотации прокариотических таксонов (FAPROTAX) выявил, что доминирующими бактериальными функциями в модели севооборота рис–пшеница были аэробная хемогетеротрофия и хемогетеротрофия. Напротив, бактериальные функции в модели севооборота рис–раки были более разнообразными, включая в первую очередь метилотрофию, все патогены человека и метанотрофию. Результаты анализа сети совместной встречаемости показали, что выращивание раков повышало модульность почвенного микробного сообщества, а также выявили, что микробная сеть в почве риса–пшеницы имела меньше узлов и больше рёбер, что указывает на более тесные внутренние связи. В заключение, выращивание пшеницы и выращивание раков обусловливали значительные различия в почвенных микробных сообществах рисовых полей, причём Actinobacteriota и Desulfobacterota были идентифицированы как потенциальные биомаркеры. По сравнению с возделыванием пшеницы, система севооборота с включением выращивания раков повышала богатство и разнообразие видов и функций почвенных микроорганизмов, увеличивала модульность микробного сообщества и способствовала присутствию ключевых видов с соединяющей ролью. Наше исследование не только прояснило бы влияние различных моделей IFA на почвенные микробные сообщества, но также должно предоставить ценные сведения для будущей корректировки схем возделывания и контроля текущих проблем почвенной микробной экологии.
1 Введение
Интегрированное рисоводство предполагает введение других видов в рисовые поля для полного использования земли, воды и других экологических ресурсов (Li и др., 2018; Hu и др., 2021). Оно дополнительно использует взаимодействия между организмами для построения экологических сетей, обеспечивая циркуляцию питательных веществ в рисовых полях и снижая потребность в дополнительных вложениях корма, тем самым способствуя устойчивому сельскому хозяйству (Bashir и др., 2020). Интегрированное выращивание риса и аквакультурных животных (IFRAA) объединяет возделывание риса с аквакультурой, такой как утки, рыба, крабы и черепахи (Hu и др., 2013; Zhang и др., 2016; Yang и др., 2018; Zhang и др., 2023). Традиционная система совместного выращивания риса и рыбы имеет историю более 1200 лет (Ge и др., 2023). IFRAA считается способной повысить использование земельных и водных ресурсов, получить больше сельскохозяйственной продукции и снизить выбросы парниковых газов (Bashir и др., 2020). Внедрение IFRAA может быть сельскохозяйственной моделью, которая улучшает производственные показатели и экологические преимущества (Fang и др., 2023; Liu и др., 2024), обозначая важное направление развития современного интенсивного сельского хозяйства (Zhu и др., 2022).
Среди нескольких моделей IFRAA модель совместного выращивания риса и раков (Procambarus clarkii) даёт наибольшую экономическую выгоду (Xu и др., 2022). Эта модель выращивания возникла в Луизиане, США (Si и др., 2017). В последние годы эта модель быстро развивалась и широко применялась в Китае (Ge и др., 2023), став крупнейшей по площади среди моделей IFRAA в Китае (Xu и др., 2022). Исследования уже показали, что интегрированная модель выращивания риса и раков обеспечивает значительные экологические преимущества. Остатки корма и экскременты, производимые раками, могут служить отличными источниками биологических удобрений, помогая увеличить содержание питательных веществ в почве, таких как азот, фосфор и калий (Wang и др., 2023). Роющая деятельность раков может усиливать вертикальный обмен веществ (Si и др., 2018), увеличивая содержание органического углерода, азота и калия в почве на глубине ниже 20 см, снижая объёмную плотность почвы, улучшая свойства почвы и увеличивая биомассу и глубину корней риса (Si и др., 2017). Кроме того, интегрированная модель выращивания риса и раков способствует повышению разнообразия почвенных микроорганизмов и накоплению биомассы (Li и др., 2022).
Внутренние факторы интегрированной модели выращивания риса и раков сложно связаны и опосредованы экологическими сетями (Xu и др., 2022). Микроорганизмы, будучи наиболее распространёнными, активными и чувствительными компонентами почвы, обладают разнообразной генетической и метаболической информацией. Следовательно, они могут эффективно отражать изменения окружающей среды. Почвенные микроорганизмы играют ключевую роль в переносе веществ и энергии в геохимических циклах (Mendes и др., 2013) и часто используются в качестве ключевых индикаторов для оценки здоровья почвенной экосистемы и качества почвы. Изучение структуры сообщества почвенных микроорганизмов помогает понять круговороты веществ и оценить качество почвы (Schofield и др., 2018). Многочисленные исследования уже изучали экологические микроорганизмы в интегрированных моделях выращивания риса и раков. Было обнаружено, что выращивание раков в рисовых полях может повысить альфа-разнообразие экологических микроорганизмов в краткосрочной перспективе (Wang Y. и др., 2021), а плотность посадки может изменять состав и разнообразие почвенных бактерий (Hou и др., 2024). Однако по сравнению с измерением микробного разнообразия анализ микробных сетей совместной встречаемости обеспечивает более полное отражение влияния изменений окружающей среды на микроорганизмы (Prosser и др., 2007; Barberan и др., 2012). Это связано с тем, что микробные сообщества включают сложные взаимодействия, как прямые, так и косвенные, которые сложно идентифицировать по отдельности. Сети совместной встречаемости могут интегрировать эти взаимодействия и идентифицировать и количественно оценивать их (Proulx и др., 2005; Karimi и др., 2017), тем самым дополнительно раскрывая функции и экологические ниши некультивируемых микроорганизмов.
Севооборот рис–пшеница, как важный метод производства зерна, давно широко практикуется в юго-восточных регионах Китая (Zheng и др., 2000). В настоящее время большинство исследований сосредоточены на сравнении экологических микроорганизмов в системах монокультуры риса и совместного выращивания риса и раков, в то время как исследование комплексных моделей использования рисовых полей, таких как севооборот рис–раки и севооборот рис–пшеница, остаётся ограниченным. Данное исследование было направлено на изучение влияния посева пшеницы и выращивания раков в период севооборота на состав и функцию почвенных микробных сообществ. Мы предположили, что посев пшеницы или выращивание раков в период севооборота может значительно изменить типы и количество почвенных микроорганизмов, тем самым изменяя их экологические функции, сети совместной встречаемости и воздействуя на сельскохозяйственную среду. Для проверки этой гипотезы были получены образцы почвы из моделей севооборота рис–пшеница и рис–раки в провинции Цзянсу, юго-восточный Китай, исследована структура микробного сообщества и экологические сетевые связи в почве, а также оценено влияние различных схем севооборота на почвенные микробные сообщества.
2 Экспериментальные методы
2.1 Полевые условия и сбор образцов
Экспериментальный участок располагался в уезде Баоин, город Янчжоу, провинция Цзянсу (33°17′N, 119°36′E). Этот регион имеет субтропический муссонный климат со среднегодовым количеством осадков 966 мм, 2181 ч солнечного сияния и среднегодовой температурой 14,4°C. Эксперимент был организован в двух группах: модель севооборота рис–пшеница (группа RW) и модель севооборота рис–раки (группа RC). Каждая группа имела три смежных повторных участка. Сорта риса были все Nanjing 9108. Практики выращивания для группы севооборота рис–пшеница были следующими (Рисунок 1): пшеница высевалась с ноября по июнь следующего года, рис высаживался с июня по октябрь. Поля вспахивались и удобрялись химическими удобрениями после каждого урожая. Практики выращивания для группы севооборота рис–раки были следующими (Рисунок 1): 300 кг/га личинок раков выращивались с марта по июнь, поля высушивались после выращивания раков, и вносились химические удобрения, рис высаживался с июня по октябрь. Внесение удобрений было таким же, как в модели севооборота рис–пшеница: 350 кг/га химического удобрения (N: P: K, 17:13:15) вносилось перед посадкой риса. Такое же внесение удобрений проводилось перед посевом пшеницы. На каждом участке применялись соответствующие практики выращивания более 3 лет.
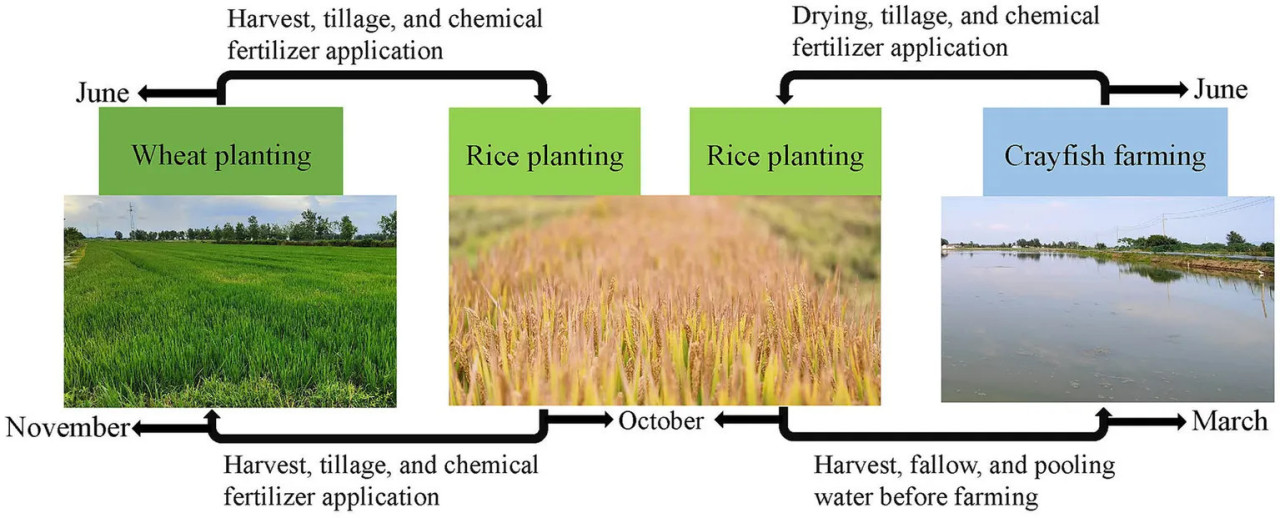
Рисунок 1 Практики выращивания для моделей севооборота рис–пшеница и рис–раки.
Образцы почвы были собраны 14 июня 2023 года. Этот момент времени был после завершения севооборота в обеих моделях и перед посадкой риса. Три точки были взяты методом диагонали на каждом участке. Образцы поверхностной почвы собирались в пределах 10 × 10 м в каждой точке на глубине 0–20 см. Каждая группа содержала девять образцов, всего было получено 18 образцов. Полученные образцы транспортировались в лабораторию на сухом льду, и экстракция почвенной ДНК проводилась как можно скорее.
2.2 Экстракция ДНК и высокопроизводительное секвенирование
Общая геномная ДНК почвы из образцов экстрагировалась с помощью Power Soil DNA Isolation Kit (MoBio Laboratories, Калифорния, США). Концентрация ДНК определялась спектрофотометром Nanodrop 2000 (Thermo, Массачусетс, США). Чистота и целостность оценивались с помощью электрофореза в 1% агарозном геле. В соответствии с концентрацией ДНК разбавлялась до 1 нг/мкл с использованием стерильной воды. Область V3-V4 генов 16S рРНК амплифицировалась с помощью универсального набора праймеров 338F (5′-ACTCCTACGGGAGGCAGCAG-3′) и 806R (5′-GGACTACHVGGGTWTCTAAT-3′). Все реакции ПЦР проводились в 30 мкл реакциях с 15 мкл High-Fidelity PCR Master Mix (New England Biolabs, Массачусетс, США); 0,2 мкМ прямого и обратного праймеров и около 10 нг матричной ДНК. Условия термоциклирования были следующими: предварительная денатурация при 98°C в течение 1 мин, денатурация при 98°C в течение 10 с, отжиг при 50°C в течение 30 с и элонгация при 72°C в течение 30 с, всего 30 циклов, с последующей финальной стадией элонгации при 72°C в течение 5 мин. Наконец, библиотека секвенировалась на платформе Illumina MiSeq (Illumina, Калифорния, США). Исходные данные последовательностей были депонированы в базу данных Национального центра биотехнологической информации (NCBI) (PRJNA1185463).
2.3 Биоинформатический анализ
Исходные чтения были собраны и отфильтрованы для получения чистых данных. Биоинформатика микробиома выполнялась с помощью QIIME 2 в соответствии с официальными руководствами. Исходные чтения были нормализованы с порогом, установленным на 95% минимального количества последовательностей образца. Средняя глубина секвенирования составила 50 971, а среднее количество вариантов ампликонных последовательностей (ASV) — 29 753 (Дополнительная таблица S1). Индексы альфа-разнообразия (ACE, Chao 1, Shannon, Simpson) рассчитывались для анализа обильности и разнообразия микробных сообществ. Диаграмма Венна, неметрическое многомерное шкалирование (NMDS), анализ Adonis и анализ методом невзвешенного попарного группирования с арифметическим средним (UPGMA) выполнялись на основе расстояния Брея–Кёртиса для исследования различий между моделями. Аннотация видов выполнялась с использованием программного обеспечения Quantitative Insights Into Microbial Ecology 2 (QIIME2) на основе базы данных Silva1 при уровне сходства 95%. Значительно различающиеся по обилию виды были идентифицированы с помощью теста Манна–Уитни. Виды, вносящие вклад в различия между группами, были аннотированы с помощью анализа SIMPER (процент сходства). Потенциальные биомаркеры были отобраны с помощью анализа предсказания методом случайного леса (RF). Функциональная аннотация выполнялась с помощью базы данных Functional Annotation of Prokaryotic Taxa (FAPROTAX). Групповые различия в функциях анализировались с помощью дискриминантного анализа методом частичных наименьших квадратов (PLS-DA). Эти анализы были реализованы в среде R (версия 4.4.2) со следующими пакетами R: vegan, ape, ggplot2, igraph, psych. Значительно различающиеся по обилию функции были идентифицированы с помощью программного обеспечения STAMP (версия 2.1.3).
2.4 Анализ сети совместной встречаемости
Анализ сети совместной встречаемости проводился с использованием пакетов R (Hmisc, igraph). Матрица была построена по видам с частотой выше 50%. Были сохранены только ASV с коэффициентами корреляции |r| > 0,8 и скорректированным p < 0,05 на основе корреляционного анализа Спирмена. Топологические свойства узлов были рассчитаны, включая значения Zi и Pi. Zi представляет z-оценки внутримодульной связности для узла i, а Pi — коэффициент участия, рассчитанный на основе межмодульной связности для узла i. Узлы были классифицированы на четыре типа на основе их значений: периферийные (Zi ≤ 2,5, Pi ≤ 0,62), соединители (Zi ≤ 2,5, Pi > 0,62), модульные хабы (Zi > 2,5, Pi ≤ 0,62) и сетевые хабы (Zi > 2,5, Pi > 0,62). Результаты анализа были визуализированы с использованием программного обеспечения Gephi (версия 0.10.0), с узлами, окрашенными в соответствии с различными модулями. Топологические свойства сети были рассчитаны.
3 Результаты
3.1 Обработка данных секвенирования и анализ разнообразия сообщества
По сравнению с моделью посева риса и пшеницы, в почве наблюдалось более разнообразное сообщество микроорганизмов при выращивании раков (Рисунок 2). Кривые разрежения показали, что больше ASV наблюдалось в группе RC при одинаковой глубине секвенирования (Рисунок 2A). Анализ кривых рангового обилия показал, что группа RC имела более широкую кривую, что указывает на более высокое богатство почвенных микроорганизмов (Рисунок 2B).
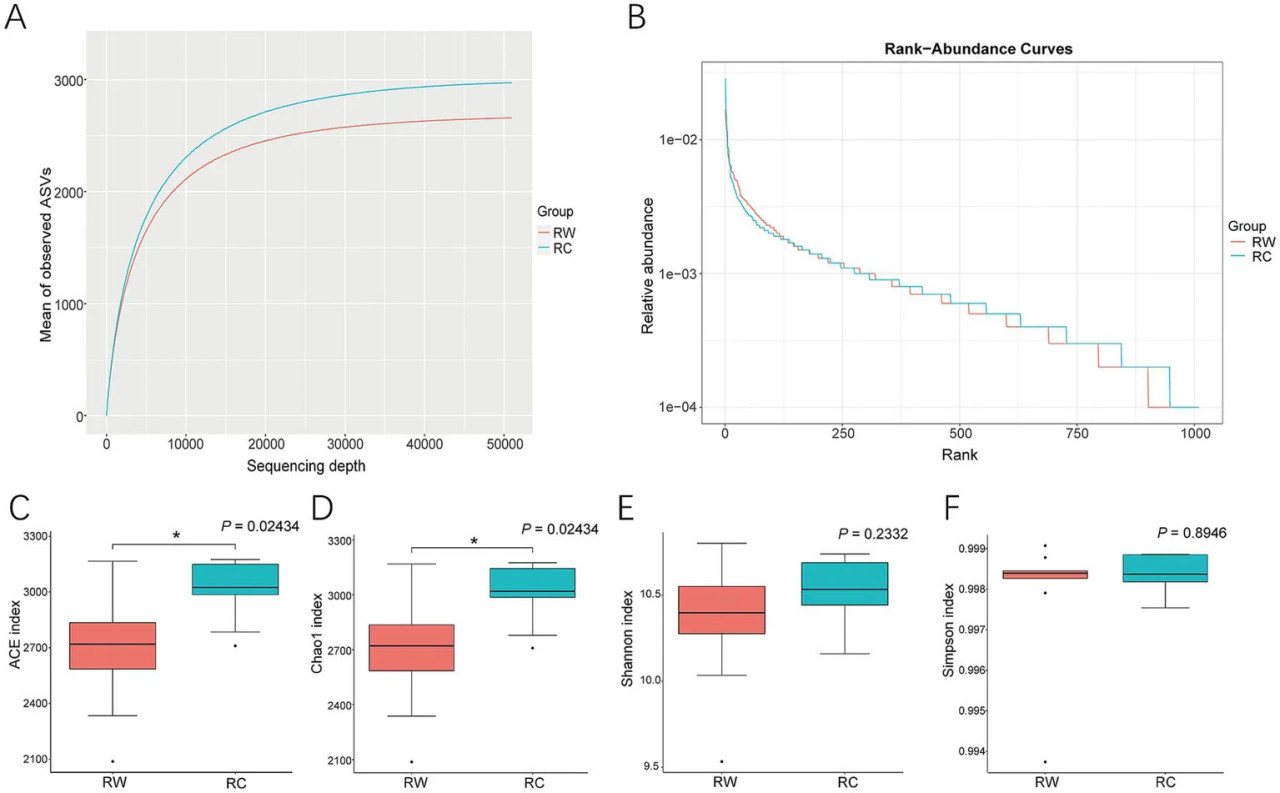
Рисунок 2 Анализ альфа-разнообразия образцов почвы. (A) Кривая разрежения для двух групп. (B) Кривая рангового обилия для двух групп. (C) Анализ индекса ACE. (D) Анализ индекса Chao1. (E) Анализ индекса Shannon. (F) Анализ индекса Simpson. Группа RW представляет почву после посева пшеницы, группа RC представляет почву после выращивания раков. Различия между образцами анализировались с помощью метода Краскела–Уоллиса и указаны на рисунке. «» указывает на значительные различия между группами (p < 0,05).
Расчёты индексов микробного разнообразия показали, что почвенные микробные сообщества на участках с выращиванием раков имели значительно более высокие индексы ACE и Chao1 (p < 0,05). По сравнению с посевом пшеницы выращивание раков увеличило индекс ACE на 12,06% и индекс Chao1 на 11,84%, что указывает на то, что выращивание раков эффективно повышает количество видов почвенных микроорганизмов (Рисунки 2C,D). Не было значительных различий в индексах Shannon и Simpson между двумя группами (p > 0,05, Рисунки 2E,F).
Различия в составе почвенного микробного сообщества между двумя группами были дополнительно исследованы. Диаграмма Венна показала, что между двумя группами было 3046 общих ASV, но каждая группа имела больше уникальных ASV (Рисунок 3A). Группа RC имела больше уникальных ASV (всего 12 246). Анализ NMDS установил надёжную планарную модель (stress = 0,09676, Рисунок 3B). Результаты анализа показали, что две группы образцов полностью разделились по оси 1. Анализ Adonis указал на значительные различия между двумя группами (p = 0,001). UPGMA показал, что образцы чётко кластеризовались в две ветви на дендрограмме (Рисунок 3C). Эти результаты свидетельствуют о том, что обработки посева пшеницы и выращивания раков привели к значительным различиям в почвенных бактериальных сообществах.
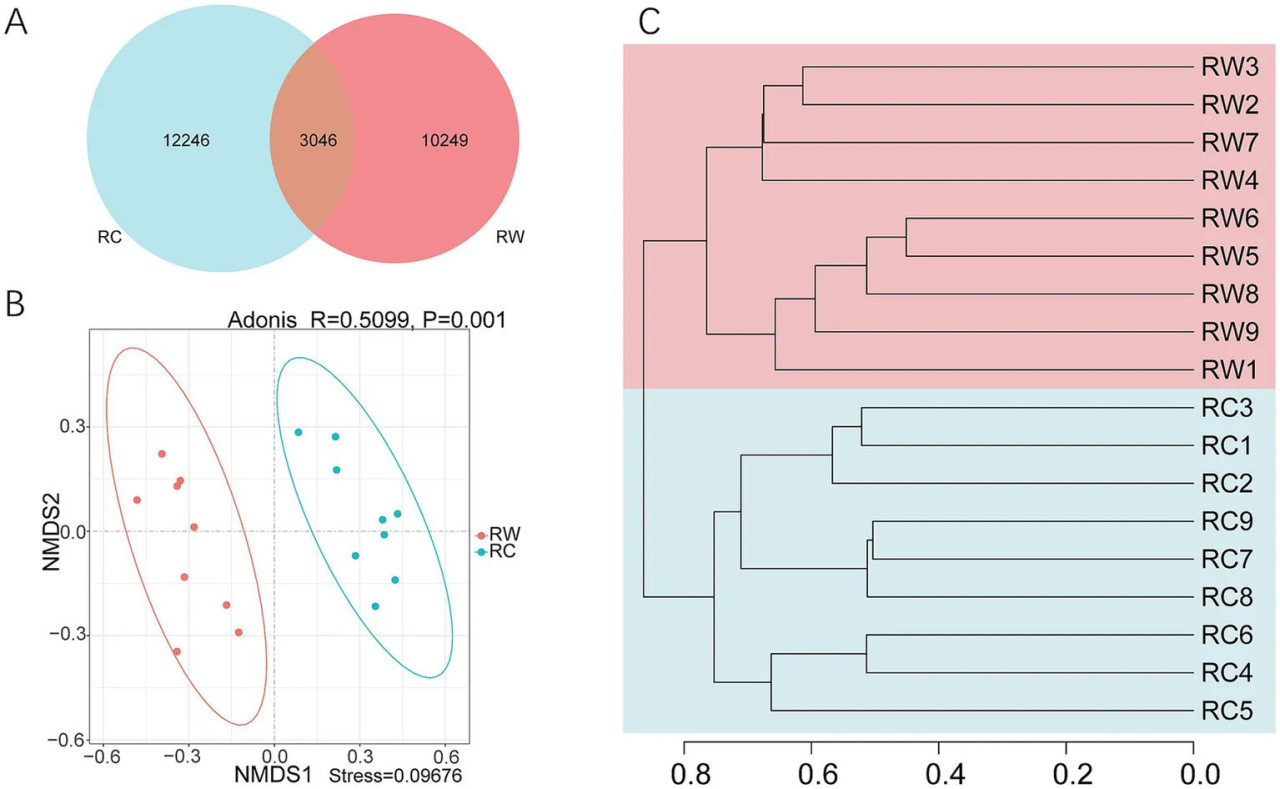
Рисунок 3 Анализ бета-разнообразия образцов. (A) Диаграмма Венна. (B) NMDS (неметрическое многомерное шкалирование) и анализ Adonis. (C) Анализ UPGMA (метод невзвешенного попарного группирования с арифметическим средним). Группа RW представляет почву после посева пшеницы, группа RC представляет почву после выращивания раков. Эти анализы были основаны на несходстве Брея–Кёртиса.
3.2 Состав почвенных микроорганизмов и анализ различий
На основе результатов аннотации видов, топ-10 наиболее обильных видов на уровне филума в обеих группах были Proteobacteria, Actinobacteriota, Acidobacteriota, Bacteroidota, Chloroflexi, Gemmatimonadota, Myxococcota, Desulfobacterota, Verrucomicrobiota и Nitrospirota (Рисунок 4A). На уровне рода было аннотировано восемь родов: SC-I-84, KD4-96, Gemmatimonas, Bacteroidetes_vadinHA17, Sphingomonas, Vicinamibacteraceae, Thiobacillus и Subgroup_7 (Рисунок 4B). Доминирующим филумом в обеих группах была Proteobacteria со средними относительными abundances 27,81 и 29,68% соответственно. Доминирующим родом был SC-I-84 со средними относительными abundances 2,69 и 3,53% соответственно. Относительные abundances видов были проверены с помощью теста Краскела–Уоллиса. После стандартизации были получены Z-оценки и создана тепловая карта. Результаты показали, что виды чётко разделились на два кластера, соответствующие группе посева пшеницы (RW) и группе выращивания раков (RC) (Рисунки 5A,B). Больше микроорганизмов было обогащено в группе RC.
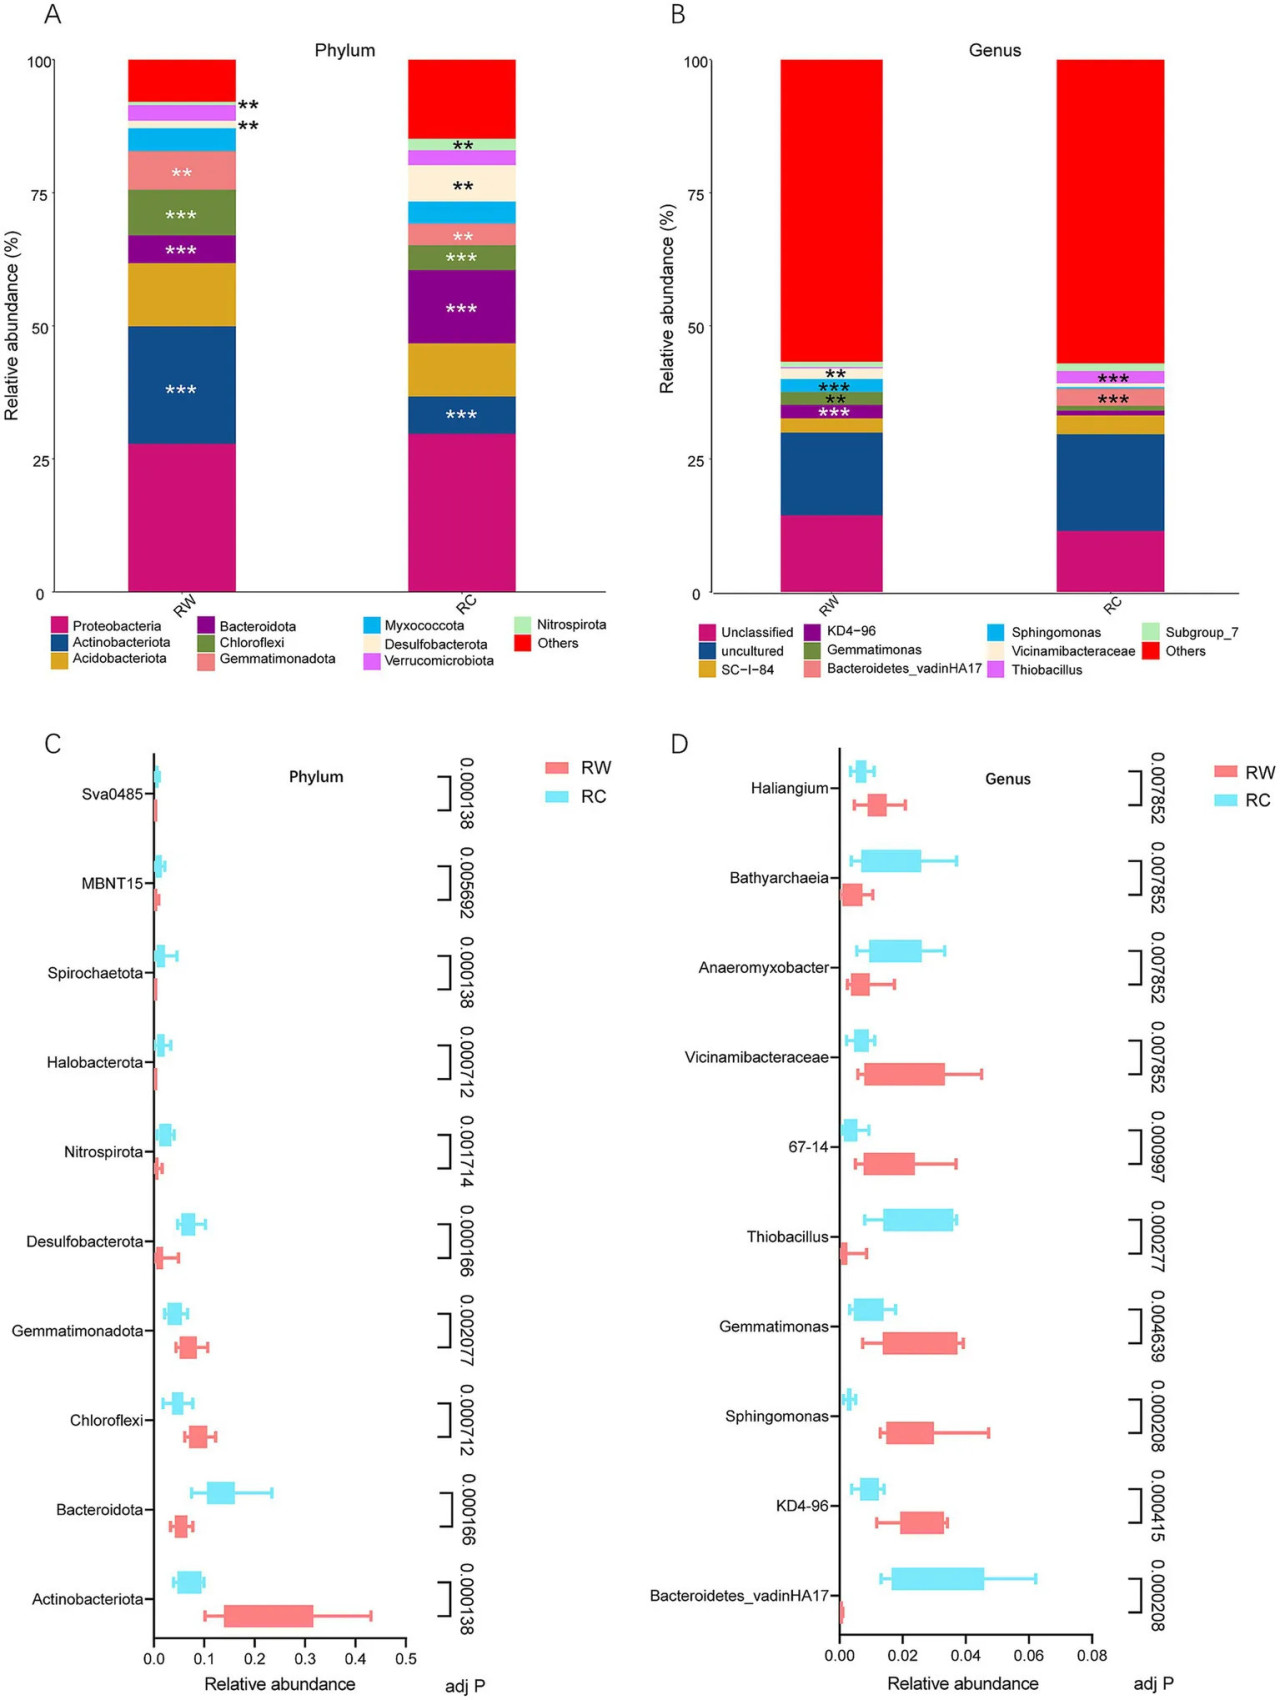
Рисунок 4 Состав бактериального сообщества и дифференциальные виды, идентифицированные в двух моделях рисоводства. (A) Столбчатая диаграмма состава доминирующих видов на уровне филума (топ-10 с наибольшей относительной abundance). (B) Столбчатая диаграмма состава доминирующих видов на уровне рода (топ-10 с наибольшей относительной abundance). (C) Результаты теста топ-10 дифференциальных бактериальных филумов по относительной abundance. (D) Результаты теста топ-10 дифференциальных бактериальных родов по относительной abundance. Группа RW представляет почву после посева пшеницы, группа RC представляет почву после выращивания раков. Значимость проверялась с помощью теста Манна–Уитни. «» означает p < 0,01, «» означает p < 0,001. Adj P означает скорректированное значение p.
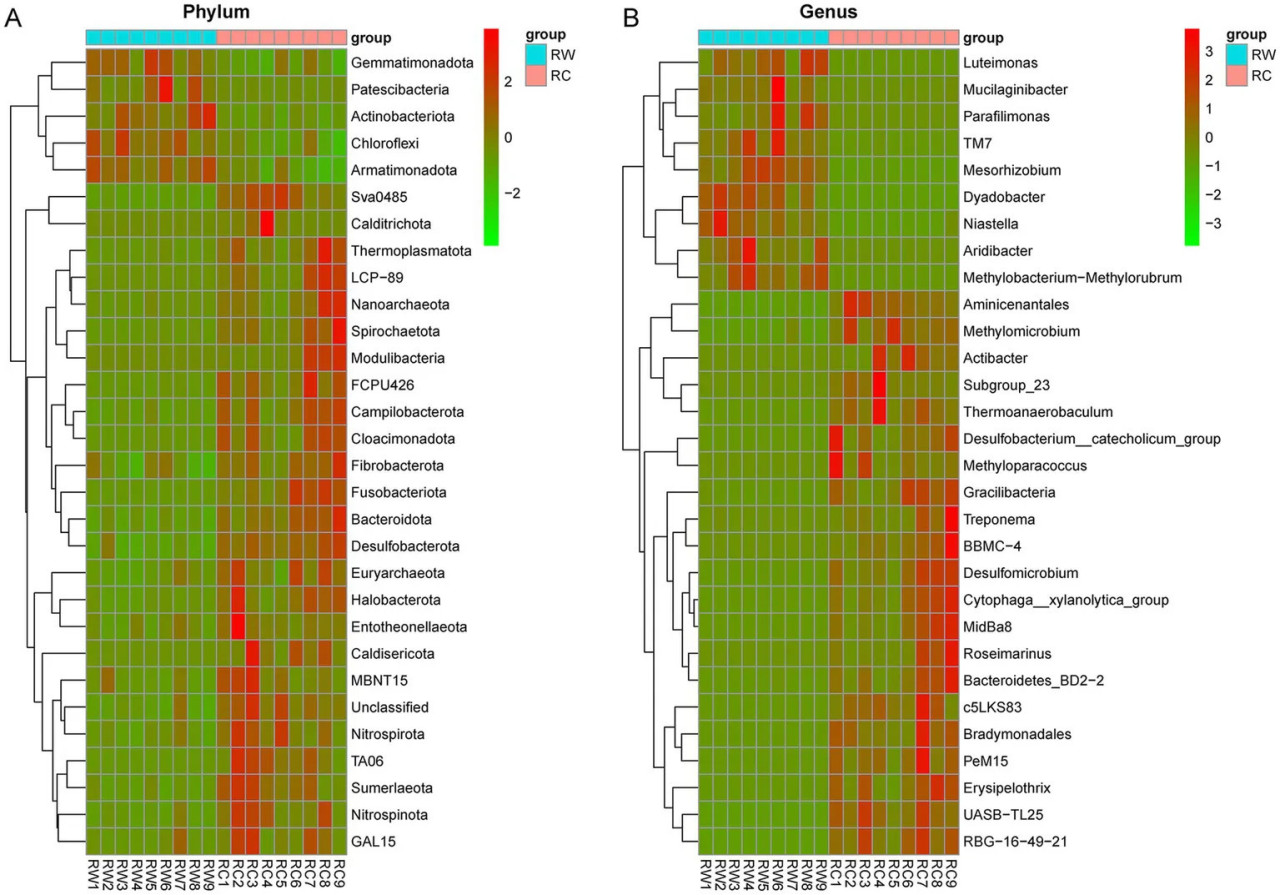
Рисунок 5 Кластеризованная тепловая карта топ-50 наиболее обильных видов со значительными различиями. (A) Тепловая карта на уровне филума. (B) Тепловая карта на уровне рода. RW представляет почву после посева пшеницы, группа RC представляет почву после выращивания раков. Красные квадраты означают положительную связь, зелёные квадраты означают отрицательную связь.
Для дальнейшего исследования дифференциальных видов между двумя группами были проверены относительные abundances видов, и перечислены топ-10 наиболее обильных и значительно различающихся видов (Рисунки 4C,D). На уровне филума наиболее значительные различия были в Actinobacteriota (скорректированное p = 0,000138), Bacteroidota (скорректированное p = 0,000166), Desulfobacterota (скорректированное p = 0,000166) и Sva0485 (скорректированное p = 0,000138). Такие филумы бактерий, как Actinobacteriota, Chloroflexi и Gemmatimonadota, были значительно обогащены в модели рис–пшеница, в то время как Bacteroidota, Desulfobacterota и Nitrospirota были значительно обогащены в модели рис–раки. На уровне рода наиболее обильными и значительно различающимися родами были Bacteroidetes_vadinHA17 (скорректированное p = 0,000208), Sphingomonas (скорректированное p = 0,000208) и Thiobacillus (скорректированное p = 0,000277). Такие бактериальные роды, как KD4-96, Sphingomonas, Gemmatimonas, 67–14 и Vicinamibacteraceae, были значительно обогащены в модели рис–пшеница, в то время как Bacteroidetes_vadinHA17, Thiobacillus, Anaeromyxobacter и Bathyarchaeia были значительно обогащены в модели рис–раки.
Вклад видов на уровне филума и рода в различия между двумя группами измерялся с помощью анализа SIMPER (процент сходства). Индекс вклада указывал на степень, в которой виды вносят вклад в различия между двумя группами. Более высокий индекс вклада указывал на большие различия между группами для этого вида. Таблица 1 показывает виды на уровне филума с индексом вклада более 0,05 и на уровне рода с индексом вклада более 0,01. Результаты показали, что Actinobacteriota, Bacteroidota и Desulfobacterota, которые были наиболее значительно различающимися видами, также имели наибольший вклад в различия в микробном составе между двумя группами. На уровне рода Bacteroidetes_vadinHA17, Sphingomonas и Thiobacillus были тремя аннотированными видами, вносящими наибольший вклад в различия в составе сообщества. Аналогично анализу на уровне филума, эти три рода также были наиболее значительно различающимися бактериальными родами.
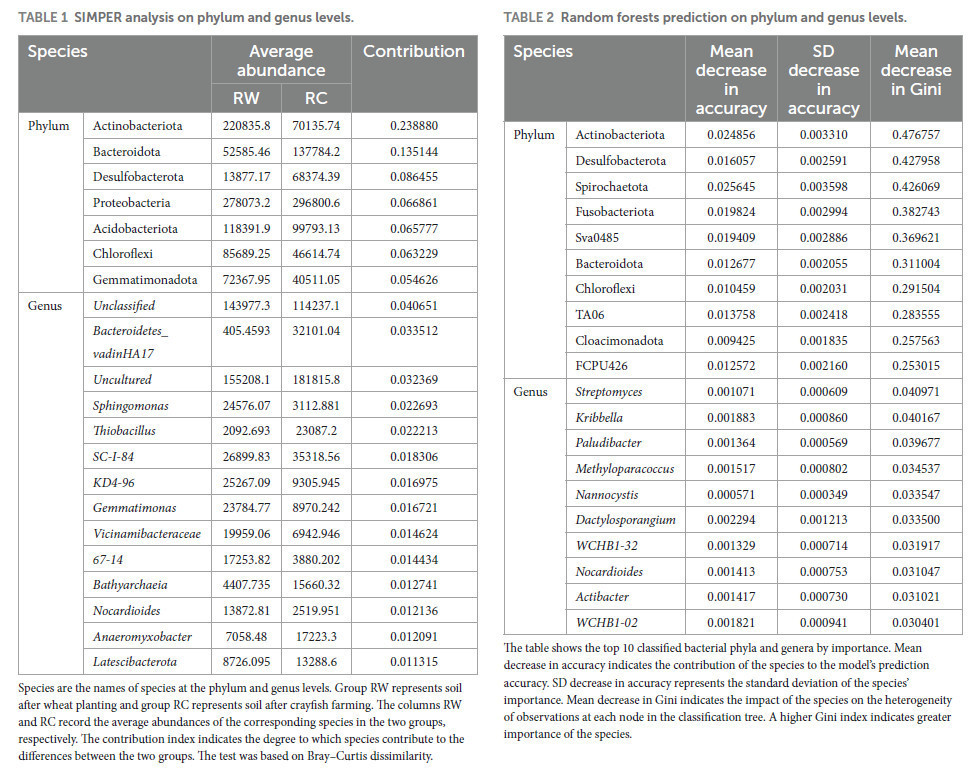
Таблица 1 Анализ SIMPER на уровнях филума и рода.
Таблица 2 Предсказание методом случайного леса на уровнях филума и рода.
Виды — это названия видов на уровнях филума и рода. Группа RW представляет почву после посева пшеницы, группа RC представляет почву после выращивания раков. Столбцы RW и RC фиксируют средние abundances соответствующих видов в двух группах соответственно. Индекс вклада указывает на степень, в которой виды вносят вклад в различия между двумя группами. Тест был основан на несходстве Брея–Кёртиса.
3.3 Отбор биомаркеров
Анализ предсказания методом случайного леса — это классический и эффективный алгоритм машинного обучения на основе деревьев решений, относящийся к нелинейным классификаторам. Этот метод использовался для отбора признаков, которые играли важную роль в группировке, в качестве потенциальных биомаркеров. Индекс Джини служил показателем потенциала видов в качестве биомаркеров, причём более высокие значения указывали на большую важность. Согласно результатам предсказания методом случайного леса (Таблица 2), на уровне филума Actinobacteriota, Desulfobacterota и Spirochaetota были потенциальными биомаркерами. На уровне рода Streptomyces, Kribbella и Paludibacter были потенциальными биомаркерами.
Таблица показывает топ-10 классифицированных бактериальных филумов и родов по важности. Среднее снижение точности указывает на вклад вида в точность предсказания модели. Стандартное отклонение снижения точности представляет стандартное отклонение важности вида. Среднее снижение Джини указывает на влияние вида на неоднородность наблюдений в каждом узле классификационного дерева. Более высокий индекс Джини указывает на большую важность вида.
Аналогично результатам дифференциального тестирования и анализа SIMPER, Actinobacteriota, Desulfobacterota, Bacteroidota и Chloroflexi были не только значительно различающимися видами между двумя группами, но также основными видами, вносящими вклад в различия между двумя группами.
3.4 Анализ функционального предсказания
Экологические функции анализировались с помощью программного обеспечения FAPROTAX. Топ-10 функциональных категорий по abundance в образцах были хемогетеротрофия, аэробная хемогетеротрофия, тёмное окисление соединений серы, тёмное окисление сульфидов, ферментация, хищничество или экзопаразитизм, хитинолиз, деградация ароматических соединений, уреолиз и паразиты или симбионты животных (Рисунок 6A).
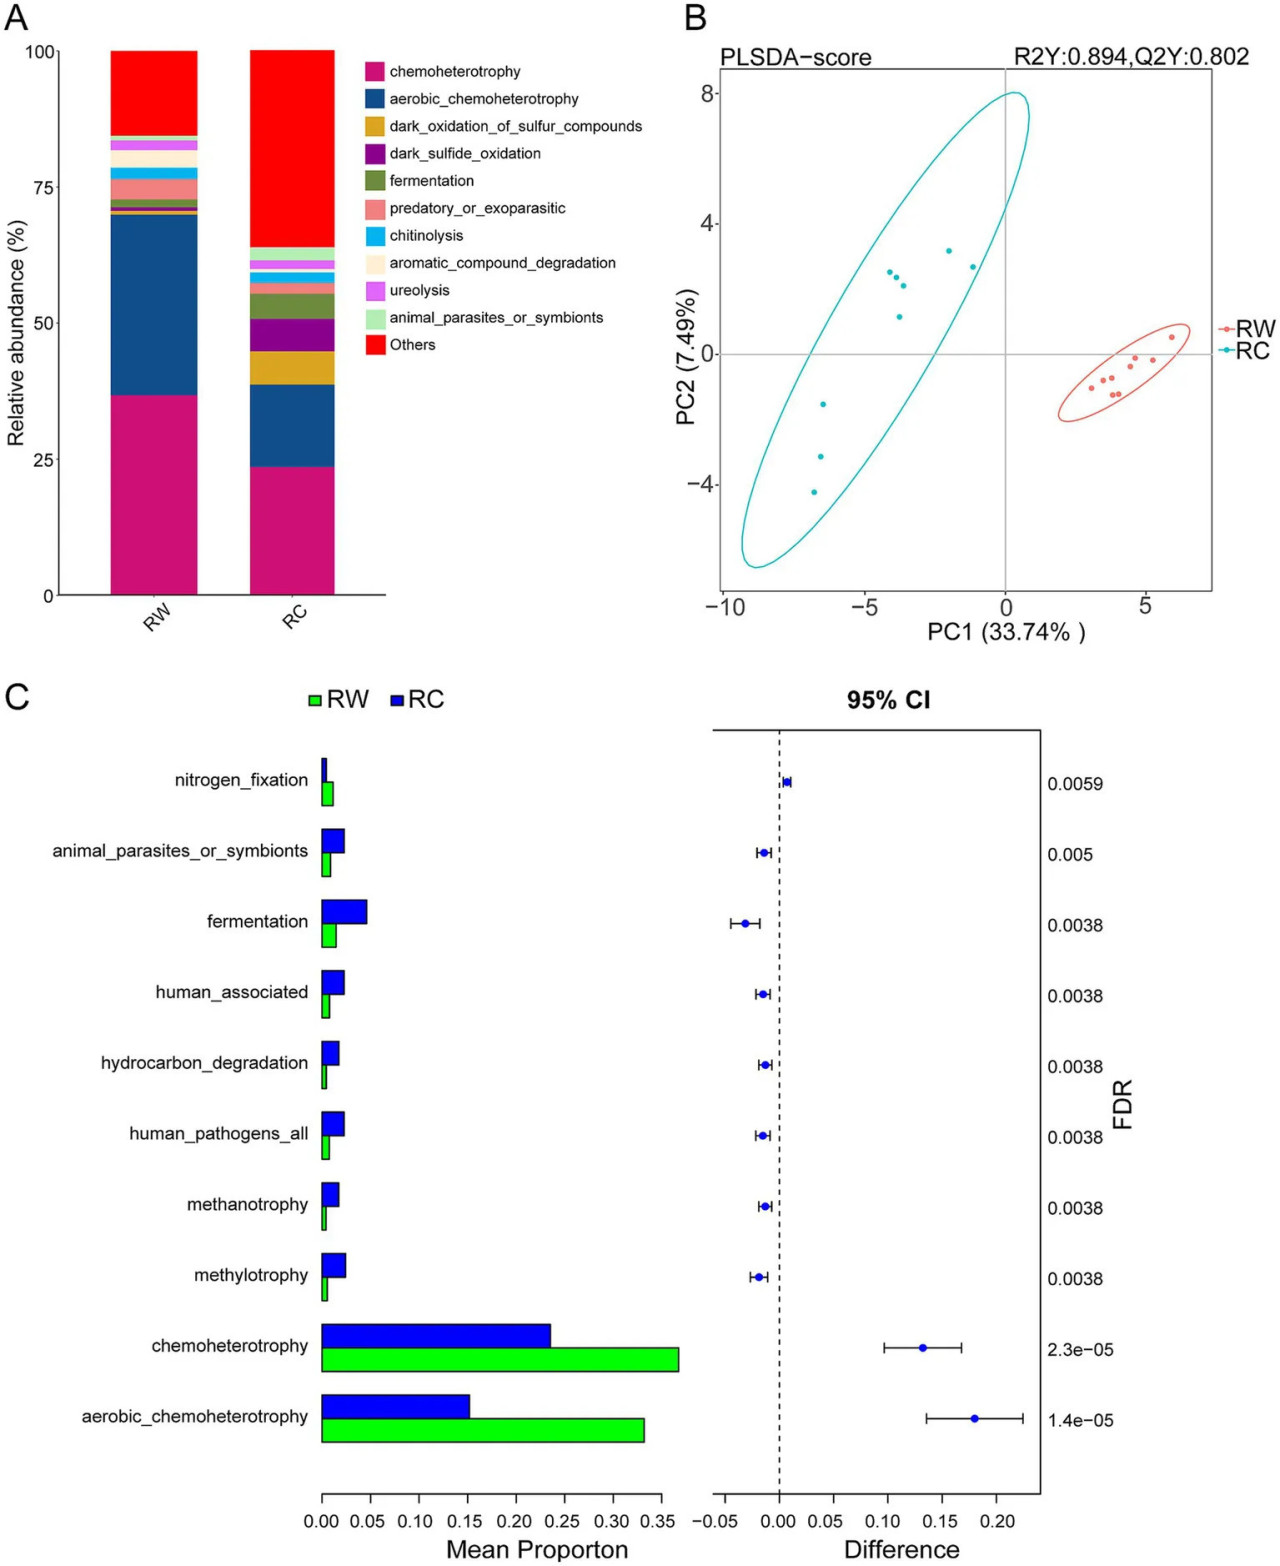
Рисунок 6 Функциональное предсказание FAPROTAX и анализ различий. (A) Топ-10 предсказанных функций по abundance в обеих группах образцов. (B) Анализ PLS-DA микробных функциональных различий между двумя группами образцов. (C) Анализ различий функций. Группа RW представляет почву после посева пшеницы, группа RC представляет почву после выращивания раков. FDR означает частоту ложных обнаружений.
Результаты PLS-DA показали, что две группы образцов чётко разделились по оси 1, что указывает на то, что различные модели землепользования значительно изменяют функции почвенных микроорганизмов (Рисунок 6B). По сравнению с моделью рис–пшеница, функции почвенных микроорганизмов на участках с выращиванием раков были более рассеяны на координатной оси, с большим количеством функций, классифицированных как «другие», что свидетельствует о большем функциональном разнообразии микробного сообщества.
Значительные дифференциальные функциональные категории (p < 0,05), полученные с помощью теста Краскела–Уоллиса, были кластеризованы и создана соответствующая тепловая карта (Дополнительный рисунок S1). Согласно результатам кластеризации, предсказанные функции были разделены на два кластера. Большинство функций были положительно коррелированы с группой RC, и少数 были положительно коррелированы с группой RW. Этот результат был аналогичен дифференциальным видам.
Столбчатые диаграммы топ-10 наиболее различающихся функциональных категорий были построены и проанализированы (Рисунок 6C). Результаты дифференциального анализа показали, что аэробная хемогетеротрофия и хемогетеротрофия были двумя наиболее значительно различающимися функциями. Относительные abundances этих двух функций в рисово-пшеничных участках были значительно выше, чем в рисово-раковых участках. Напротив, относительные abundances метилотрофии, всех патогенов человека, метанотрофии, деградации углеводородов и функций, связанных с человеком, в рисово-раковых участках были значительно выше, чем в рисово-пшеничных участках.
3.5 Анализ сети совместной встречаемости
Сети совместной встречаемости бактериальных сообществ в почвах были построены для изучения взаимодействий между различными видами (Рисунок 7; Таблица 3). Результаты показали, что в почве, засеянной пшеницей, количество узлов составило 993, что ниже, чем 1026 в почве с выращиванием раков, но сеть имела больше рёбер (24 155), более высокую среднюю степень (48,65), более высокий средний коэффициент кластеризации (0,452) и меньшее среднее расстояние пути (3,144). Это указывает на то, что микробное сообщество в пшеничной почве имеет больше внутренних связей, чем внешних. Группа раков имела более высокую модульность (0,549), что указывает на более высокую степень модульности. Доля положительных корреляций в пшеничной группе составила 58,00%, остальные 42,00% были отрицательными корреляциями. Группа раков имела более сильную положительную корреляцию — 60,06%.
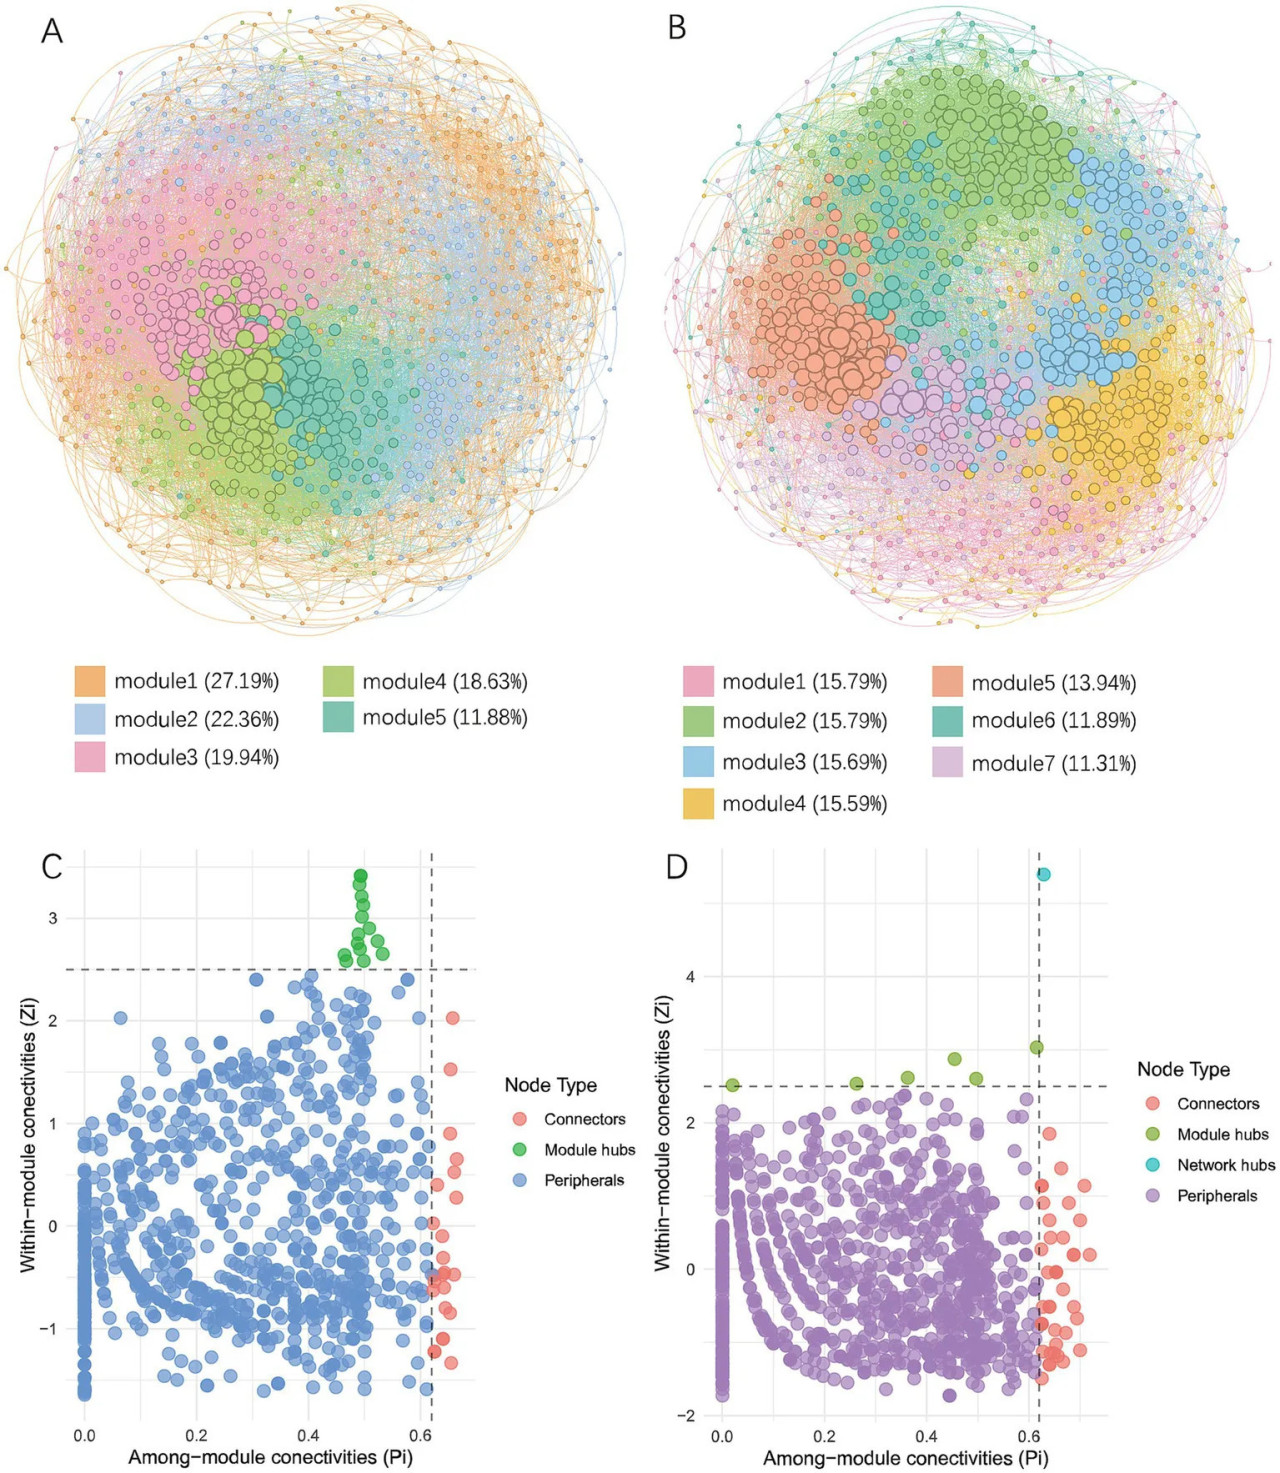
Рисунок 7 Анализ сети совместной встречаемости почвенных микроорганизмов. (A) Сеть совместной встречаемости почвенных микробов в пшеничной группе. (B) Сеть совместной встречаемости почвенных микробов в группе раков. Различные цвета представляют соответствующие модули и их пропорции. (C) Топологические свойства узлов в сети совместной встречаемости пшеничной группы. (D) Топологические свойства узлов в сети совместной встречаемости группы раков. Группа RW представляет почву после посева пшеницы, группа RC представляет почву после выращивания раков.
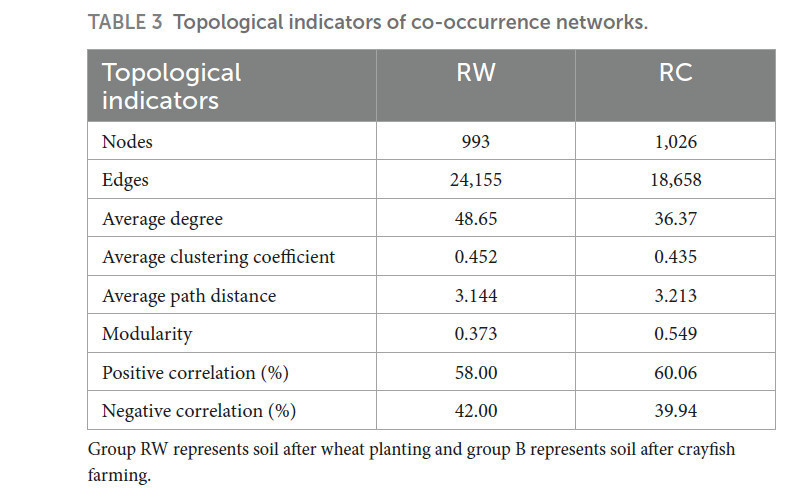
Таблица 3 Топологические показатели сетей совместной встречаемости.
Группа RW представляет почву после посева пшеницы, группа B представляет почву после выращивания раков.
Узлы с важными ролями были идентифицированы на основе их значений Zi и Pi (Дополнительная таблица S2). В почве, засеянной пшеницей, было 24 узла, действующих как соединители, и 15 узлов как модульные хабы. В почве с выращиванием раков было 40 узлов, действующих как соединители, 6 узлов как модульные хабы и один узел с атрибутом сетевого хаба. Это показало, что микробная сеть в почве с раками была более связанной и стабильной. Результаты аннотации показали, что в режиме севооборота рис–пшеница соединители в основном состояли из Proteobacteria (12) и Actinobacteriota (6), а модульные хабы в основном состояли из Proteobacteria (6), Acidobacteriota (4) и Actinobacteriota (3). В режиме севооборота рис–раки соединители в основном происходили из Proteobacteria (12), Actinobacteriota (7), Bacteroidota (5), Verrucomicrobiota (5) и Chloroflexi (4). Модульные хабы в основном происходили из Desulfobacterota (2) и Proteobacteria (2). Узел сетевого хаба принадлежал к филуму Nitrospirota и роду 4-29-1.
4 Обсуждение
Экологическая гетерогенность значительно влияет на распределение микроорганизмов, приводя к различиям в их нишах и функциях (Xu и др., 2024). Наше исследование показало, что различные методы севооборота в интегрированном рисоводстве значительно изменили почвенное микробное сообщество, вызвав значительные различия и повлияв на их функции.
4.1 Различные сельскохозяйственные модели驱动 дифференциальное обогащение почвенных микроорганизмов
С точки зрения видового состава, этот эксперимент показал, что посев пшеницы эффективно увеличил abundance Actinobacteriota в почве, в то время как выращивание раков увеличило abundance Bacteroidota и Desulfobacterota. Эти три бактериальных филума, Actinobacteriota, Bacteroidota и Desulfobacterota, были основными видами, вызывающими различия в микробном составе между двумя группами.
Acidobacteriota — это generally аэробный, медленно растущий и олиготрофный таксон. Actinobacteriota широко присутствует в почве и может проявлять сильную адаптивность к солеустойчивости (Wang и др., 2024b) и засухоустойчивости, даже становясь ключевыми организмами в микробных сетях (Pan и др., 2024). Филумы Bacteroidota и Desulfobacterota являются анаэробными и в первую очередь используют вещества в окружающей среде для производства энергии. Bacteroidota широко встречается в донных отложениях аквакультуры (Wang и др., 2022). Этот филум generally анаэробный, быстрорастущий и копиотрофный в почвах или донных отложениях (Lin and Lin, 2022). Bacteroidota обладает способностью секретировать различные углеводород-активные ферменты (CAZymes) для разложения сложных углеводов в почве (Larsbrink and McKee, 2020). Desulfobacterota осуществляют строго анаэробный хемоорганотрофный, хемолитоheterotrophy или хемолитоавтотрофный рост путём дыхательного или ферментативного метаболизма (Wang и др., 2022).
На уровне рода Bacteroidetes_vadinHA17, Sphingomonas и Thiobacillus внесли наибольший вклад в различия. Sphingomonas был обогащён в модели рис–пшеница, в то время как Bacteroidetes_vadinHA17 и Thiobacillus были обогащены в модели рис–раки. Sphingomonas обычно обогащается в сельскохозяйственной почве (Alahmad и др., 2018), помогает растениям приобретать питательные вещества (такие как фосфор, железо) и улучшает производство биомассы растений (Mazoyon и др., 2023). Bacteroidetes_vadinHA17 — это анаэробная или факультативная бактерия (Li и др., 2024), может разлагать глюкозу на малые молекулы, такие как уксусная кислота, пропионовая кислота и H2/CO2 (Wang R. и др., 2021). Thiobacillus — это сероокисляющая бактерия, которая играет важную роль в цикле серы, в первую очередь выполняя денитрификацию (Skinner and Jahren, 2007; Zhao и др., 2024). Как автотрофная бактерия, она может окислять неорганические соединения серы, такие как H2S, для получения энергии и производства сульфата. В сельском хозяйстве считается, что она увеличивает доступность серы, обеспечивая питательные вещества для сельскохозяйственных культур (Gopalakrishnan и др., 2020).
В зависимости от различных почвенных условий, две группы микроорганизмов проявляли чрезвычайно различную экологическую избирательность и образ жизни. Результаты анализа идентифицировали Actinobacteriota, Desulfobacterota и Spirochaetota как потенциальные биомаркеры. Spirochaetota может разлагать целлюлозу и широко присутствует в пищеварительных трактах травоядных животных (Dhakal и др., 2024; Salgado и др., 2024). Это может быть связано с богатой растительностью в модели севооборота рис–пшеница. Пруды для выращивания раков являются искусственными водными экосистемами, характеризующимися длительным затоплением, замкнутостью и отсутствием растительности. Длительное затопление во время выращивания обычно снижает уровень кислорода, создавая аноксическую среду, благоприятную для анаэробной жизни микроорганизмов в донных отложениях (Wang M. и др., 2024). Это указывает на то, что различные схемы севооборота驱动 почвенное микробное сообщество к обогащению в двух различных направлениях, причём Actinobacteriota и Desulfobacterota, возможно, являются репрезентативными видами.
4.2 Различные схемы севооборота значительно изменили метаболические пути почвенных микроорганизмов
Различные модели землепользования не только значительно изменили типы и abundances почвенных микроорганизмов, но также изменили их метаболические пути. Анализ FAPROTAX показал, что микробные функции в обеих моделях в основном связаны с углеродным циклом. Бактериальные функции в модели рис–пшеница были сосредоточены на аэробной хемогетеротрофии и хемогетеротрофии, что указывает на то, что почвенные микроорганизмы в первую очередь получают углерод и энергию путём окисления органического вещества, с активным процессом химической деградации (Wu и др., 2024). Эти метаболические пути широко присутствуют в моделях сухого земледелия с частым газообменом и богатыми питательными веществами (Wang и др., 2024a).
По сравнению с моделью рис–пшеница с более частым газообменом, микроорганизмы в низкокислородной модели рис–раки имели более сложные и разнообразные метаболические пути, использовали различные методы для получения питательных веществ. В дополнение к аэробной хемогетеротрофии и хемогетеротрофии, основные функции также включали метилотрофию, деградацию углеводородов и метанотрофию. Исследователи (Zhang и др., 2024) продемонстрировали, что затопление снижает стабильность растворённого органического углерода в поверхностной почве и усиливает простую деполимеризацию его структуры. Следовательно, интегрированная система рис–раки обогащает доступность субстрата для микробного метаболизма в поверхностной почве, способствуя разложению компонентов почвенного гумуса и одновременно подавляя деградацию полисахаридов. Этот механизм в конечном итоге усиливает накопление органического углерода в более глубоких слоях почвы. Было доказано, что эта интегрированная модель обладает большей способностью к метаболизму углеводов по сравнению с неинтегрированными моделями (Zhu и др., 2023). В нашем исследовании предсказанные метаболические пути указывают на то, что микроорганизмы в модели рис–раки обладают способностью получать углерод и энергию из органических субстратов, не содержащих углерод–углеродных связей (соединения C1, такие как метан, метанол, галогенированный метан и т.д.) (Chistoserdova, 2011). Метилотрофия и метанотрофия являются очень значимыми методами утилизации питательных веществ в донных отложениях аквакультуры (Huang и др., 2024). В низкокислородной среде донных отложений метанотрофы могут использовать ограниченный кислород для метаболизма и производить такие вещества, как метанол и формальдегид, для снабжения других микроорганизмов, формируя пищевую цепь (Chistoserdova and Kalyuzhnaya, 2018). Это указывает на то, что поток питательных веществ в среде выращивания раков в основном driven углеродным циклом, и эти метаболические пути часто связаны с фиксацией углерода. Следовательно, модель севооборота рис–раки обладает потенциалом для снижения выбросов парниковых газов (Wang L. и др., 2024).
4.3 Различные схемы севооборота изменили структуру почвенных микробных сетей
Ключевые виды в сети были отобраны на основе значений Zi и Pi узлов. В обеих схемах севооборота виды, принадлежащие к Proteobacteria и Actinobacteriota, одновременно действовали как соединители и модульные хабы, что указывает на то, что эти два филума являются важными компонентами в построении почвенных микробных сетей. Аналогично существующим исследованиям (Zhu и др., 2022), этот эксперимент также обнаружил, что выращивание раков в сельскохозяйственных системах помогало строить положительные и стабильные экологические микробные сети. По сравнению с посевом пшеницы во время севооборота, выращивание раков может эффективно увеличить количество и разнообразие микроорганизмов в почве, усилить положительные корреляции в микробной сети и тем самым повысить устойчивость к экологическому стрессу. В почве модели рис–раки микробная сеть имела более высокую степень модульности, и более разнообразный диапазон видов (таких как Bacteroidota, Verrucomicrobiota, Desulfobacterota и т.д.) были важными узлами в микробной сети. Предполагается, что разнообразные микроорганизмы в этой модели занимают различные ниши в экологической сети и выполняют различные функции. Кроме того, был узел с атрибутом сетевого хаба, который принадлежит к филуму Nitrospirota и роду 4-29-1. В настоящее время очень мало исследований по 4-29-1 (Zhou и др., 2024), но из уровня филума делается вывод, что этот вид обладает способностью метаболизировать азотсодержащие органические соединения (Guo и др., 2024).
Предыдущие исследования в основном сосредоточены на микробных сообществах в моделях совместного выращивания риса и раков или сравнивали севооборот рис–раки с монокультурой риса (Jiang and Cao, 2021; Wei и др., 2021; Zhu и др., 2022; Huang и др., 2023). Эти исследования доказали, что выращивание раков в рисовых полях помогает увеличить биоразнообразие и эффективность использования ресурсов. Если только рис или другие культуры выращиваются в качестве продуцентов в поле, это может привести к конкуренции за энергию со стороны сорняков или фитопланктона, или к чрезмерной потере продуктов фотосинтеза из-за отсутствия потребителей. Долгосрочное поддержание одной модели землепользования может снизить содержание полезных почвенных микроорганизмов и увеличить abundance патогенных бактерий (Liu и др., 2021). Аналогично результатам этих исследований, этот эксперимент также обнаружил, что по сравнению с посевом пшеницы выращивание раков может эффективно увеличить богатство и разнообразие почвенных микроорганизмов и улучшить структуру почвенных бактерий. Богатые ризосферные микроорганизмы полезны для роста сельскохозяйственных культур, повышения продуктивности и играют важную роль в поддержании поглощения питательных веществ и биологической защиты (Jaiswal и др., 2022). В системе севооборота рис–раки выращивание раков и увеличение богатства и разнообразия почвенных микроорганизмов может быть полезным для последующего роста риса, формируя систему доб Virtuous circle.
Диверсифицированная система возделывания сельскохозяйственных культур может эффективно повысить продуктивность сельского хозяйства и экономические выгоды, укрепить устойчивость земледелия и улучшить адаптивность к изменениям окружающей среды (Yang и др., 2024). Положительные сетевые корреляции и большое количество связанных видов подразумевают обширные кооперативные отношения среди микроорганизмов, включая перекрёстное feeding, синтрофию, мутуализм и комменсализм (Wang Q. и др., 2024). Следовательно, построение симбиотической системы раки–рис–почва–микроорганизмы может помочь достичь ресурсосбережения и экологического баланса (Jiang and Cao, 2021).
5 Заключение
Это исследование сравнило влияние различных методов севооборота (посев пшеницы и выращивание раков) на почвенные микробные сообщества и функции. Результаты показали, что различные модели севооборота в интегрированных системах рисоводства могут значительно изменить состав почвенного микробного сообщества,驱动 значительные различия и влияя на их функции. По сравнению с посевом пшеницы выращивание раков может эффективно увеличить количество и разнообразие почвенных микроорганизмов. Идентифицированные дифференциальные микроорганизмы и потенциальные биомаркеры могут служить ключевыми видами для различения почвы в двух сельскохозяйственных группах. Это исследование предоставляет теоретические данные для интегрированных систем рисоводства и дополнительно оптимизирует практики управления земельными ресурсами для улучшения почвенной среды. Целесообразно дополнительно исследовать влияние этих двух схем севооборота на физико-химические свойства и материальный состав почвы, а также взаимосвязи между этими показателями и микроорганизмами.
Дополнительный материал
Дополнительный материал к этой статье можно найти онлайн по адресу: https://www.frontiersin.org/articles/10.3389/fmicb.2025.1528883/full#supplementary-material
Сноски
1.^http://www.arb-silva.de
Xu H, Wang D, Li X, Li J, Xu Y and Xu Z (2025) Cultivating crayfish (Procambarus clarkii) significantly enhances the quantity and diversity of soil microorganisms: evidence from the comparison of rice-wheat and rice-crayfish rotation models. Front. Microbiol. 16:1528883. doi: 10.3389/fmicb.2025.1528883
Перевод статьи «Cultivating crayfish (Procambarus clarkii) significantly enhances the quantity and diversity of soil microorganisms: evidence from the comparison of rice-wheat and rice-crayfish rotation models» авторов Xu H, Wang D, Li X, Li J, Xu Y and Xu Z, оригинал доступен по ссылке. Лицензия: CC BY. Изменения: переведено на русский язык
Фото: wikipedia




Комментарии (0)