

Как снизить долю синего света и сэкономить на вертикальной ферме: опыт с салатом
Вертикальное земледелие предлагает устойчивое решение для городского производства продуктов питания, однако оптимизация энергопотребления остаётся критической задачей, поскольку почти половина потребностей в электроэнергии приходится на искусственное освещение. Динамическая регулировка синего и красного света позволяет снизить затраты на энергию, так как синий свет более энергоёмок, что, в свою очередь, уменьшает операционные расходы и повышает рентабельность.
Аннотация
Методы: В данном исследовании изучалось влияние динамической регулировки синего и красного света на растения салата (Lactuca sativa, сорт Danstar). Были протестированы четыре варианта освещения, каждый из которых поддерживал общую плотность фотосинтетического фотонного потока (PPFD) на уровне 200 мкмоль м⁻² с⁻¹ при 16-часовом фотопериоде: (1) RB3 (контроль, 150 мкмоль м⁻² с⁻¹ красного и 50 мкмоль м⁻² с⁻¹ синего); (2) снижение доли синего (B) на 25% с почасовым чередованием между контролем и режимом 175 мкмоль м⁻² с⁻¹ красного / 25 мкмоль м⁻² с⁻¹ синего; (3) снижение доли B на 38% с почасовым циклическим переключением через режимы RB3, 162/38, 175/25 и 188/12 мкмоль м⁻² с⁻¹ красного/синего света; и (4) снижение доли B на 50% с почасовым чередованием между контролем и монохроматическим красным светом 200 мкмоль м⁻² с⁻¹. Агрономические, физиологические и морфологические данные собирались еженедельно на 7, 14 и 21 день после пересадки.
Результаты: В то время как динамический режим со снижением B на 50% не улучшил общую продуктивность культуры по сравнению с контролем RB3, варианты со снижением B на 25% и 38% увеличили сырую урожайность салата на 50–60% при сохранении стабильной сухой массы.
Обсуждение: Эти реакции указывают на улучшение оводнённости листьев (снижение содержания сухого вещества), что приводит к увеличению сырой товарной урожайности, повышению эффективности использования световой энергии до 63% и снижению затрат на освещение на 40%, демонстрируя, что постоянный синий свет при фиксированном PPFD не требуется для оптимального роста. Данный подход может представлять собой жизнеспособную стратегию снижения производственных затрат и повышения устойчивости в контролируемом земледелии.
1 Введение
Глобальная продовольственная безопасность сталкивается с нарастающими проблемами, обусловленными ограниченностью пахотных земель, истощением ресурсов, нехваткой воды и усиливающейся климатической изменчивостью (Malhi и др., 2021; Carotti и др., 2023). Одновременно непрерывная тенденция урбанизации и быстрый рост населения создают значительную проблему: ожидается, что к 2050 году 68% мирового населения будет проживать в городских районах, когда население мира, по прогнозам, достигнет 9,5 миллиарда человек, что окажет огромное давление на цепочку поставок продовольствия (Департамент по экономическим и социальным вопросам ООН (UN DESA), 2018). В совокупности эти проблемы стимулируют разработку инновационных и устойчивых сельскохозяйственных систем, которые приближают производство продовольствия к потребителям, способствуя созданию надежных, адаптивных и ресурсоэффективных подходов к земледелию, обеспечивающих стабильную урожайность при минимизации воздействия на окружающую среду (Martin и др., 2023).
Системы вертикального земледелия (VFs) представляют собой закрытые сельскохозяйственные объекты, в которых культуры выращиваются в нескольких ярусах, установленных друг над другом, в контролируемой среде. Эти системы позволяют осуществлять круглогодичное производство, особенно в городских районах, где доступность пространства и ресурсов ограничивает традиционное земледелие (Ji и др., 2023). Регулируя такие факторы окружающей среды, как свет, температура, CO2 и питательные вещества, VFs оптимизируют рост растений и эффективность использования ресурсов (прежде всего воды, земли и удобрений), сокращая транспортные расходы на доставку продовольствия и применение пестицидов (Pennisi и др., 2025). Несмотря на эти преимущества, высокие энергетические и эксплуатационные затраты остаются значительными проблемами в VFs, что подчеркивает необходимость улучшения стратегий контроля окружающей среды для максимизации урожайности и качества при минимальных энергозатратах.
Свет является ключевым фактором окружающей среды, движущим рост и развитие растений, обеспечивая источник энергии для фотосинтеза и регулируя ряд физиологических процессов через фоторецепторы, такие как фитохромы, криптохромы и фототропины (Vaštakaitė-Kairienė и др., 2022; Chen и др., 2021; Trivellini и др., 2023). Недавние достижения в технологии светодиодов позволили осуществлять точный контроль качества, интенсивности и продолжительности света, повышая продуктивность культур и позволяя проводить детальные исследования реакций растений на определенные спектры (Kusuma и др., 2020; Son and Oh, 2015). Эффективность освещения, измеряемая как фотосинтетический фотонный поток на единицу электрической мощности, сильно зависит от спектрального качества (Kusuma и др., 2020). Синие (450 нм) и красные (660 нм) фотоны различаются как по энергопотреблению, так и по фотосинтетической эффективности: синие фотоны требуют больше энергии и примерно на 25% менее эффективны для фотосинтеза, чем красные фотоны (Mitchell and Sheibani, 2020). Красный и синий свет широко признаны за их положительное влияние на рост растений: в то время как синий свет способствует формированию компактной архитектуры растений и усиливает синтез фотосинтетических пигментов, монохроматический красный свет стимулирует удлинение клеток (Silva и др., 2024). Однако ни монохроматический красный, ни синий свет по отдельности не поддерживают оптимальный рост растений, и комбинированный красно-синий спектр обычно обеспечивает превосходные показатели роста. Например, монохроматический красный свет может вызывать аномальную морфологию листьев и снижение фотосинтеза (Wang и др., 2016), в то время как синий свет необходим для фотоморфогенеза, включая регуляцию устьиц и развитие хлоропластов (Wang и др., 2015). Применение синего света также влияет на питательное качество, увеличивая накопление антоцианов и каротиноидов в салате (Paradiso and Proietti, 2022). Исследования показали, что даже небольшая доля синего света (например, 7% от общей фотосинтетически активной радиации) необходима для поддержания эффективного фотосинтеза и предотвращения нарушений у огурца (Hogewoning и др., 2010). Напротив, высокие уровни синего света могут задерживать созревание плодов перца (Liu и др., 2022) и активировать пути стресса и вторичного метаболизма у Centella asiatica (Nawae и др., 2021).
Вариации в доле синего света значительно влияют на биомассу растений, морфологию и энергопотребление (Chen и др., 2021; Wang и др., 2024a), хотя эффекты качества света на рост растений и фитохимический состав различаются в зависимости от вида и стадии развития, что делает оптимизацию света для конкретных культур необходимой (Yuan и др., 2025). Предыдущие исследования на салате продемонстрировали, что соотношение красного к синему (RB) свету, равное 3, оптимизирует урожайность, повышает качество листьев и улучшает эффективность использования энергии и воды, подчеркивая критическую роль спектрального состава в культивировании в контролируемой среде (Pennisi и др., 2019). Также Zauli и др. (2024) оценивали соотношения RB 3, 5, 7 и 9 у капусты в фазе «бэби-лиф» (Brassica oleracea), определив соотношение RB 5 как наиболее эффективный спектр для повышения производства и отметив, что видеспецифические реакции на соотношения RB также имеют место.
Хотя VFs часто работают в постоянных условиях, стратегии динамического освещения, которые регулируют интенсивность синего света в зависимости от стадии развития растений и факторов окружающей среды, могут повысить энергоэффективность без ущерба для роста (Kaiser и др., 2024). В естественной среде растения испытывают динамические изменения интенсивности света и спектрального качества, обусловленные такими факторами, как облачность, движение полога и затенение. Растения эволюционно развили адаптивные фоторегуляторные реакции на эти колебания (особенно на короткие длины волн), которые влияют на поведение устьиц, усвоение углерода и эффективность использования воды (Christie, 2007). Основываясь на этой естественной модели, настоящее исследование изучает стратегию динамического освещения, которая модулирует интенсивность красного и синего света ежечасно для повышения устойчивости и ресурсоэффективности в коммерческих VFs. Целью данного исследования было оценить, может ли снижение энергетического вклада синего света посредством почасовой спектральной модуляции поддерживать или улучшать показатели растений в контролируемой среде. Для этого был выбран салат (Lactuca sativa cv. Danstar), поскольку он давно служит модельным видом в исследованиях контролируемой среды и VFs благодаря короткому циклу роста, компактной форме роста, коротким производственным циклам (особенно при уборке в фазе «бэби-лиф») и широкому использованию в исследованиях контролируемой среды (Carotti и др., 2023).
2 Материалы и методы
2.1 Растительный материал и экспериментальная установка
Эксперимент проводился в Nära Sverige AB, коммерческой вертикальной ферме в Стокгольме, Швеция (Рисунок 1). Семена салата (Lactuca sativa cv. Danstar; BASF, Нидерланды) высевались в полистироловые лотки (60 × 40 × 4 см; MODIFORM B.V., Нидерланды) с использованием Quick Plugs (Quick Plug B.V., Нидерланды) и проращивались при относительной влажности 98%. Затем сеянцы переносились в систему приливно-отливного типа под полноспектральным светодиодным освещением (Valoya L28/AP673L) при плотности фотосинтетического фотонного потока (PPFD) 100 мкмоль м⁻² с⁻¹ в течение 12 дней. Через 14 дней после посева (DAS) сеянцы пересаживались в гидропонные плавающие лотки из полиэтилена высокой плотности (HDPE) (Meteor System, Нидерланды) с плотностью 140 растений м⁻² и подвергались четырем световым обработкам, подробно описанным в разделе 2.2 и Таблице 1. Стандартный питательный раствор Хогланда готовился с электропроводностью (EC) 2,0 мСм см⁻¹ и pH 6,0 и циркулировал в течение 20 минут каждые 2 часа. Питательный состав был следующим: 14 мМ NO3⁻-N, 1,0 мМ NH4⁺-N, 1,0 мМ P, 6,0 мМ K, 4,0 мМ Ca, 2,0 мМ Mg, 2,0 мМ S, 45 мкМ Fe, 1,0 мкМ Cu, 1,0 мкМ Zn, 45 мкМ B, 10 мкМ Mn, 1,0 мкМ Mo. Замкнутая система с автоматическим фертигатором (Priva NutriJet, Нидерланды) корректировала pH и EC дважды в день. Условия окружающей среды регулировались на уровне 22 °C/19 °C день/ночь, относительная влажность 60–70%, а CO2 обогащался до 1200 ppm в течение фотопериода (06:00–22:00). Для исследования использовалась центральная часть сектора приливно-отливного культивирования, в пределах которой было создано двенадцать отдельных отсеков (каждый площадью 0,5 м², Рисунок 1). Обработки случайным образом распределялись по отсекам, с 3 повторностями на отсек, и деструктивные уборки проводились на 7, 14 и 21 день после пересадки (DAT) для четырех световых обработок с целью определения показателей роста растений.
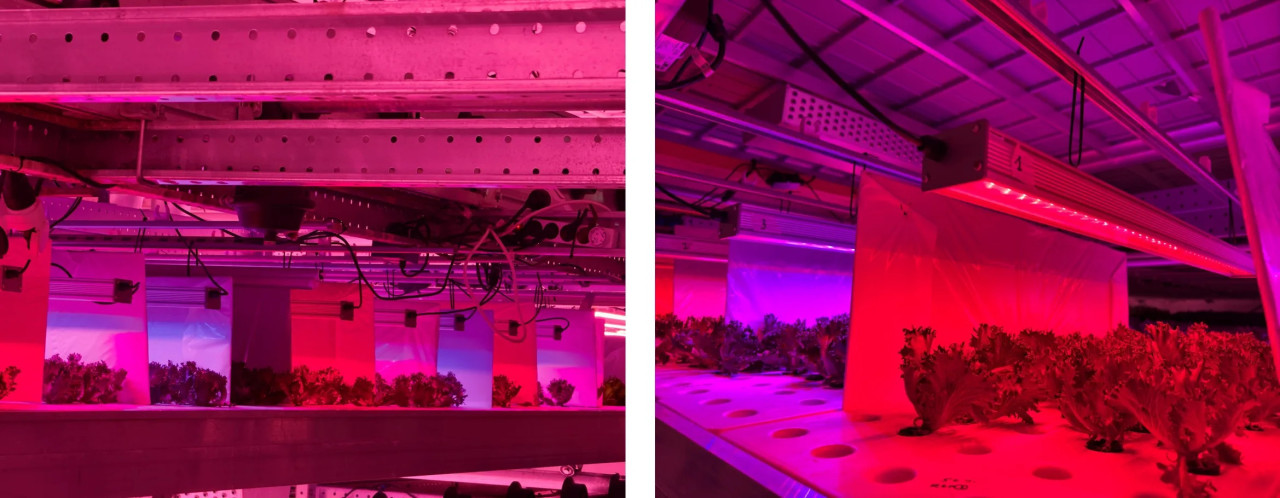
Рисунок 1 Обзор экспериментальной установки в Nära Sverige AB, коммерческой вертикальной ферме, расположенной в Стокгольме, Швеция. Для данного исследования было построено двенадцать светоизолированных отсеков, каждый площадью 0,5 м².
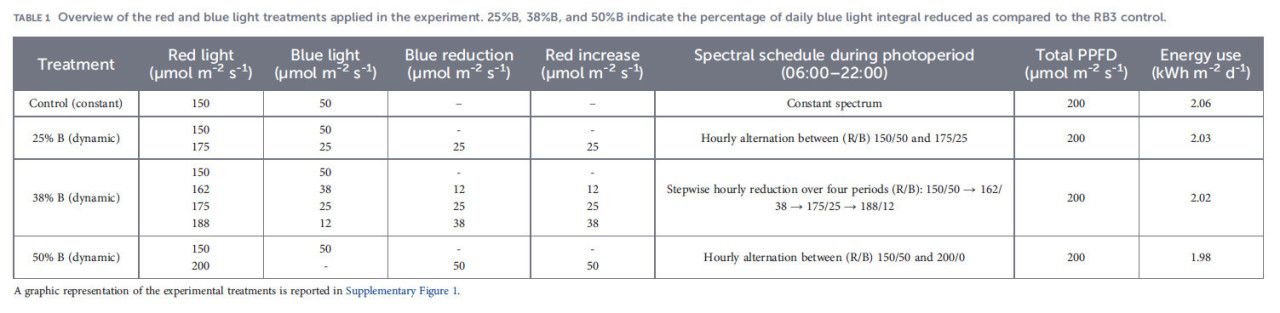
Таблица 1 Обзор обработок красным и синим светом, примененных в эксперименте. 25%B, 38%B и 50%B указывают процент снижения суточного интеграла синего света по сравнению с контролем RB3.
2.2 Световые обработки
Освещение обеспечивалось интегрированной светодиодной панелью (Crocus Labs GmbH, Германия), излучающей узкополосные красные (660 нм) и синие (450 нм) длины волн. Система позволяла осуществлять точный независимый контроль PPFD красного и синего света, обеспечивая динамическую модуляцию посредством предварительно запрограммированных спектральных рецептов, управляемых через специализированное программное обеспечение. Световые обработки тщательно калибровались с использованием спектрометра LI-180 (LI-COR Biosciences, США) для поддержания общего PPFD на уровне 200 ± 5 мкмоль м⁻² с⁻¹. Были реализованы четыре режима освещения, подробно описанные в Таблице 1. Следуя протоколу освещения, разработанному Pennisi и др. (2019) для салата, RB = 3 (RB3: красный 150 мкмоль м⁻² с⁻¹ и синий 50 мкмоль м⁻² с⁻¹) был принят в качестве контрольной обработки, обеспечивая его непрерывно в течение 16-часового фотопериода в сутки. В отличие от контроля, сравнивались три режима динамического освещения, в которых суточный интеграл синего (B) света был снижен на 25%, 38% или 50% (25% B, 38% B и 50% B соответственно, Таблица 1) по сравнению с контрольным потоком синих фотонов. Для поддержания общего PPFD в динамических обработках постоянным на уровне 200 мкмоль м⁻² с⁻¹ снижение потока синих фотонов компенсировалось пропорциональным увеличением потока красных фотонов. В то время как контроль обеспечивал постоянный RB3 в течение всего фотопериода, в динамических обработках RB3 периодически изменялся путем снижения синего света с почасовым чередованием. В частности: (1) обработка 25% B почасово чередовала RB3 с 175 мкмоль м⁻² с⁻¹ красного и 25 мкмоль м⁻² с⁻¹ синего; (2) обработка 38% B использовала ступенчатую схему снижения синего света, уменьшая его в четыре почасовых периода, как указано в Таблице 1 (ступень 1 контроль RB3, ступень 2 162/38, ступень 3 175/25 и ступень 4 188/12 мкмоль м⁻² с⁻¹ красного/синего излучения соответственно); (3) обработка 50% B почасово чередовала RB3 с 200 мкмоль м⁻² с⁻¹ монохроматического красного света. Графическое представление экспериментальных обработок показано в Дополнительном рисунке 1.
2.3 Морфологические измерения и компоненты анализа роста
Растения убирались на 7, 14 и 21 DAT. Отбиралось по пять растений на повторность, что составило 15 растений на обработку. Сырая масса побега (г FW растение⁻¹) регистрировалась при каждой уборке, в то время как корни не отслеживались, поскольку они оставались погруженными в уплотненный субстрат и, следовательно, были исключены из анализа. Сырая урожайность (кг FW м⁻²) определялась путем пересчета средней сырой массы растения на плотность посадки, использованную в эксперименте (140 растений м⁻²). Сухая масса побега (г DW растение⁻¹) измерялась после высушивания образцов при 65 °C в течение 72 часов, а содержание сухого вещества (DMC, %) рассчитывалось как отношение сухой массы побега к сырой. Высота растения (см) измерялась от корневой шейки до верхушки с помощью линейки. Площадь листьев (см² растение⁻¹), исключая семядоли, определялась по цифровым изображениям, проанализированным с помощью приложения Easy Leaf Area для смартфонов (Калифорнийский университет, США) (Easlon and Bloom, 2014), и использовалась для расчета индекса площади листьев (LAI, м² м⁻²). Удельная площадь листьев (SLA, см² г⁻¹ сухой массы листьев) рассчитывалась как отношение общей площади листьев к сухой массе листьев, в то время как отношение массы листьев (LWR, г листьев г⁻¹ DW) определялось как отношение сухой массы листьев к общей сухой биомассе побега. Аналогично, отношение площади листьев (LAR, см² г⁻¹ DW) рассчитывалось как отношение площади листьев (см²) к общей сухой биомассе побега.
Для оценки эффекта динамического и постоянного освещения на разных стадиях роста цикла рассчитывались относительная скорость роста (RGR, г DW г⁻¹ DW сут⁻¹, Уравнение 1) и чистая ассимиляционная способность (NAR, г DW см⁻² листьев сут⁻¹, Уравнение 2) по формуле Williams (1946), как приведено ниже:
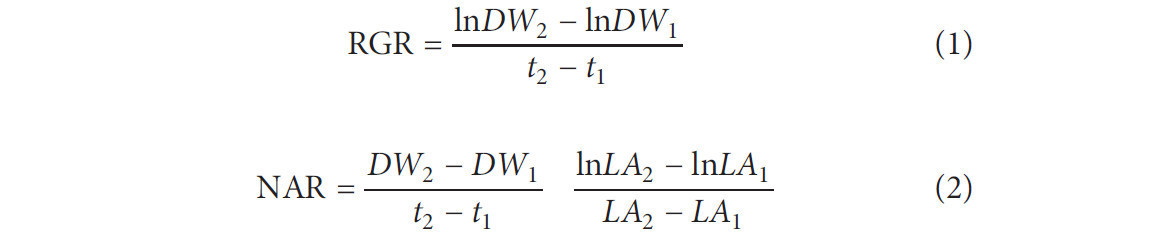
Где DW2 и DW1, а также LA2 и LA1 представляют сухие массы и площадь листьев соответственно в начале (t1) и в конце (t2) периода роста. Хотя деструктивные измерения при уборке проводились каждые 7 дней, а именно на 0, 7, 14 и 21 DAT, RGR и NAR рассчитывались только один раз за весь период роста культуры с 0 по 21 DAT для оценки влияния стратегий освещения на общие показатели роста культуры (Carotti и др., 2024).
2.4 Эффективность использования ресурсов
Эффективность использования световой энергии (L-EUE, г FW кВт·ч⁻¹) рассчитывалась как отношение сырой урожайности к совокупному потреблению электроэнергии лампами (кВт·ч м⁻²) для каждого рецепта спектральной комбинации при каждой уборке (7, 14 и 21 DAT). Сначала совокупное потребление электроэнергии лампами было получено на основе трехдневного мониторинга с использованием счетчиков мощности, установленных для каждой световой обработки. Затем рассчитывалось суточное энергопотребление на единицу площади поверхности (кВт·ч м⁻² сут⁻¹) и приводилось в Таблице 1, а совокупное энергопотребление (кВт·ч м⁻²) рассчитывалось для каждого периода уборки (7, 14, 21 DAT) и использовалось для расчета L-EUE. Аналогично, эффективность использования света (LUE, г DW моль⁻¹) определялась как отношение сухой массы к совокупному падающему фотосинтетическому фотонному потоку в течение каждого периода времени между пересадкой и уборками (7, 14 и 21 DAT). Эффективность затрат выражалась как производственная себестоимость на килограмм сырой урожайности (€ кг⁻¹ FW), рассчитанная путем деления общих расходов на освещение на квадратный метр, исходя из оптовой цены на электроэнергию в Швеции 0,036 € кВт·ч⁻¹ (FfE, 2024), на соответствующую сырую урожайность. Потребление энергии на освещение регистрировалось только на этапе производства, чтобы сосредоточить сравнительный анализ между обработками. Эффективность использования земельной площади (SUE, кг FW м⁻² год⁻¹) оценивалась путем определения потенциальной урожайности, определяемой как общая сырая масса побега (исключая корни и семядоли), собранная с экспериментальной площади культивирования 0,5 м² на обработку. Исходя из продолжительности цикла культуры 7, 14 и 21 DAT, было рассчитано количество циклов выращивания в год, соответствующее 49, 25 и 17 циклам культивирования в год соответственно. Все значения были нормализованы к площади культивирования и выражены в кг сырой массы м⁻² год⁻¹ (SUE, кг FW м⁻² год⁻¹). Полудневный интервал между циклами был включен для учета уборки, технического обслуживания (включая очистку и санитарную обработку системы) и посева для нового цикла выращивания.
2.5 Относительное содержание хлорофилла
Относительное содержание хлорофилла в листьях оценивалось в день уборки на 7, 14 и 21 DAT с помощью портативного измерителя хлорофилла в листьях (SPAD-502, Konica Minolta, Токио, Япония) путем проведения трех измерений на каждом из двух наиболее развитых листьев (Pennisi и др., 2020).
2.6 Экспериментальный дизайн и статистический анализ
Эксперимент проводился с использованием полностью рандомизированного дизайна (CRD) в секторе приливно-отливного культивирования, с четырьмя световыми обработками, каждая повторялась трижды в отдельных отсеках и распределялась случайным образом (Дополнительный рисунок 2). В каждый момент уборки (7, 14 и 21 DAT) измерения проводились на 15 растениях на обработку. Для минимизации краевых эффектов и поддержания постоянной плотности посадки убранные растения заменялись краевыми или буферными растениями, не использовавшимися для дальнейших измерений. Перед анализом данные проверялись на нормальность и однородность дисперсии. Переменные, соответствовавшие этим допущениям, анализировались с помощью однофакторного дисперсионного анализа (ANOVA) с последующим апостериорным тестом Тьюки на 5% уровне значимости (p < 0,05). Для переменных, не соответствовавших допущениям нормальности, данные преобразовывались с использованием функции orderNorm из пакета bestNormalize (Peterson and Cavanaugh, 2020) для достижения нормальности. Этот подход применялся к высоте растений (7 DAT), производственной себестоимости (7 и 21 DAT) и содержанию хлорофилла (14 DAT). Хотя статистическая значимость определялась с использованием преобразованных данных, все рисунки и таблицы представляют обратно преобразованные (исходные) средние значения и стандартные ошибки для облегчения биологической интерпретации. Этот выбор также обеспечил согласованное представление по всем временным точкам уборки, поскольку эти переменные требовали преобразования только на определенных стадиях цикла роста. Все статистические анализы выполнялись в RStudio (версия 2.2.2) с использованием пакета agricolae, в то время как графики готовились с использованием Microsoft Excel (версия 16.16.27).
3 Результаты
3.1 Влияние постоянного и динамического освещения на накопление биомассы
Рисунок 2 иллюстрирует влияние постоянного или динамического освещения на агрономические (урожайность и DMC), морфологические (высота растений и индекс площади листьев) и физиологические (содержание хлорофилла) параметры салата в различные сроки уборки (7, 14 и 21 DAT). На ранней стадии роста (7 DAT) сырая урожайность (кг FW м⁻²) не была значительно затронута ни одной из протестированных световых обработок (Рисунок 2A). Аналогичная тенденция наблюдалась для индивидуальной сырой и сухой массы, составивших в среднем 1,01 г FW растение⁻¹ и 0,09 г DW растение⁻¹ соответственно (Дополнительная таблица 1). Однако содержание сухого вещества (DMC) было выше при динамических обработках 25% B и 38% B (в среднем 9,5%), в то время как динамическая обработка 50% B дала самый низкий DMC (8,7%) (Рисунок 2B). Контрольная обработка (постоянный RB3) показала промежуточные значения DMC, но различия с динамическими обработками не были статистически значимыми на 7 DAT (Рисунок 2B). На 14 DAT не было обнаружено значительных различий между световыми обработками по сырой урожайности (Рисунок 2A), DMC (Рисунок 2B), сырой и сухой массе растений (Дополнительная таблица 1), со средними значениями 0,55 кг FW м⁻², 10%, 4,26 г FW растение⁻¹ и 0,40 г DW растение⁻¹ соответственно. Тем не менее, с 14 по 21 DAT наибольшее увеличение сырой урожайности произошло при динамическом освещении 25% B с приростом на 223%, в то время как контроль увеличился только на 122% (Рисунок 2A). На 21 DAT обработка 25% B достигла наивысшей урожайности (1,88 кг FW м⁻²), значительно превысив контроль и обработку 50% B примерно в 1,6 и 1,3 раза соответственно (Рисунок 2A). Сухая масса следовала аналогичной тенденции, хотя значительных различий между постоянными или динамическими световыми обработками не было обнаружено (в среднем 0,81 DW растение⁻¹) при финальной уборке (Дополнительная таблица 1). Между 7 и 21 DAT DMC снизился на 33% при динамическом освещении, тогда как при постоянном освещении RB3 он увеличился на 3%, что привело к увеличению в 1,37 раза по сравнению с динамическими обработками при финальной уборке (Рисунок 2B).
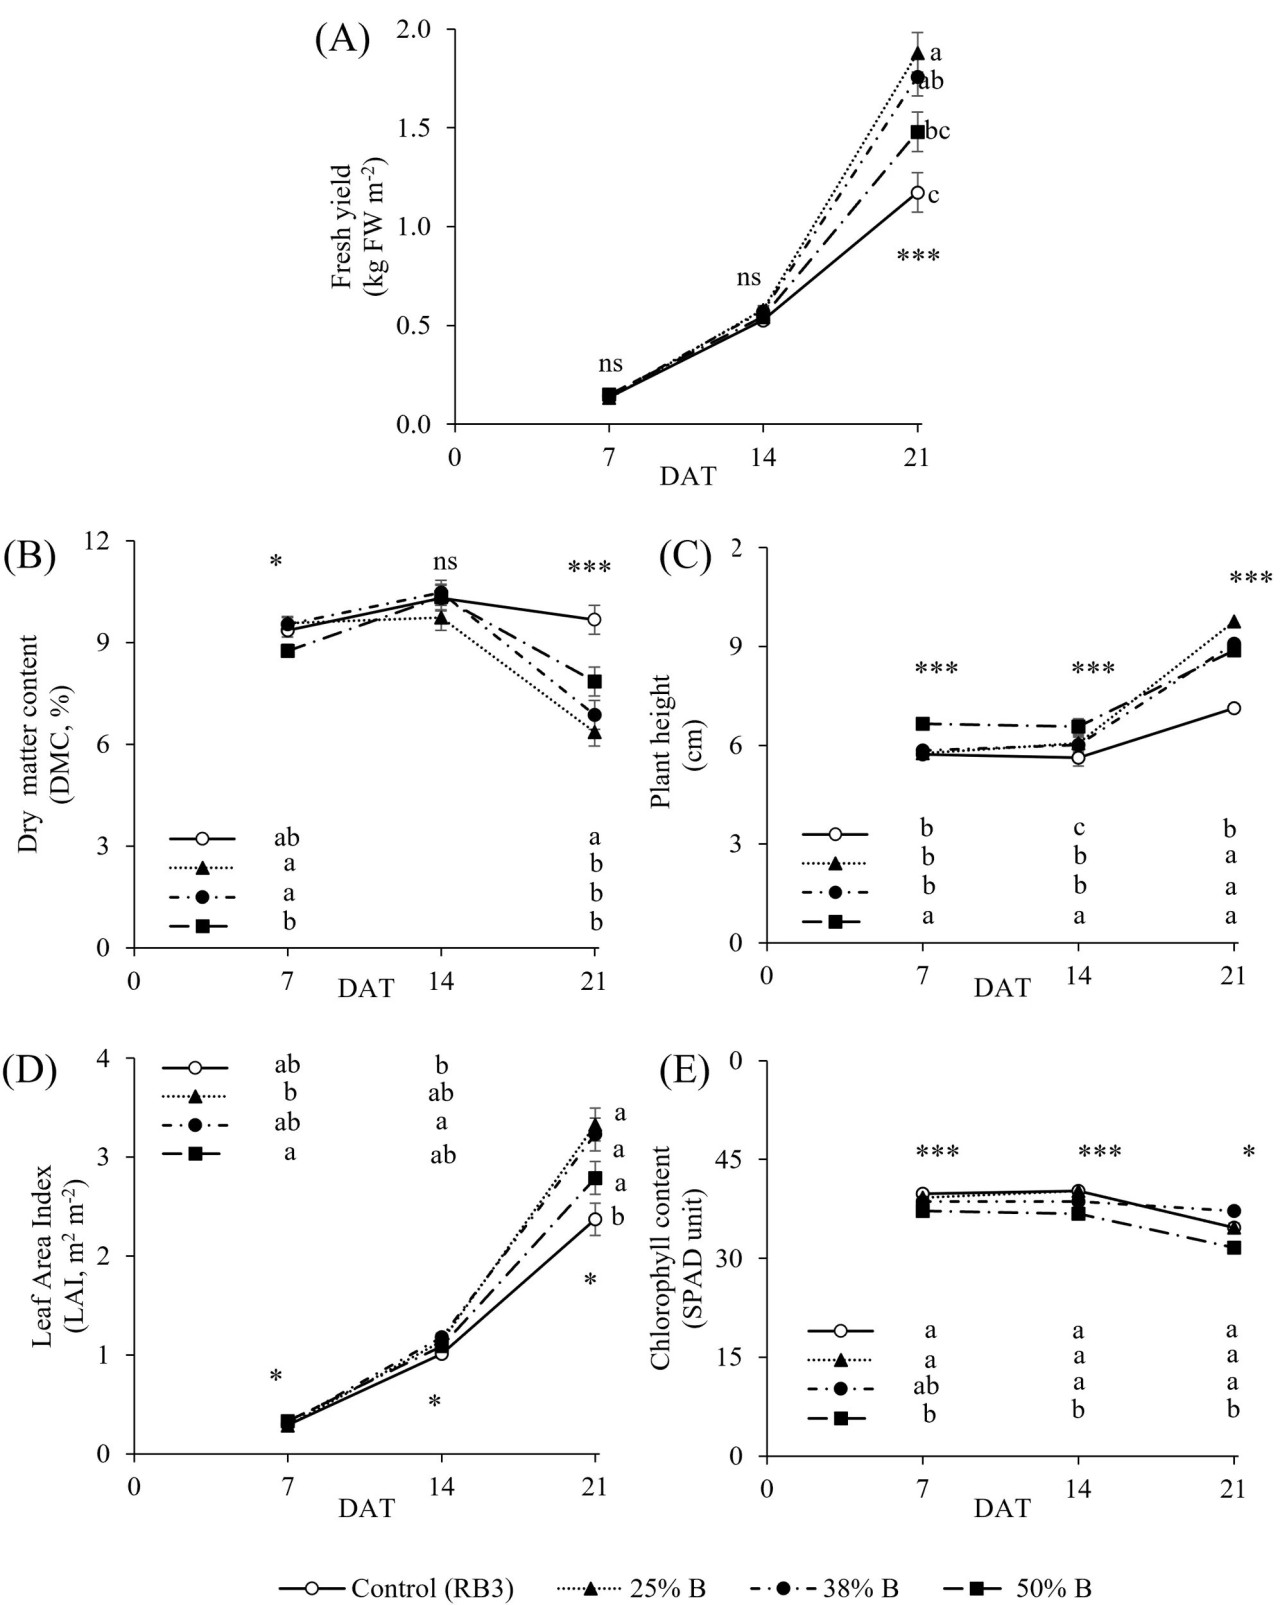
Рисунок 2 Влияние различных световых обработок на (A) сырую урожайность (кг FW м⁻²), (B) содержание сухого вещества (DMC, %), (C) высоту растений (см), (D) индекс площади листьев (LAI, м² м⁻²) и (E) содержание хлорофилла (единицы SPAD) в различные сроки уборки (7, 14 и 21 день после пересадки, DAT). Разные буквы указывают на значительные различия между обработками в каждой временной точке, в то время как звездочки обозначают значительные различия (*p ≤ 0,05 и ***p ≤ 0,001), а ns означают «незначимо». Значения представляют средние ± стандартная ошибка.
3.2 Влияние постоянного и динамического освещения на морфологическую реакцию растений
Растения, выращенные при динамическом освещении 50% B, были значительно выше на протяжении всех стадий роста по сравнению с контрольной обработкой (7,12 см), достигая 8,8 см при финальной уборке (Рисунок 2C). Примечательно, что на начальной стадии (7 DAT) высота контрольных растений была сопоставима с таковой в обработках 25% B и 38% B, которые были значительно ниже, чем при обработке 50% B (Рисунок 2C). Однако при последующих уборках (14 DAT и 21 DAT) контроль стабильно демонстрировал более компактную высоту растений, чем динамические световые обработки (Рисунок 2C). На ранней стадии роста (7 DAT) наивысший LAI был зарегистрирован при световой обработке 50% B (LAI, 0,33 м² м⁻²), в то время как обработка 25% B показала наименьшее значение (LAI, 0,28 м² м⁻²); контроль и обработка 38% B оставались статистически сопоставимыми с другими (Рисунок 2D). На 14 и 21 DAT динамическое освещение 38% B дало значительно более высокий LAI (в 1,2 и 1,4 раза соответственно), чем контроль (который имел LAI 1,1 и 2,37 м² м⁻², Рисунок 2D), и обработка 25% B также превзошла контроль на 21 DAT по развитию LAI. В целом, значительных различий в LAI между постоянным освещением RB3 и динамической обработкой 50% B на протяжении всего цикла роста не наблюдалось (Рисунок 2D).
3.3 Влияние постоянного и динамического освещения на содержание хлорофилла в листьях
Что касается относительного содержания хлорофилла, контрольная обработка стабильно поддерживала более высокие уровни SPAD на протяжении всего цикла культуры по сравнению с динамической обработкой 50% B, которая показала самые низкие значения (Рисунок 2E). Содержание хлорофилла в контроле было в 1,06, 1,09 и 1,17 раза выше, чем при обработке 50% B на 7, 14 и 21 DAT соответственно (Рисунок 2E). Интересно, что динамические обработки 25% B и 38% B не отличались значительно от контроля ни на одной из измеренных стадий роста (Рисунок 2E).
3.4 Влияние постоянного и динамического освещения на рост
На финальной стадии уборки (21 DAT) динамическое освещение с различными долями синего света (25%, 38% и 50% B) повлияло на показатели роста салата по сравнению с постоянным контролем RB3 (Рисунок 3). Обработка 25% B значительно увеличила сырую массу растений по сравнению с контролем (Рисунок 3A), что в основном объясняется большим содержанием воды в побегах, о чем свидетельствует отсутствие значительных различий в сухой массе и вызванное этим значительное снижение DMC (Рисунок 3A). Поскольку сухая масса не была значительно затронута обработкой 25% B, RGR также не показал значительных изменений при этой стратегии освещения (Рисунок 3A). В то же время NAR снизился при обработке 25% B, а LAR значительно увеличился, что было обусловлено более высокими SLA и LWR (Рисунок 3A). Аналогичная картина в компонентах роста наблюдалась между контролем RB3 и обработкой 38% B, с увеличением сырой массы растений на 50%. Однако в этом случае небольшое увеличение LWR не было значительным (Рисунок 3B). В отличие от двух предыдущих стратегий динамического освещения, обработка 50% B не значительно улучшила сырую массу растений, а также не повлияла на другие компоненты роста (DW, RGR, NAR, LAR и SLA). Единственными исключениями были DMC, который также был снижен на 19% при обработке 50% B, а также LWR, показавший скромное, но значительное увеличение на 0,86% (Рисунок 3C).
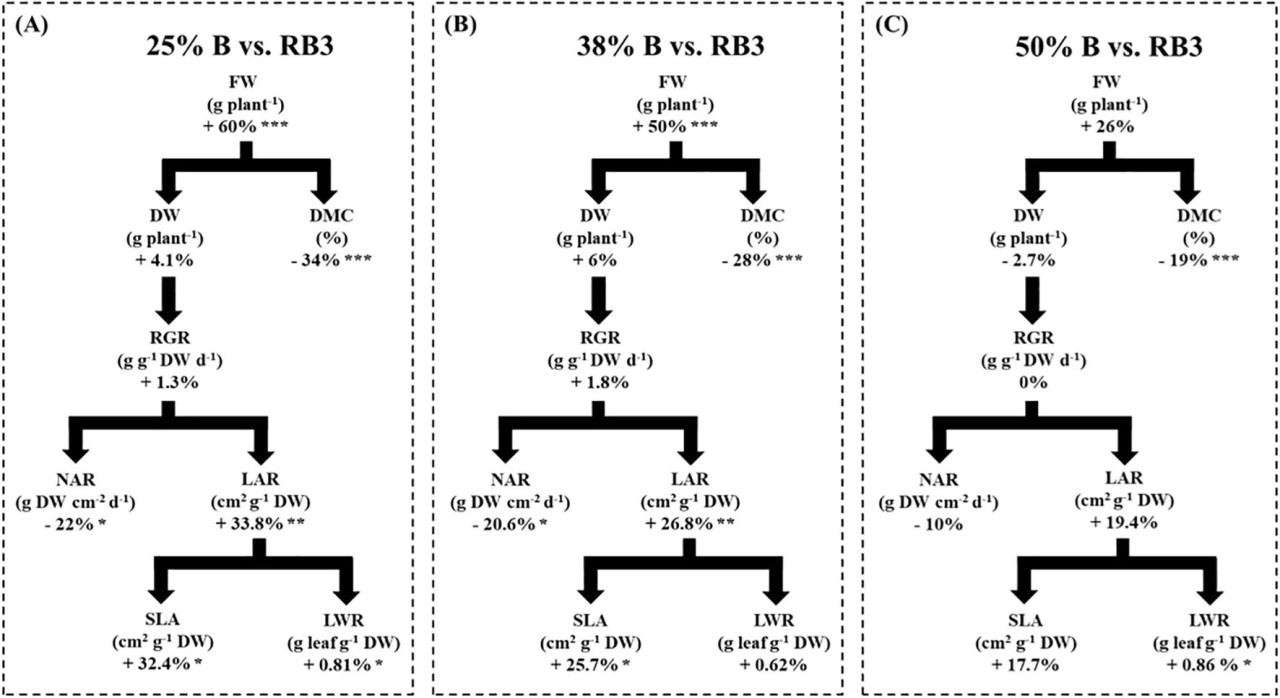
Рисунок 3 Влияние стратегий динамического освещения по сравнению с контролем (постоянный RB3) на компоненты роста салата на 21 день после пересадки. (A) Контроль RB3 против 25% B, (B) Контроль RB3 против 38% B и (C) Контроль RB3 против 50% B. Процентные значения указывают на увеличение или уменьшение относительно контроля (RB3). Звездочки обозначают значительные различия по сравнению с RB3 согласно однофакторному ANOVA (*p ≤ 0,05, **p ≤ 0,01, ***p ≤ 0,001). Измеряемые параметры включают сырую массу (FW, г растение⁻¹), сухую массу (DW, г растение⁻¹), содержание сухого вещества (DMC, %), относительную скорость роста (RGR, г г⁻¹ DW сут⁻¹; Формула 1), чистую ассимиляционную способность (NAR, г DW см⁻² сут⁻¹; Формула 2), отношение площади листьев (LAR, см² г⁻¹ DW), удельную площадь листьев (SLA, см² г⁻¹ DW), площадь листьев (LA, см² растение⁻¹) и отношение массы листьев (LWR, г листьев г⁻¹ DW).
3.5 Влияние постоянного и динамического освещения на эффективность использования световой энергии, производственную себестоимость и использование площади
Эффективность использования световой энергии (L-EUE) показала значительные различия между постоянными и динамическими световыми обработками, но только при финальной уборке (Рисунок 4A). На 7 DAT контроль RB3 не показал значительных различий по сравнению с динамическими обработками, хотя обработка 50% B показала значительно более высокую L-EUE (10,90 г FW кВт·ч⁻¹) по сравнению с обработкой 25% B, где наблюдалось наименьшее значение (9,26 г FW кВт·ч⁻¹; Рисунок 4A). На 14 DAT значительных различий в L-EUE среди световых обработок, включая как динамические, так и постоянные режимы, не наблюдалось, значения оставались согласованными по всем обработкам и составили в среднем 19,6 г FW кВт·ч⁻¹ (Рисунок 4A). На 21 DAT наивысшая L-EUE наблюдалась при обработке 25% B (44,1 г FW кВт·ч⁻¹) и 38% B (41,5 г FW кВт·ч⁻¹), показав заметные улучшения по сравнению с контролем RB3 (27,1 г FW кВт·ч⁻¹), который имел наименьшее значение L-EUE. Промежуточная L-EUE была зарегистрирована при обработке 50% B (35,6 г FW кВт·ч⁻¹), которая значительно не отличалась от других протестированных обработок (Рисунок 4A).
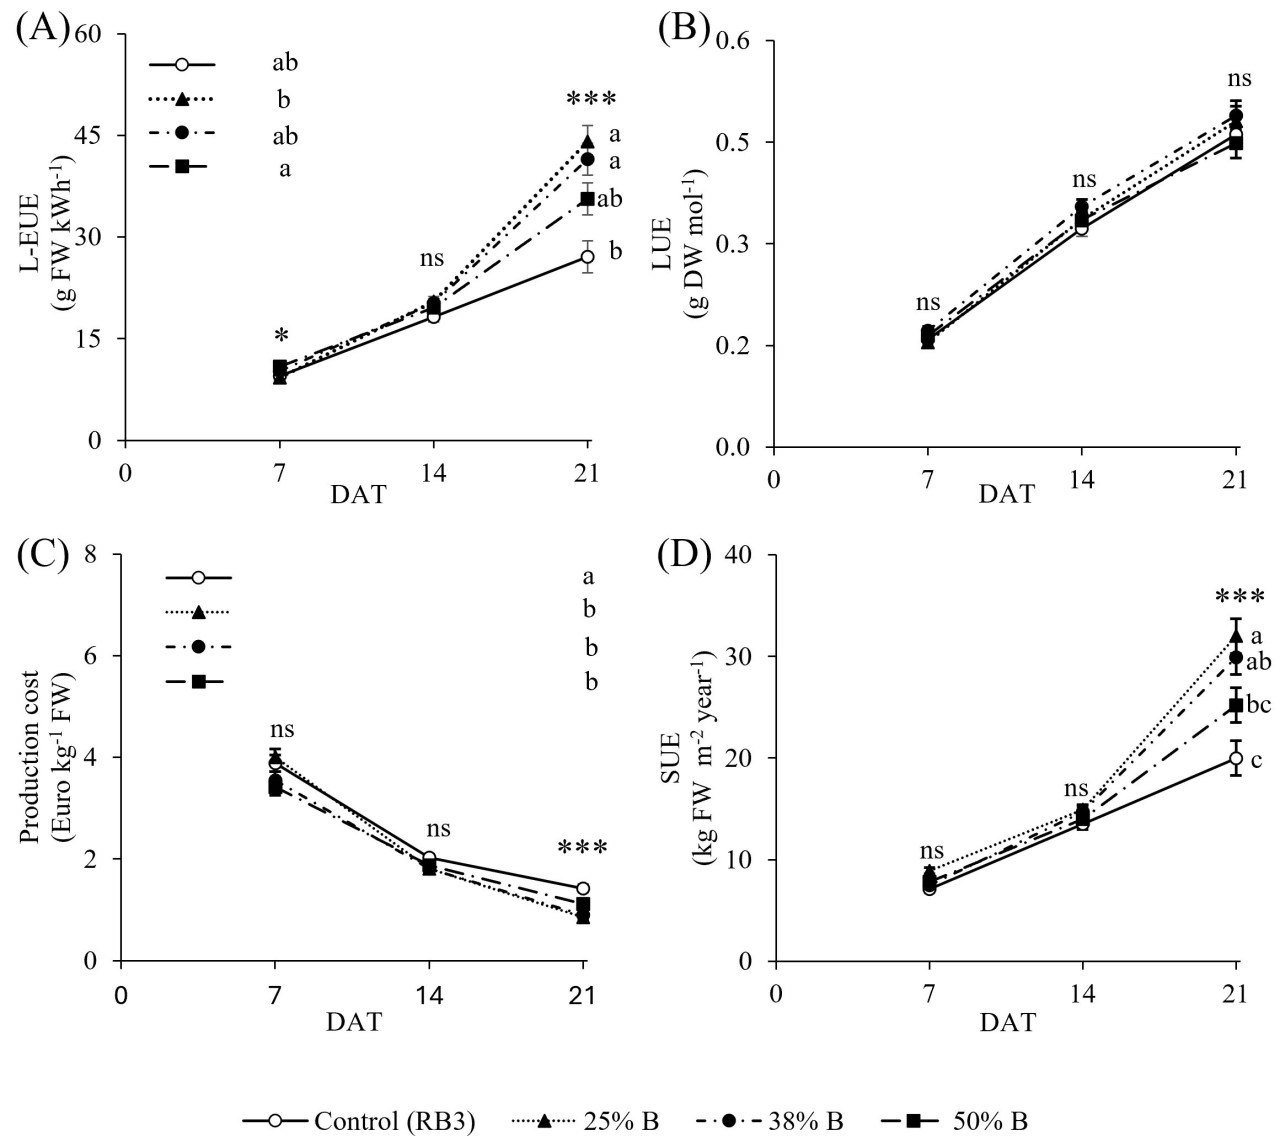
Рисунок 4 Влияние различных световых обработок на (A) эффективность использования световой энергии (L-EUE, г FW кВт·ч⁻¹), (B) эффективность использования света (LUE, г DW моль⁻¹), (C) производственную себестоимость (€ кг⁻¹ FW) и (D) эффективность использования площади (SUE, кг FW м⁻² год⁻¹) в различные сроки уборки (7, 14 и 21 день после пересадки, DAT). Разные буквы указывают на значительные различия между обработками в каждой временной точке для p ≤ 0,05 (*) и p ≤ 0,001 (***), в то время как ns означают «незначимо». Значения представляют средние ± стандартная ошибка (n = 15).
Эффективность использования света (LUE) стабильно увеличивалась на протяжении стадий роста (Рисунок 4B) без значительных различий между обработками на любой стадии роста, со средними значениями 0,16, 0,33 и 0,47 г DW моль⁻¹ на 7, 14 и 21 DAT соответственно (Рисунок 4B).
Производственная себестоимость (€ кг⁻¹ FW, Рисунок 4C) показала картину, обратную тенденции L-EUE (Рисунок 4A). В то время как на 7 и 14 DAT значительных различий среди протестированных обработок не наблюдалось, на 21 DAT динамические световые обработки 25% B (0,85 € кг⁻¹), 38% B (0,89 € кг⁻¹) и 50% B (1,1 € кг⁻¹) достигли наименьших производственных затрат, все значительно ниже контроля (1,42 € кг⁻¹) на 40% или более (Рисунок 4C). Не было значительных различий в эффективности использования площади (SUE) на первых двух стадиях роста (Рисунок 4D), в то время как при финальной уборке SUE (Рисунок 4D) отражала значения сырой урожайности (Рисунок 2A). За годовой производственный цикл динамические световые обработки превзошли контрольную, достигнув максимальной SUE 32 кг FW м⁻² год⁻¹ при 25% B; однако обработка 50% синего света значительно не отличалась от 38% B или контроля (Рисунок 4D). В целом, наибольшее увеличение SUE между 14 и 21 DAT наблюдалось при обработке 25% B, показав увеличение в 2,2 раза, в то время как контроль показал наименьшее увеличение в 1,5 раза (Рисунок 4D).
4 Обсуждение
4.1 Влияние динамического освещения на рост растений, содержание сухого вещества и индексы роста
Эффекты света на растения сложны, поскольку он регулирует фотосинтез, рост и различные процессы развития (Wu и др., 2025). В спектре света красные и синие длины волн сильно поглощаются хлорофиллами (a и b) и регулируют различные физиологические процессы, включая прорастание семян и морфологию листьев, что в конечном итоге приводит к развитию растений и общей урожайности (Luo и др., 2024). Наши результаты ясно показали, что эффект динамического освещения был виден в зависимости от того, когда проводился сбор данных (Рисунок 2A). Однако индивидуальная сырая и сухая масса не были значительно затронуты на ранних стадиях роста (7 и 14 DAT) в отношении постоянного или динамического облучения (Дополнительная таблица 1), как аналогично сообщалось Carotti и др. (2022) и Jin и др. (2023b), что позволяет предположить, что реакции растений на изменения соотношений красного и синего света могут быть не немедленными, а становиться очевидными только на более поздних стадиях. Действительно, при финальной уборке наивысшее производство сырой биомассы наблюдалось при обработках 25% B и 38% B (Рисунок 2A), что согласуется с предыдущими результатами Van Brenk и др. (2024), показавшими, что более высокая суточная доля синего света, применяемая в течение дня или в определенные периоды, может снижать сырую урожайность. Однако снижение синего света на 50% (обработка 50% B) не увеличило сырую урожайность и было статистически сопоставимо с контролем RB3, как подтверждается аналогичными результатами Chen и др. (2021), которые сообщили, что красный свет стимулирует рост салата только при дополнении достаточным количеством синего света. Такое поведение может быть следствием почасового монохроматического красного света, подаваемого в течение фотопериода, что, вероятно, индуцировало у растений, выращенных при 50% B, состояние синдрома красного света, о чем свидетельствует наименьшее содержание хлорофилла, показанное на Рисунке 2E (Hogewoning и др., 2010). Более низкое содержание хлорофилла при ограниченном снабжении синим светом (50% B) согласуется с предыдущими результатами (Snowden и др., 2016; Fan и др., 2013), подчеркивая критическую роль синего света в поддержании биосинтеза хлорофилла.
Учитывая, что накопление сухой биомассы не было затронуто спектральными условиями (Дополнительная таблица 1), увеличение сырой массы, наблюдаемое при динамических режимах (Рисунок 2A), является результатом изменений в водном статусе тканей, а не усиленного усвоения углерода, что подтверждается более низким DMC (Рисунок 3). Роль красного и синего света в открывании устьиц была подробно рассмотрена Matthews и др. (2020), которые подчеркивают их прямое участие в различных физиологических путях. В то время как красный свет координирует открывание устьиц с фотосинтезом для удовлетворения спроса на CO2, механизм синего света считается независимым от усвоения углерода, приводя к дополнительному увеличению проводимости устьиц, даже если фотосинтез насыщен красным светом (Matthews и др., 2020). Исходя из этого, мы можем утверждать, что в нашем эксперименте постоянный RB3, который обеспечивал наивысший уровень синего света, возможно, испытывал постоянно более высокую проводимость устьиц в течение дня по сравнению с динамическими световыми обработками, где переход к низкому снабжению синим светом мог периодически снижать открывание устьиц. Хотя мы осознаем, что это должно быть подтверждено физиологическими измерениями (транспирация и проводимость устьиц), эта гипотеза подтверждается результатами Zait и др. (2017), которые наблюдали снижение транспирации и проводимости устьиц у банана при переключении красно-синего спектра на монохроматический красный. Мы предполагаем, что сдвиг света от высокой к низкой доступности синего света мог изменить отношения тургора клеток при 25% B и 38% B: во время закрытия устьиц тургор клеток увеличивается из-за высокого потока воды в ксилему, определяемого высокими условиями синего света перед внезапным световым сдвигом, что движет расширение листьев, приводя к более высокому SLA (Рисунок 3A). Однако эта гипотеза не согласуется с результатами Zait и др. (2017), которые сообщили о более высоком давлении тургора у растений, выращенных при постоянном монохроматическом синем свете, чем при монохроматическом красном, хотя авторы не измеряли давление тургора в условиях меняющегося освещения. Отсутствие исследований давления тургора клеток после переключения красно-синего освещения все еще ограничивает наше понимание физиологического процесса, лежащего в основе более высокой сырой урожайности, наблюдаемой при 25% B и 38% B, поэтому мы рекомендуем дальнейшие исследования для выяснения водных отношений растений при меняющемся освещении. Тем не менее, это преимущество гидратации имеет прямое коммерческое воздействие: листовые зеленые культуры (95% содержания воды) оцениваются на рынке по сырой биомассе, поэтому динамическое освещение могло бы повысить эффективность выручки даже без дополнительного прироста углерода. Однако чрезмерная гидратация потенциально может снизить срок хранения, что следует оценить в будущих экспериментах.
В нашем эксперименте динамическое освещение также повлияло на морфологию растений. Высота растений была снижена при постоянном облучении RB3 по сравнению с динамической обработкой (Рисунок 2C), что привело к более компактной архитектуре полога. Аналогичные реакции были ранее сообщены Snowden и др. (2016), которые показали, что увеличение синего света значительно снижало длину стебля у томата, огурца и перца при более высоких уровнях облученности, в то время как Naznin и др. (2019) сообщили о прогрессивном снижении высоты растений салата и капусты по мере увеличения доли синего света в спектрах с преобладанием красного, подчеркивая ключевую роль спектрального состава в контроле морфологии растений. Кроме того, при финальной уборке (21 DAT) LAI был значительно ниже при постоянном освещении RB3 по сравнению с динамическими обработками 25% B и 38% B, но не при 50% B (Рисунок 2D). Эффект синего света уже хорошо документирован в отношении структуры полога: высокое снабжение синим светом ответственно за снижение расширения листьев у салата и, следовательно, более низкий LAI (Van Brenk и др., 2024; Pennisi и др., 2019).
Наши результаты ясно показывают, что компоненты роста были затронуты динамическим освещением (Рисунок 3). RGR объединяет два ключевых компонента роста растений: LAR (произведение SLA и LWR, которое отражает инвестиции в полог) и NAR (представляющий фотосинтетическую эффективность на единицу площади листьев) (Medek и др., 2007). Световые обработки значительно не повлияли на RGR при финальной уборке в нашем исследовании (Рисунок 3). Аналогично, Jadhav и др. (2025) сообщили, что постоянная скорость роста наблюдалась у салата в различных условиях окружающей среды (т.е. плотности посадки), отражая видеспецифический адаптивный механизм, который поддерживает общую эффективность накопления биомассы. Напротив, NAR резко снизился при динамических обработках 25% B и 38% B по сравнению с постоянным освещением (Рисунки 3A, B), указывая на потенциальный сдвиг в распределении ресурсов, что согласуется с концепциями анализа роста (Poorter и др., 2012). Растение компенсировало более низкую фотосинтетическую эффективность на единицу площади листьев (NAR) путем значительного увеличения LAR, что подтверждается более высокими значениями LAI (Рисунок 2D) и, более конкретно, более высоким SLA (Рисунок 3), указывая на большее расширение листьев на единицу массы. Хотя LWR также был значительно затронут динамическим освещением, его вклад в LAR незначителен (Рисунок 3). Подтверждая эти результаты, предыдущие исследования показали, что более высокий уровень синего света (как в RB3 по сравнению со стратегиями динамического освещения) часто способствует развитию более толстых, более фотосинтетически эффективных листьев, даже если общая площадь листьев или рост биомассы могут значительно не увеличиваться. Например, Hogewoning и др. (2010) обнаружили, что увеличение доли синего света усиливает максимальную фотосинтетическую способность у огурца, что объясняется структурными изменениями в хлоропластах и анатомии листьев. Аналогично, Wang и др. (2024a) сообщили, что синий свет увеличивал удельную массу листьев и толщину листьев у огурца. В то же время общая биомасса не обязательно возрастала, указывая на сдвиг в сторону более плотных, более эффективных листьев, а не на общее ускорение роста. Эти морфологические изменения часто помогают растениям оптимизировать захват света и усвоение углерода в различных световых условиях. Эта адаптивная физиолого-морфологическая реакция при динамических световых режимах поддерживала скорости роста, максимизируя рыночно значимую сырую биомассу путем повышения содержания воды в листьях.
4.2 Динамическая модуляция красно-синего света улучшает использование ресурсов, снижая себестоимость производства
Поскольку искусственное освещение является основным энергетическим вкладом в VFs, оптимизация эффективности освещения имеет решающее значение для минимизации эксплуатационных затрат. Эффективность системы освещения зависит как от распределения спектральной энергии, так и от эффективности преобразования электрической энергии в свет (Kozai, 2013). Следовательно, повышение энергоэффективности требует понимания того, как динамическое соотношение красного и синего света влияет как на рост растений, так и на энергопотребление. В этом исследовании динамическая световая обработка с 50% B значительно повысила эффективность использования световой энергии (L-EUE) на ранней стадии роста (7 DAT) по сравнению с обработкой 25% B (Рисунок 4A), поддерживая устойчивый рост растений (Рисунок 2A) при более низком энергопотреблении (Таблица 1). К финальной уборке (21 DAT) преимущество стратегии динамического освещения 50% B уменьшилось, став сопоставимым с таковым при постоянном освещении RB3. Напротив, динамическая обработка 25% B увеличила L-EUE в 1,6 раза по сравнению с контролем, подчеркивая критическую роль красного света в повышении энергоэффективности (Рисунок 4A). Эти результаты согласуются с предыдущими результатами. Хотя красный свет энергетически более эффективен, включение 10–25% синего света максимизирует общую эффективность освещения и показатели растений (Pennisi и др., 2019). Аналогично, другое исследование показало, что LUE и EUE достигали пика при 90% красного и 10% синего, тогда как эффективность снижалась ниже 100% красного, демонстрируя, что даже небольшая доля синего необходима для полной реализации энергетических преимуществ красного света (Chen и др., 2021). Их результат согласуется с нашими результатами, которые показывают, что обработка 50% B не значительно повысила L-EUE при финальной уборке, поскольку она, вероятно, была ограничена отсутствием синего света в периоды монохроматического красного света в течение дня.
Эффективность использования света (LUE) у салата сильно зависит от условий культивирования. Растения, выращенные в VFs, достигают до 0,55 г DW моль⁻¹ по сравнению с 0,39 г моль⁻¹ в теплицах и 0,23 г моль⁻¹ в открытом грунте (Jin и др., 2023a). Также подсчитано, что VFs могут приблизиться к теоретическому максимуму LUE (от 1,26 до 1,81 г DW моль⁻¹) благодаря точному контролю факторов окружающей среды, что делает их высокоэффективными для производства салата (Chen и др., 2021). В нашем эксперименте LUE не была затронута постоянным или динамическим облучением; однако она прогрессивно увеличивалась с 0,16 до 0,5 г DW моль⁻¹ к финальной уборке (21 DAT; Рисунок 4B). Аналогично, Jadhav и др. (2025) сообщили о значении LUE 0,45 г DW моль⁻¹ у салата в сопоставимых условиях освещения на 29 день после посева.
Производственные затраты были более чем на 40% ниже при любой динамической световой обработке, чем при постоянном освещении RB3 (0,85 против 1,42 € кг⁻¹ FW; Рисунок 4C), демонстрируя потенциал энергосбережения от спектрального планирования. Поскольку экономические показатели напрямую связаны с урожайностью сырой биомассы, динамическая регулировка соотношения красного и синего света может помочь поддерживать или даже увеличивать производительность при снижении потребления электроэнергии.
4.3 Динамическая модуляция красно-синего света максимизирует эффективность использования земельной площади
Наконец, эффективность использования земли или площади (SUE) является ключевым фактором в повышении продовольственной безопасности и решении ограничений традиционного сельского хозяйства. В объекте VFs культивирование происходит в вертикальном измерении, что делает его высокоэффективным с точки зрения производства на требуемую площадь (Orsini and Zauli, 2023). В нашем эксперименте SUE отражала сырую урожайность культуры (Рисунок 2A), при этом динамическая световая обработка 25% B производила 32 кг FW м⁻² год⁻¹, что на 60% больше по сравнению с постоянным контролем RB3 (20 кг FW м⁻² год⁻¹, Рисунок 4D). Наши результаты попадают в широкий диапазон продуктивности салата в исследовательских условиях, рассмотренный Pennisi и др. (2025), с медианой 48,3 кг м⁻² год⁻¹. Аналогично, Zauli и др. (2024) сообщили, что промежуточные соотношения красного:синего (например, RB 5) оптимизировали урожайность капусты в фазе «бэби-лиф» и SUE до 54 кг FW м⁻² год⁻¹. В нашем эксперименте SUE между 14 и 21 DAT увеличилась на 114% при динамическом освещении 25% B по сравнению с всего 48% в постоянной обработке (RB3), указывая на преимущество динамически управляемого спектра синего и красного освещения для формирования масштабируемых производственных моделей. Будущая оптимизация должна уточнить сроки уборки, поскольку резкое увеличение SUE между 14 и 21 DAT указывает на критическое окно для максимизации урожайности на единицу площади.
5 Заключение
Данное исследование предоставляет новые insights в повышение устойчивости в системах вертикального земледелия путем изучения эффектов динамического и постоянного освещения на рост, морфологию, физиологию и эффективность использования ресурсов салата. Мы продемонстрировали, что возможно снизить снабжение синим светом при культивировании салата и, таким образом, энергопотребление на освещение путем динамической регулировки красного и синего освещения на основе почасовых изменений в течение фотопериода. Хотя снижение синего света на 50% не улучшило общие показатели культуры по сравнению с постоянным RB3, снижение синего света на 25–38% увеличило сырую урожайность культуры, что, в свою очередь, улучшило эффективность использования световой энергии и снизило затраты на освещение на 40%, делая их масштабируемыми стратегиями для коммерческого вертикального земледелия.
В нашем эксперименте повышенная сырая урожайность при динамическом освещении была связана со скоординированными морфологическими и физиологическими изменениями, что привело к более высокому содержанию воды в растениях, подчеркивая влияние динамического освещения на водные отношения растений. Однако отсутствие физиологических измерений (например, транспирации, проводимости устьиц и фотосинтеза) является ключевым ограничением нашей работы, не позволяющим нам прояснить роль динамического красно-синего освещения в водных отношениях растений. Будущие исследования должны пролить свет на механизмы, лежащие в основе более высокого поглощения воды растениями при динамическом освещении, и их влияние на эффективность использования воды культурой. Кроме того, будущая работа должна интегрировать подходы оценки жизненного цикла (LCA) и расчета стоимости жизненного цикла (LCC) для оценки полного экологического и экономического воздействия динамического освещения для различных видов культур. Более того, сочетание спектрального управления с параметрами контроля окружающей среды (например, температурой, воздушным потоком, влажностью и CO2) будет необходимым для оптимизации общей эффективности системы. Такая междисциплинарная оптимизация может помочь в формировании будущего развития низкоэнергетических и ресурсоэффективных систем VFs для устойчивого городского производства продовольствия.
Дополнительные материалы
Дополнительные материалы к данной статье можно найти онлайн по адресу: https://www.frontiersin.org/articles/10.3389/fpls.2026.1827422/full#supplementary-material
Jadhav V, Cerasola VA, Nilsson K, Ghio M, Martin M, Pennisi G, Gianquinto G and Orsini F (2026) Optimizing growth efficiency and energy economics in vertical farming through dynamic reduction of blue light in lettuce baby leaf (Lactuca sativa L.). Front. Plant Sci. 17:1827422. doi: 10.3389/fpls.2026.1827422
Перевод статьи «Optimizing growth efficiency and energy economics in vertical farming through dynamic reduction of blue light in lettuce baby leaf (Lactuca sativa L.)» авторов Jadhav V, Cerasola VA, Nilsson K, Ghio M, Martin M, Pennisi G, Gianquinto G and Orsini ., оригинал доступен по ссылке. Лицензия: CC BY. Изменения: переведено на русский язык
Фото: Designed by Freepik




Комментарии (0)