
Как полив и азот влияют на налив зерна и урожай озимой пшеницы
Оптимизация внесения воды и азота в критические фазы развития пшеницы жизненно важна для повышения потенциала урожайности озимой пшеницы и обеспечения продовольственной безопасности на Северо-Китайской равнине, где водные ресурсы становятся всё более ограниченными. Трёхлетний полевой эксперимент (сезоны выращивания озимой пшеницы 2019–2022 гг.) был проведён в системе капельного орошения для оценки влияния трёх водосберегающих режимов орошения на формирование урожая озимой пшеницы: DI — орошение и дробное внесение азота в фазы выхода в трубку, колошения, цветения и молочной спелости; TJ — однократное орошение и внесение азота в фазу выхода в трубку; TJA — орошение в фазы выхода в трубку и цветения с однократным внесением азота в фазу выхода в трубку.
Аннотация
Результаты показали, что DI значительно увеличил урожайность зерна по сравнению с TJA и TJ, главным образом за счёт повышения массы тысячи зёрен и числа зёрен на единицу площади без снижения числа колосьев. Увеличение массы тысячи зёрен было связано с более высоким индексом площади листьев, повышенной активностью антиоксидантных ферментов, сниженным накоплением малонового диальдегида и устойчиво более высокой фотосинтетической способностью в средне-поздний период налива зерна. DI также улучшил как скорость, так и продолжительность налива зерна, особенно в быстрой и медленной фазах, и увеличил размер зерна и благоприятную морфологию зерна (длина, ширина, толщина, округлость и площадь семени), тем самым способствуя большей конечной массе зерна. Эти результаты демонстрируют, что согласованное управление водными и азотными ресурсами в ключевые фазы развития способствует как формированию числа зёрен, так и реализации массы зерна, обеспечивая эффективную агрономическую стратегию для повышения потенциала урожайности и устойчивости пшеницы в районах с ограниченными водными ресурсами.
1 Введение
Как важный пшеницепроизводящий регион Китая, Северо-Китайская равнина (СКР) играет ключевую роль в обеспечении национальной продовольственной безопасности. Сезонные осадки в этом регионе неравномерны и непредсказуемы. Вследствие этого в последние десятилетия в производстве пшеницы часто применялось высокообъёмное орошение для максимизации урожайности (Liu и др., 2023; Bao и др., 2024). В последние годы изменение климата усилилось. Как частота, так и интенсивность засух возросли, что ещё больше обострило региональную нехватку воды (Zhang и др., 2025). Кроме того, с учётом текущих стратегий орошения и ограничений водных ресурсов как площадь возделывания пшеницы, так и эффективно орошаемые земли на СКР достигли своих максимальных порогов (Yang и др., 2022). Развитие водосберегающего орошения необходимо для поддержания производства пшеницы и повышения будущего потенциала урожайности.
Урожайность пшеницы определяется числом зёрен на единицу площади (произведение числа колосьев на единицу площади и числа зёрен в колосе) и массой тысячи зёрен (Bicego и др., 2024). Со времён «Зелёной революции» селекционеры пшеницы в основном увеличивали число зёрен на единицу площади посредством генетических улучшений, направленных на повышение урожайности (Slafer и др., 2022). Однако многие исследования сообщали об отрицательной корреляции между числом зёрен на единицу площади и массой тысячи зёрен (Beral и др., 2022; Molero и др., 2019; Vicentin и др., 2024). По мере увеличения числа зёрен на единицу площади до высоких уровней урожайность пшеницы приближается к плато. Одновременно увеличение числа зёрен часто сопровождается снижением средней массы зерна, что ограничивает дальнейшее повышение урожайности (Quintero и др., 2018; Vicentin и др., 2024). Хотя недавние исследования были сосредоточены на физиологических и генетических основах компромисса между массой зерна и числом зёрен (Calderini и др., 2021; Vicentin и др., 2024), исследований по решению этой проблемы посредством агрономических практик остаётся мало. Таким образом, агрономические стратегии, повышающие массу зерна без снижения числа зёрен, критически важны для повышения потенциала урожайности пшеницы.
Период после цветения знаменует установление потенциальной урожайности зерна, при этом конечная фактическая урожайность зерна зависит от успешной реализации массы зерна (Brinton and Uauy, 2019). Конечная масса зерна зависит от достаточного снабжения ассимилятами. Эти ассимиляты образуются за счёт ремобилизации предцветочных резервов и послецветочного фотосинтеза. Последний вносит преимущественный вклад в налив зерна и конечную массу зерна у пшеницы (Slafer и др., 2023). Общепризнано, что ограниченное снабжение азотом и водой ускоряет старение листьев, сокращает продолжительность площади зелёных листьев, снижает фотосинтетическую способность и уменьшает массу зерна и урожайность (Yan и др., 2019). Достаточное снабжение азотом критически важно для повышения засухоустойчивости пшеницы. Оно увеличивает содержание хлорофилла в листьях и антиоксидантную способность, а также продлевает период налива зерна, в конечном итоге способствуя большей массе зерна и урожайности (Ru и др., 2023; Ullah и др., 2022). Предыдущие исследования продемонстрировали, что умеренное послецветочное дефицитное орошение может экономить воду, одновременно смягчая старение листьев, поддерживая фотосинтетическую эффективность и обеспечивая достаточный налив зерна. Масса зерна в первую очередь определяется процессом налива зерна с сильной зависимостью от скорости налива, продолжительности или их совместного эффекта (Wang и др., 2024; Zhang и др., 2024). Хотя раннее цветение и задержанное старение листьев способствуют большему размеру зерна при созревании, скорость налива зерна более критична, чем продолжительность, в определении индивидуальной массы зерна (Motzo и др., 2010; Xie и др., 2016). При абиотических стрессах, таких как жара и засуха, скорость налива зерна ускоряется, но период налива зерна сокращается (Farooq и др., 2014; Yang и др., 2004). Liu и др. (2024) обнаружили, что увеличение норм внесения воды или азота приводило к тенденции снижения средней скорости налива зерна. Следовательно, оптимизация процесса налива зерна пшеницы путём регулирования снабжения водой и азотом является перспективным подходом к улучшению массы зерна и достижению потенциала урожайности.
В производстве озимой пшеницы на СКР при традиционных техниках орошения оптимальным сроком для стабильной урожайности и высокой эффективности использования воды было однократное орошение в фазу выхода в трубку. Напротив, оптимальным сроком для высокой урожайности и высокой эффективности использования воды было двукратное орошение в фазы выхода в трубку и цветения (Li и др., 2005; Xu и др., 2018). Орошение в фазу выхода в трубку приводило к наибольшему числу зёрен на единицу площади и в колосе, тогда как двукратное орошение в фазы выхода в трубку и цветения увеличивало урожайность зерна главным образом за счёт повышения массы тысячи зёрен (Li и др., 2005; Xu и др., 2018). В условиях ограниченного орошения можно ли дополнительно повысить урожайность зерна пшеницы путём оптимизации частоты орошения и внесения азота для стабилизации числа зёрен и увеличения массы зерна? Для решения этого вопроса орошение и азот следует применять своевременно в соответствии с критическими фазами роста, определяющими формирование урожайности озимой пшеницы.
Целью данного исследования было изучить различия между режимами орошения и удобрения в системе капельного орошения с точки зрения урожайности зерна и компонентов урожайности, физиологических признаков фотосинтеза и антиоксидантной системы флагового листа, характеристик налива зерна и морфологических характеристик зерна, а также выяснить механизм, посредством которого оптимизированная частота орошения и внесения азота стабилизирует число зёрен, увеличивает массу зерна и повышает урожайность зерна.
2 Материалы и методы
2.1 Экспериментальный участок и схема
Полевые эксперименты проводились в сезоны выращивания озимой пшеницы 2019−2020, 2020−2021 и 2021–2022 гг. в Современном демонстрационном парке сельскохозяйственной науки и техники Цзяочжоу Циндаоского сельскохозяйственного университета, расположенном на улице Цзяолай (35,53° с.ш., 119,58° в.д.), город Цзяочжоу, провинция Шаньдун, Китай. Тип климата этой территории — тёплый умеренный полувлажный континентальный муссонный климат. Почва на экспериментальном участке представляла собой чёрную почву шацзян, классифицированную как вертисоли согласно Китайской таксономии почв и соответствующую кальциевым вертисолям по системе Всемирной справочной базы почвенных ресурсов (ВСБПР). До начала полевого эксперимента было измерено базовое содержание питательных веществ в почве на глубине 20 см, включая 0,98 г·кг−1 общего азота, 123,2 мг·кг−1 щелочногидролизуемого азота, 28,1 мг·кг−1 доступного фосфора, 132,8 мг·кг−1 доступного калия и 16,7 г·кг−1 органического вещества. Среднесуточная температура и осадки в сезоны выращивания озимой пшеницы показаны на рисунке 1.
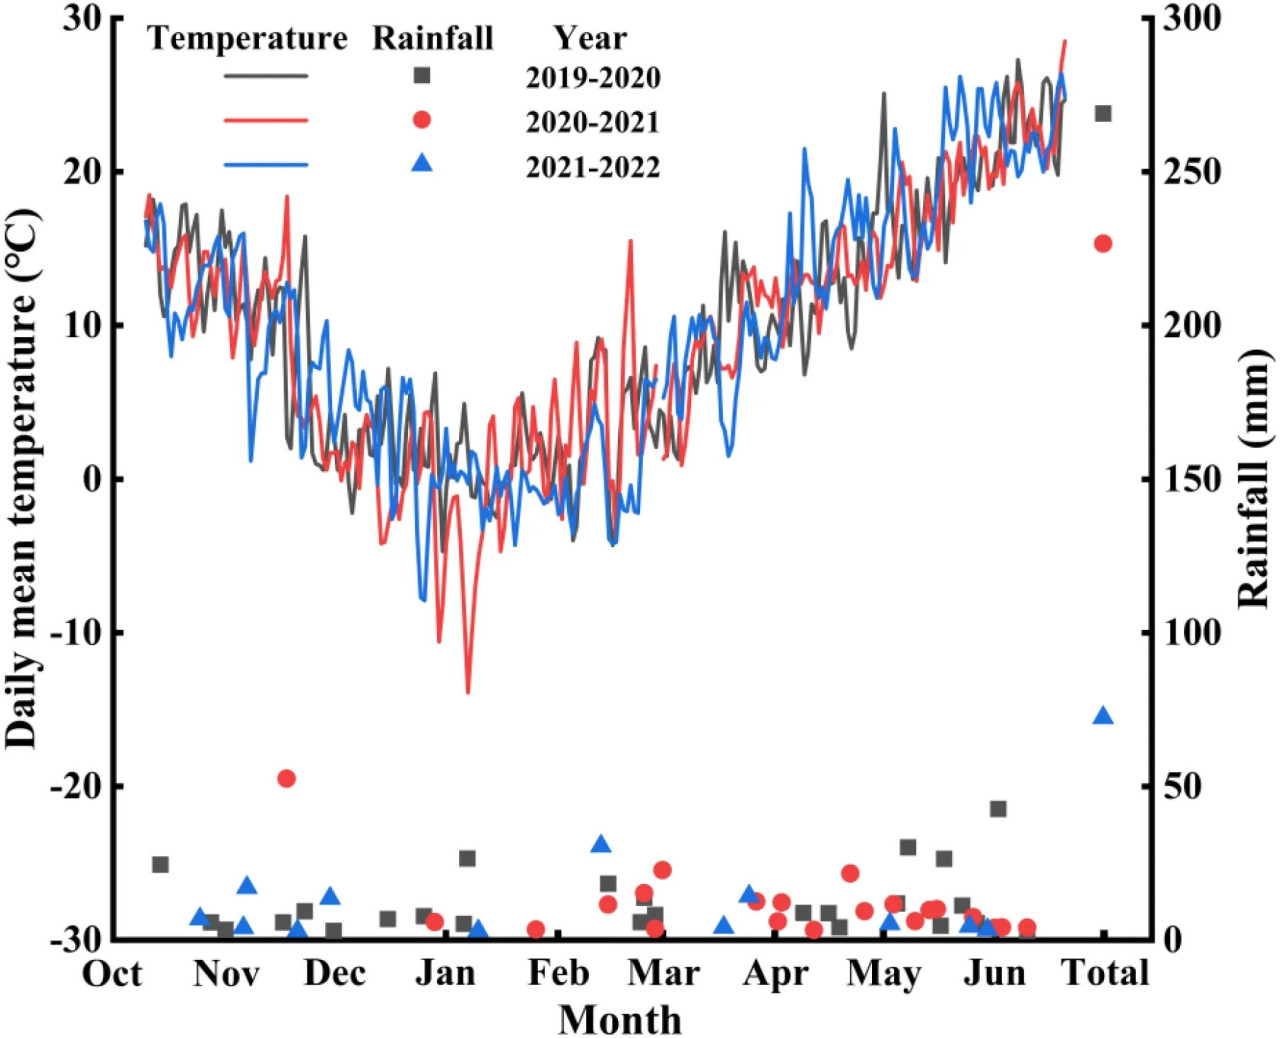
Рисунок 1 Среднесуточная температура и осадки в сезоны выращивания 2019–2022 гг.
Шкала Задокса (Zadoks и др., 1974) использовалась для категоризации фаз развития культуры. В сезоны выращивания пшеницы были установлены три режима дефицитного орошения. В варианте DI применялось по 30 мм орошения в каждую из фаз выхода в трубку (Z31), колошения (Z45), цветения (Z61) и молочной спелости (Z75). В варианте TJA применялось по 60 мм орошения в каждую из фаз выхода в трубку и цветения (Z31 и Z61), тогда как в варианте TJ применялось однократное орошение 60 мм в фазу выхода в трубку (Z31). Общие объёмы орошения для DI, TJA и TJ составили 120, 120 и 60 мм соответственно. Подробные графики орошения показаны в таблице 1. Все варианты орошения орошались через капельные трубки; их длина и диаметр составляли 60 м и 16 мм соответственно. Интервал между соседними капельницами капельных трубок составлял 30 см, а расход капельницы капельной трубки составлял 2,0 л·ч−1. Объём орошения делянки регистрировался с помощью расходомера, установленного в голове системы капельного орошения каждой делянки. Размер каждой делянки составлял 60 м × 5 м, и она состояла из 24 рядов пшеницы с междурядьем 20 см; каждый вариант повторялся три раза в рандомизированном блочном дизайне. Капельная трубка прокладывалась через каждые три ряда пшеницы, а расстояние между капельными трубками составляло 60 см.
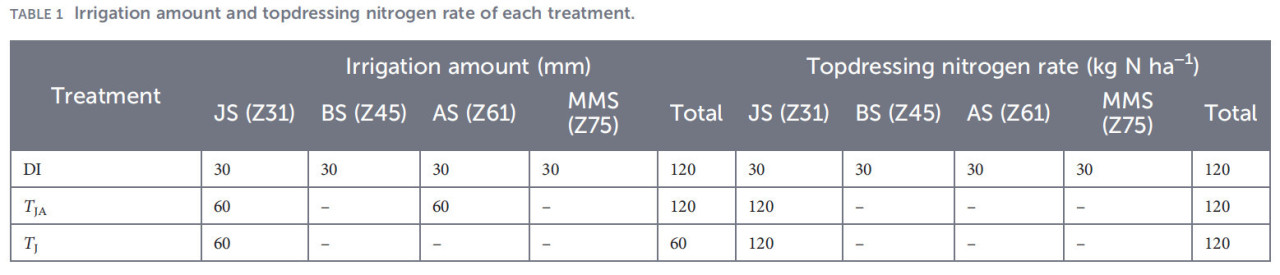
Таблица 1 Объём орошения и норма подкормки азотом для каждого варианта.
Перед посевом 600 кг·га–1 комплексного удобрения (N–P2O5–K2O, 15%–15%–15%; эквивалентно 90–90–90 кг·га–1) было внесено в качестве основного удобрения. В течение вегетационного сезона 120 кг N·га–1 было внесено в качестве подкормки, что в сумме составило 210 кг N·га–1 для всех вариантов. Мочевина, используемая для подкормки, полностью растворялась и подавалась через фертигацию во время поливов. В варианте DI азот был разделён на четыре равные аппликации (30 кг N·га–1) в каждую из фаз выхода в трубку, колошения, цветения и молочной спелости. Напротив, варианты TJA и TJ получали все 120 кг N·га–1 однократно в фазу выхода в трубку. Подробные графики и нормы внесения азота представлены в таблице 1. В эксперименте использовался высокоурожайный сорт озимой пшеницы ‘Jimai22’ (Triticum aestivum L.). Озимая пшеница была посеяна 14 октября 2019 г. и 10 октября 2020 г. с нормой высева 150 кг·га–1. В сезон выращивания 2021–2022 гг. посев был отложен до 28 октября 2021 г. из-за чрезмерных осадков перед оптимальным окном посева. Соответственно, норма высева была увеличена до 200 кг·га–1 в соответствии с местной агрономической практикой для обеспечения адекватного формирования растений в условиях позднего посева. Растения пшеницы были убраны 16 июня 2020 г., 19 июня 2021 г. и 12 июня 2022 г. соответственно. Инсектициды и фунгициды применялись по графику для предотвращения и контроля вредителей и болезней и следовали местной практике в сезоны выращивания пшеницы.
2.2 Отбор проб и измерения
2.2.1 Индекс площади листьев
Площадь зелёных листьев 20 стеблей с каждой делянки измерялась с помощью измерителя площади Li-3000C (LI-COR Inc., Линкольн, NE, США) в фазу цветения (0 дней после цветения [ДПЦ]) и на 7, 14, 21 и 28 ДПЦ, затем рассчитывался индекс площади листьев (ИПЛ).
2.2.2 Параметры газообмена флагового листа
Параметры газообмена флагового листа измерялись в фазу цветения (0 ДПЦ), на 7, 14, 21 и 28 ДПЦ. Измерения проводились с использованием портативной системы фотосинтеза LI-6400 (LI-COR, Линкольн, NE, США). Измерения выполнялись в условиях ясного неба между 09:00 и 12:00 для минимизации суточной изменчивости. Шесть биологических повторностей измерялись на делянку в каждый момент отбора. Чистая скорость фотосинтеза (Pn), скорость транспирации (Tr), устьичная проводимость (Gs) и межклеточная концентрация CO2 (Ci) регистрировались при эталонной концентрации CO2 400 мкмоль·моль−1 и плотности потока фотосинтетических фотонов (ППФФ) 1200 мкмоль·м−2·с−1, обеспечиваемой искусственным источником света. Температура листа поддерживалась на уровне 25 °C ± 1 °C. Скорость потока была установлена на 500 мкмоль·с−1. Дефицит давления паров (ДДП) в листовой камере в среднем составлял 1,6 кПа ± 0,1 кПа во время измерений.
2.2.3 Биохимические анализы антиоксидантной системы флагового листа
Десять образцов флагового листа случайным образом отбирались с каждой делянки в фазу цветения (0 ДПЦ) и на 7, 14, 21 и 28 ДПЦ. Свежие образцы немедленно замораживались в жидком азоте и хранились при − 80 °C до анализа.
Ткань флагового листа массой 0,5 г растиралась с 5 мл экстракционного буфера (0,2 M KH2PO4 и 0,2 M K2HPO4) при 0 °C. Смесь центрифугировалась при 10 000 × g в течение 20 мин при 4 °C, и супернатант разделялся на аликвоты для ферментных анализов (Guo и др., 2015).
Активность супероксиддисмутазы (СОД) определялась путём измерения ингибирования фоторедукции нитросинего тетразолия (НСТ) согласно методу, описанному Wang и др. (2013). Порция супернатанта объёмом 20 мкл переносилась в пробирку и смешивалась с 3 мл реакционной жидкости СОД (0,5 M раствор калий-фосфатного буфера, 130 мМ метионин, 750 мкМ НСТ, 100 мкМ ЭДТА–Na2 и 20 мкМ рибофлавин). Реакционная смесь подвергалась воздействию света 4 000 лк в течение 30 мин. Оптическая плотность определялась при 560 нм с использованием спектрофотометра (Cary60, Agilent Technologies, Санта-Клара, CA, США). Одна единица активности СОД определялась как количество фермента, необходимое для ингибирования фоторедукции НСТ на 50%.
Активность каталазы (КАТ) определялась путём мониторинга начальной скорости разложения H2O2 согласно Tan и др. (2008). Порция супернатанта объёмом 50 мкл переносилась в пробирку и смешивалась с 2,5 мл реакционной жидкости КАТ (0,1 M H2O2 и 0,1 M калий-фосфатный буфер с pH 7,0). Оптическая плотность измерялась трижды при 240 нм с интервалом 1 мин с использованием спектрофотометра.
Концентрация малонового диальдегида (МДА) определялась согласно Quan и др. (2004). Флаговые листья (0,2 г) гомогенизировались в 5 мл 10% трихлоруксусной кислоты (ТХУ) и центрифугировались при 12 000 × g в течение 10 мин. Затем 4,0 мл 0,6% тиобарбитуровой кислоты (ТБК) в 10% ТХУ добавлялись к 2 мл супернатанта. Смесь нагревалась в кипящей воде в течение 15 мин, затем быстро охлаждалась в ледяной бане. После центрифугирования при 12 000 × g в течение 10 мин оптическая плотность определялась при 450, 532 и 600 нм с использованием спектрофотометра. Концентрация МДА выражалась в наномолях на грамм свежей массы (СМ).
2.2.4 Признаки налива зерна
Колосья пшеницы маркировались в начале фазы цветения (Z61) в один и тот же день. Десять маркированных колосьев отбирались с каждой делянки с 7-дневными интервалами с 7-го дня после цветения до 35-го дня после цветения, и все образцы колосьев высушивались в печи при 105 °C в течение 10 мин и при 70 °C до достижения постоянной массы. Зёрна отделялись от колосьев, определялось общее число зёрен и регистрировалась масса зерна. Уравнение Ричардса использовалось для аппроксимации процесса налива зерна (Wang и др., 2024):
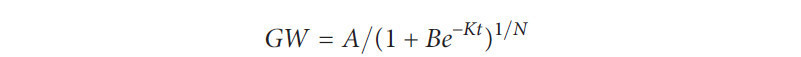
Где GW — масса зерна в процессе налива (мг зерна−1), A — предельная величина роста (мг зерна−1), B — параметр начального значения, K — параметр скорости роста, N — параметр формы уравнения, а t — дни после цветения (день).
Параметры признаков налива зерна рассчитывались следующим образом:
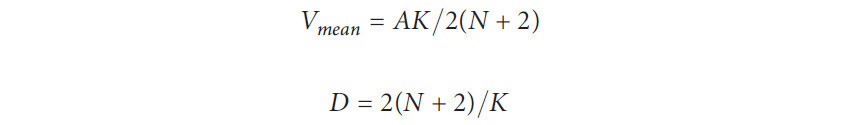
Где Vmean — средняя скорость налива зерна (мг зерна−1 день−1), а D — активная дата налива зерна (день).
Процесс налива зерна можно разделить на три фазы: постепенный рост, быстрый рост и медленный рост, с двумя точками перегиба, обозначенными как T1 (день) и T2 (день). Кроме того, обычно предполагается, что 99% предельного роста является фактическим конечным периодом налива зерна, тогда конечное время обозначается как T0.99 (день), и формула следующая:
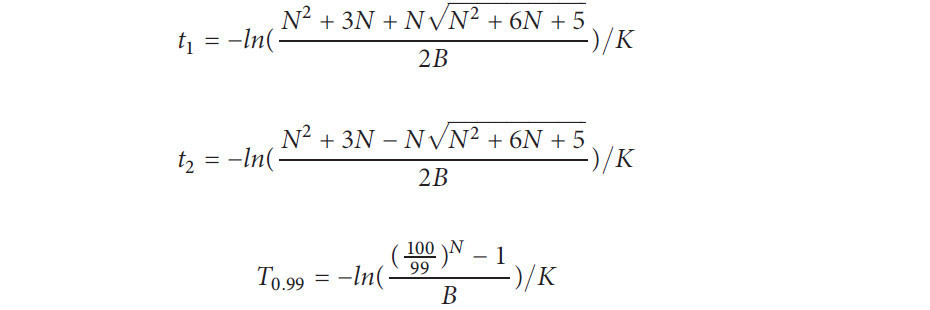
Соответственно, конечная масса зерна в конце фазы постепенного роста, фазы быстрого роста и фазы медленного роста составляет GW1 (мг зерна−1), GW2 (мг зерна−1) и GW3 (мг зерна−1); продолжительность и скорость налива зерна фазы постепенного роста, фазы быстрого роста и фазы медленного роста можно рассчитать следующим образом:
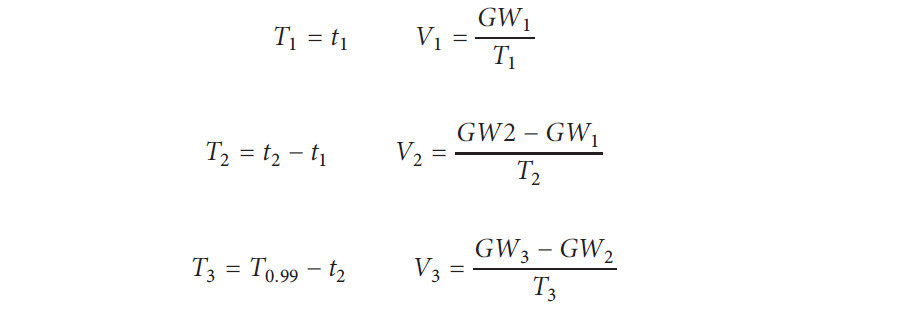
Где T1 (день), T2 (день) и T3 (день) — продолжительность фазы постепенного роста, фазы быстрого роста и фазы медленного роста соответственно; а V1 (мг зерна−1 день−1), V2 (мг зерна−1 день−1) и V3 (мг зерна−1 день−1) — скорость налива зерна фазы постепенного роста, фазы быстрого роста и фазы медленного роста соответственно.
2.2.5 Морфологические характеристики зерна при созревании
Морфологические характеристики зерна при созревании (длина зерна, ширина зерна, толщина зерна, соотношение сторон, округлость и средняя площадь зерна) определялись с использованием системы анализа отражённых изображений SeedCount SC6000R (Next Instruments, NSW, Австралия), оснащённой программным обеспечением цифрового анализа изображений. Приблизительно 800–1000 зёрен равномерно распределялись в лотке SeedCount для трёхмерных измерений. В каждый желобок лотка помещалось только одно зерно. Каждый вариант включал три биологические повторности. Соотношение сторон и округлость автоматически рассчитывались системой следующим образом:
"Соотношение сторон"="Длина зерна" ⁄"Ширина зерна" .
"Округлость"=(("Ширина зерна" ⁄"Длина зерна" +"Толщина зерна" ⁄"Длина зерна" +"Толщина зерна" ⁄"Ширина зерна" ))⁄3
2.2.6 Урожайность зерна
Перед уборкой определялись число колосьев и число зёрен в колосе с каждой делянки. Урожайность зерна определялась с соответствующей площади делянки при созревании. Масса тысячи зёрен рассчитывалась путём взвешивания 1000 семян из образца определения урожайности с тремя повторностями. Урожайность зерна и масса тысячи зёрен были стандартизированы к базису влажности 13%.
2.3 Анализ данных
Средние значения вариантов в каждом году сравнивались с использованием теста наименьшей существенной разности (НСР) при p < 0,05. Совместный дисперсионный анализ (ДДА) выполнялся для оценки эффектов года и режима орошения и их взаимодействия с использованием SPSS 20.0 (SPSS Inc., Чикаго, IL, США). Корреляционный анализ Пирсона проводился с использованием процедуры корреляции в SPSS 20.0. Процесс налива зерна аппроксимировался уравнением Ричардса с использованием OriginPro 2021 R (OriginLab Corporation, Нортгемптон, MA, США), и все рисунки были созданы с помощью OriginPro 2021.
3 Результаты
3.1 Урожайность зерна, компоненты урожайности и число зёрен
Как показано в таблице 2, все признаки значительно зависели от года (Г; p < 0,001); орошение (О) также оказывало значительное влияние на большинство признаков, за исключением числа колосьев, тогда как ни один из признаков не подвергался значительному влиянию взаимодействия год × орошение (Г × О). В сезоны выращивания 2019–2022 гг. DI достиг наивысшей урожайности зерна и массы тысячи зёрен, за ним следовал TJA, тогда как TJ показал наименьшие значения. Не было значительной разницы в числе колосьев между DI, TJA и TJ. Число зёрен в колосе в DI было значительно выше, чем в TJ, тогда как значительных различий между DI и TJA или между TJA и TJ не наблюдалось. Наибольшее число зёрен на квадратный метр наблюдалось в DI. В сезон выращивания 2019–2020 гг. число зёрен на квадратный метр в DI было значительно выше, чем в TJA и TJ. Однако значительной разницы в числе зёрен на квадратный метр между DI и TJA или между TJA и TJ в сезоны выращивания 2020–2022 гг. не наблюдалось.
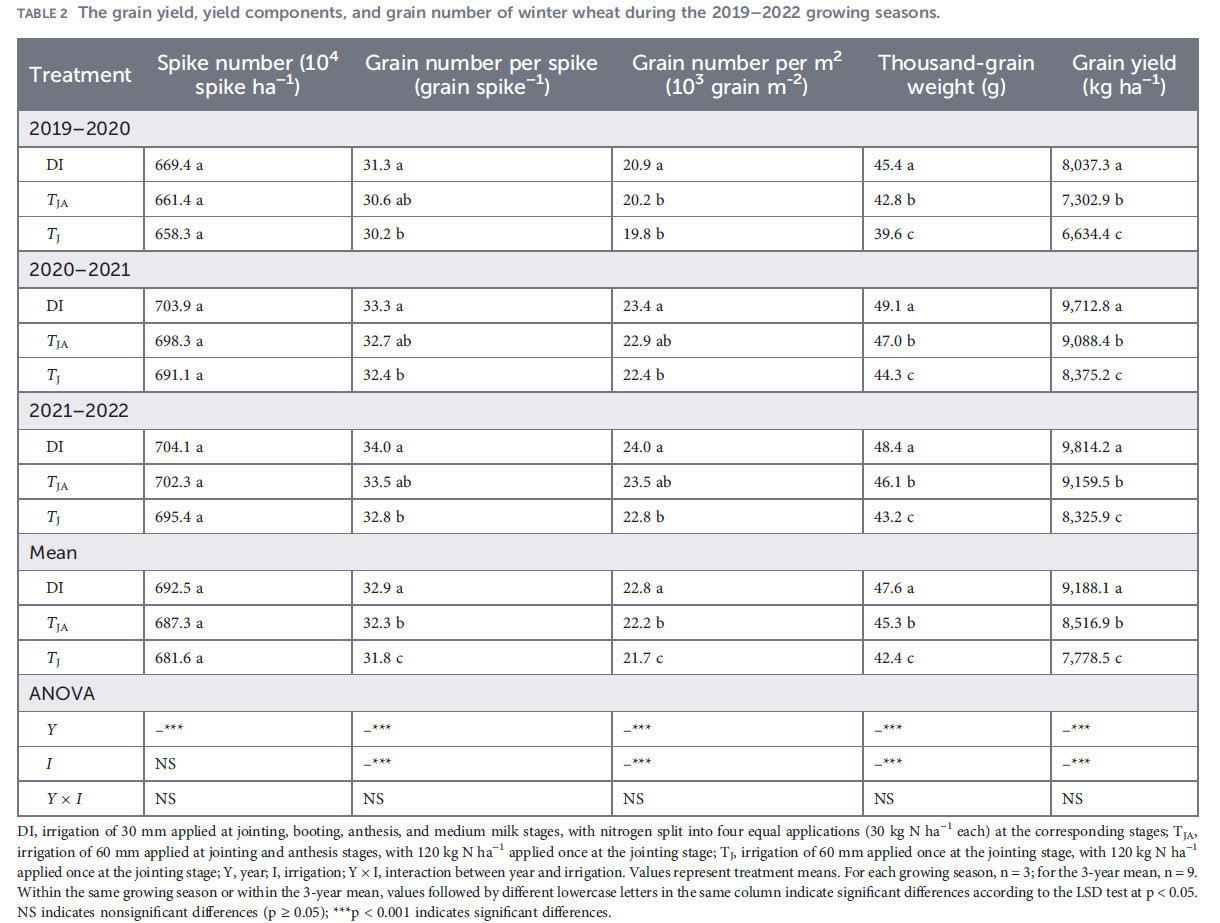
Таблица 2 Урожайность зерна, компоненты урожайности и число зёрен озимой пшеницы в сезоны выращивания 2019–2022 гг.
DI — орошение 30 мм, применяемое в фазы выхода в трубку, колошения, цветения и молочной спелости, с разделением азота на четыре равные аппликации (по 30 кг N·га−1 каждая) в соответствующие фазы; TJA — орошение 60 мм, применяемое в фазы выхода в трубку и цветения, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; TJ — орошение 60 мм, применяемое однократно в фазу выхода в трубку, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; Г — год; О — орошение; Г × О — взаимодействие между годом и орошением. Значения представляют средние значения вариантов. Для каждого сезона выращивания n = 3; для среднего за 3 года n = 9. В пределах одного сезона выращивания или в пределах среднего за 3 года значения, за которыми следуют разные строчные буквы в одном столбце, указывают на значительные различия согласно тесту НСР при p < 0,05. НЗ указывает на незначительные различия (p ≥ 0,05); ***p < 0,001 указывает на значительные различия.
3.2 ИПЛ после цветения
На рисунке 2 показан ИПЛ после цветения в сезоны выращивания за 3 года. Не было значительной разницы в ИПЛ в фазу цветения между DI, TJA и TJ в сезоны выращивания 2019–2022 гг. или на 7 ДПЦ между DI, TJA и TJ в сезон выращивания 2019–2021 гг. На 7 ДПЦ в сезон выращивания 2021–2022 гг. и на 14 ДПЦ в сезоны выращивания 2019–2022 гг. значительной разницы в ИПЛ между DI и TJA не наблюдалось, но оба были значительно выше, чем TJ. На 21 и 28 ДПЦ ИПЛ в DI был заметно выше, чем в TJA и TJ, и ИПЛ в TJA также был заметно выше, чем в TJ.
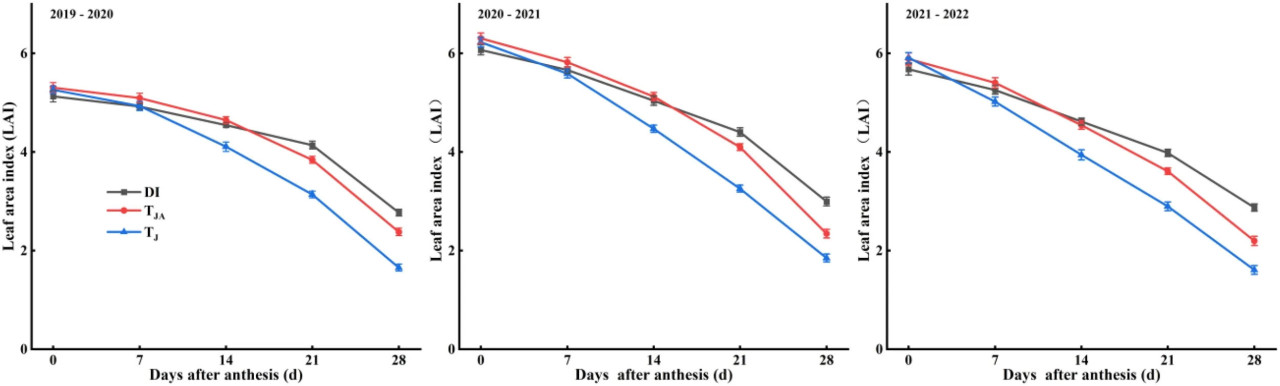
Рисунок 2 Индекс площади листьев (ИПЛ) после цветения озимой пшеницы в сезоны выращивания 2019–2022 гг. DI — орошение 30 мм, применяемое в фазы выхода в трубку, колошения, цветения и молочной спелости, с разделением азота на четыре равные аппликации (по 30 кг N·га−1 каждая) в соответствующие фазы; TJA — орошение 60 мм, применяемое в фазы выхода в трубку и цветения, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; TJ — орошение 60 мм, применяемое однократно в фазу выхода в трубку, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку. Вертикальные полосы представляют стандартные ошибки средних (n = 3).
3.3 Физиологические признаки антиоксидантной системы листьев
Активности СОД и КАТ, а также концентрация МДА в флаговых листьях озимой пшеницы демонстрировали согласованные тенденции в сезоны выращивания 2019–2022 гг. (рисунок 3). Значительных различий между DI, TJA и TJ в фазу цветения не наблюдалось. После цветения активности СОД и КАТ в DI и TJA были значительно выше, чем в TJ. Значительных различий между DI и TJA на 7 и 14 ДПЦ не наблюдалось. Однако на 21 и 28 ДПЦ DI показал значительно более высокие активности СОД и КАТ, чем TJA. Напротив, концентрация МДА в DI и TJA была значительно ниже, чем в TJ после цветения. По сравнению с TJA, DI значительно снизил концентрацию МДА на 21 и 28 ДПЦ.
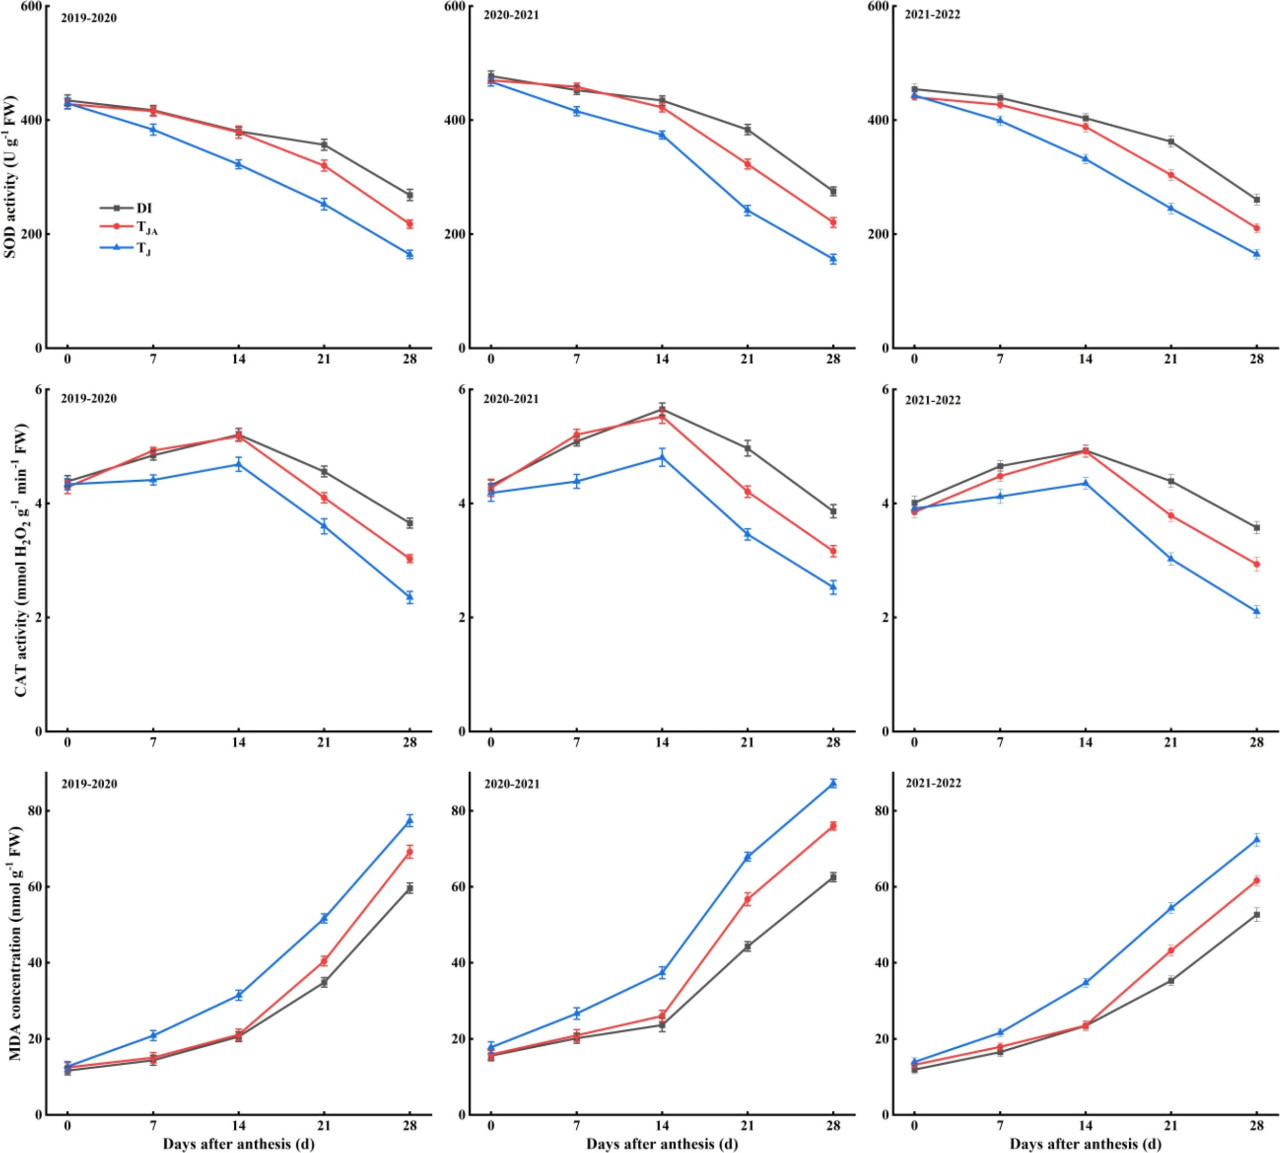
Рисунок 3 Активность супероксиддисмутазы (СОД), активность каталазы (КАТ) и концентрация малонового диальдегида (МДА) в флаговом листе после цветения озимой пшеницы в сезоны выращивания 2019–2022 гг. DI — орошение 30 мм, применяемое в фазы выхода в трубку, колошения, цветения и молочной спелости, с разделением азота на четыре равные аппликации (по 30 кг N·га−1 каждая) в соответствующие фазы; TJA — орошение 60 мм, применяемое в фазы выхода в трубку и цветения, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; TJ — орошение 60 мм, применяемое однократно в фазу выхода в трубку, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку. Вертикальные полосы представляют стандартные ошибки средних (n = 3).
3.4 Фотосинтетические характеристики
Фотосинтетические характеристики (Pn, Gs, Ci, Tr) после цветения показаны на рисунке 4. В сезоны выращивания 2019–2022 гг. не было значительной разницы в фотосинтетических характеристиках между DI, TJA и TJ в фазу цветения. Pn, Gs и Tr в DI и TJA были значительно выше, чем в TJ. Значительной разницы между DI и TJA на 7 и 14 ДПЦ не наблюдалось. Вариант DI показал значительно более высокие Pn, Gs и Tr, чем другие варианты, на 21 и 28 ДПЦ. Напротив, Ci в DI и TJA были значительно ниже, чем в TJ после цветения, и Ci в DI также был ниже, чем в TJA на 21 и 28 ДПЦ.
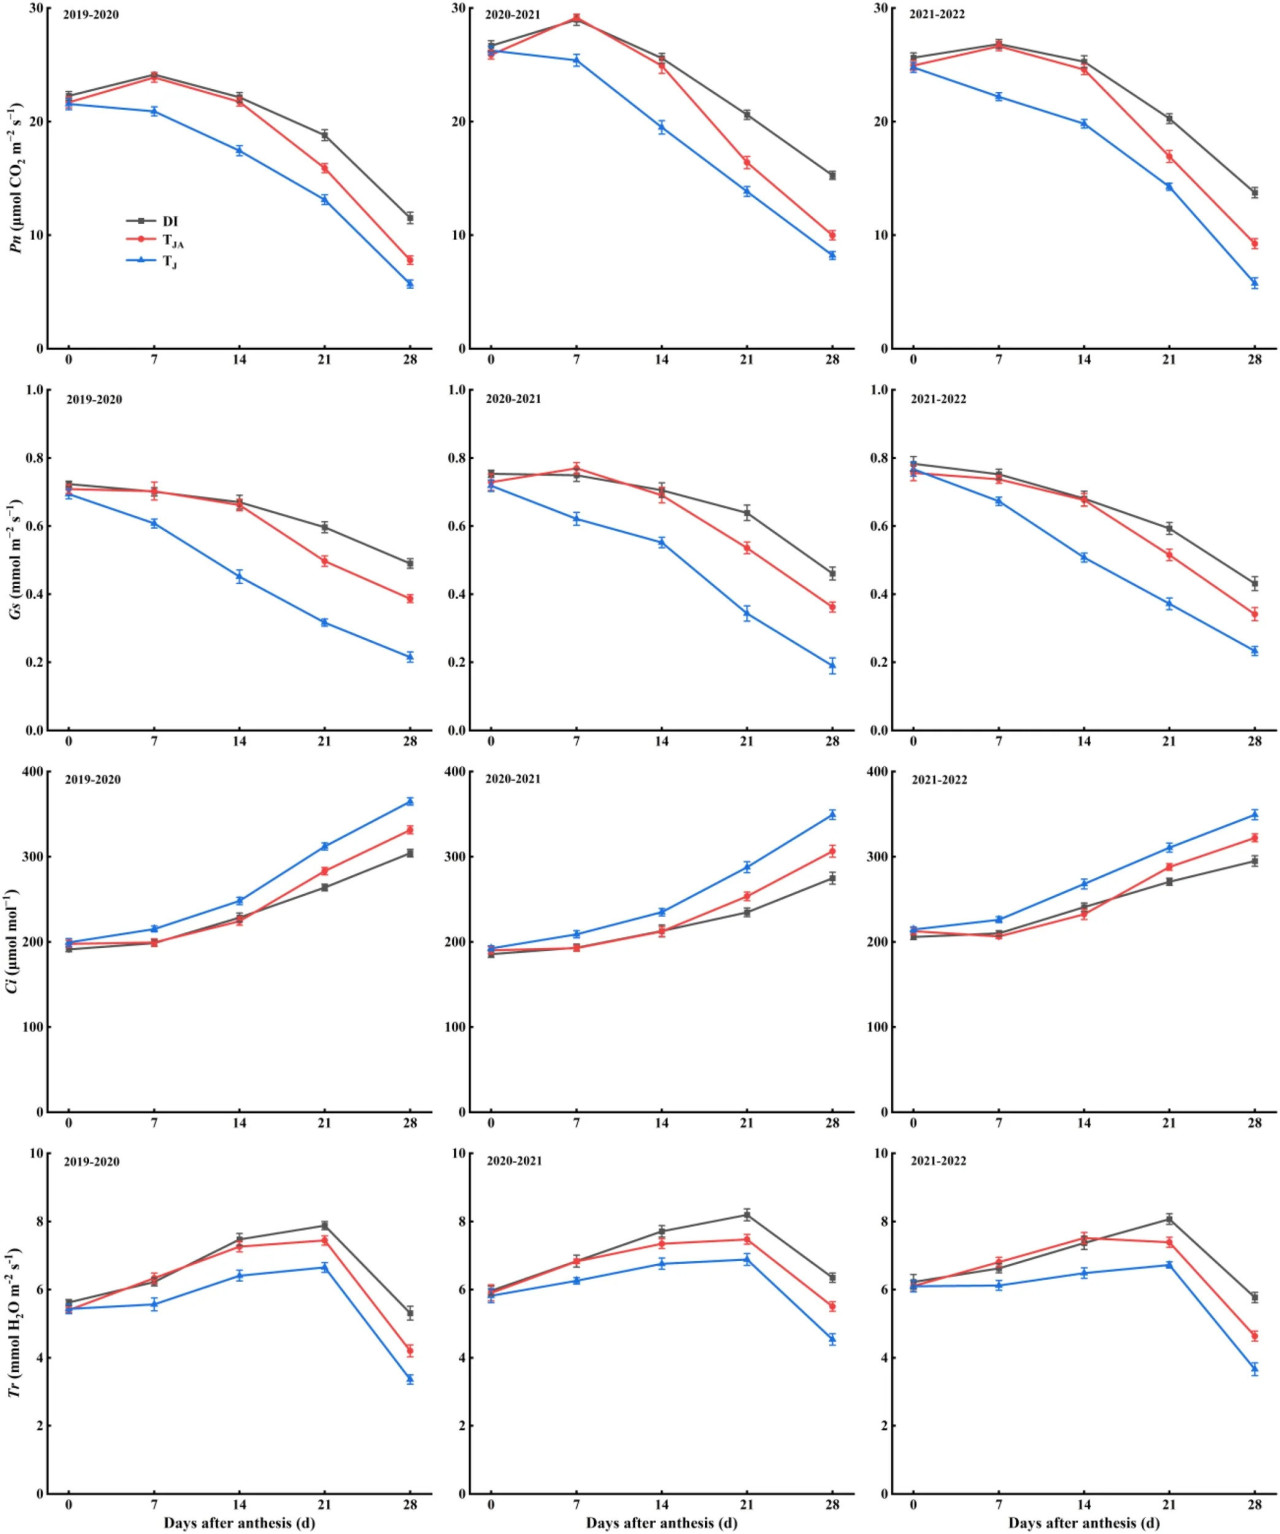
Рисунок 4 Чистая скорость фотосинтеза (Pn), устьичная проводимость (Gs), межклеточная концентрация CO2 (Ci) и скорость транспирации (Tr) после цветения озимой пшеницы в сезоны выращивания 2019–2022 гг. DI — орошение 30 мм, применяемое в фазы выхода в трубку, колошения, цветения и молочной спелости, с разделением азота на четыре равные аппликации (по 30 кг N·га−1 каждая) в соответствующие фазы; TJA — орошение 60 мм, применяемое в фазы выхода в трубку и цветения, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; TJ — орошение 60 мм, применяемое однократно в фазу выхода в трубку, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку. Вертикальные полосы представляют стандартные ошибки средних (n = 3).
3.5 Признаки налива зерна
3.5.1 Динамика массы тысячи зёрен
Коэффициенты детерминации (R2) для налива зерна во всех вариантах превышали 0,99 (таблица 3), что указывает на то, что уравнение Ричардса обеспечило превосходную аппроксимацию процесса налива зерна во всех вариантах. Все уравнения аппроксимации динамики массы зерна по вариантам показали S-образную тенденцию «медленно–быстро–медленно» (рисунок 5). В сезон выращивания 2019–2020 гг. масса зерна в DI была выше, чем в TJA и TJ, и масса зерна в TJA также была выше, чем в TJ на 21, 28 и 35 ДПЦ. В сезоны выращивания 2020–2022 гг. масса зерна в DI и TJA была выше, чем в TJ на 21, 28 и 35 ДПЦ. Масса зерна в DI была выше, чем в TJA на 28 и 35 ДПЦ.
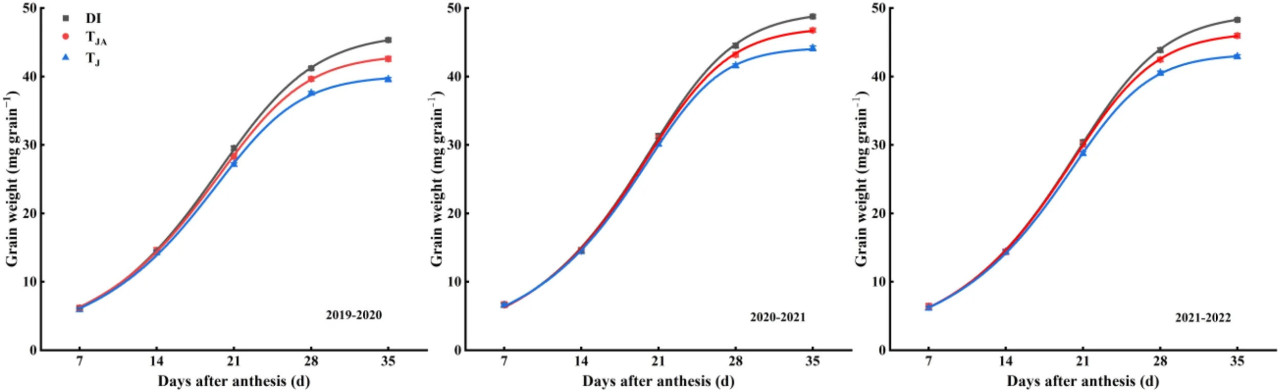
Рисунок 5 Кривая моделирования Ричардса налива зерна озимой пшеницы в сезоны выращивания 2019–2022 гг. DI — орошение 30 мм, применяемое в фазы выхода в трубку, колошения, цветения и молочной спелости, с разделением азота на четыре равные аппликации (по 30 кг N·га−1 каждая) в соответствующие фазы; TJA — орошение 60 мм, применяемое в фазы выхода в трубку и цветения, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; TJ — орошение 60 мм, применяемое однократно в фазу выхода в трубку, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку. Вертикальные полосы представляют стандартные ошибки средних (n = 3).
3.5.2 Параметры налива зерна на основе уравнения Ричардса
Как показано в таблице 3, вариант DI показал наивысшую предельную величину роста (A), за ним следовали TJA и TJ. Параметр начального значения (B), параметр скорости роста (K) и параметр формы (N) располагались в порядке DI < TJA < TJ.
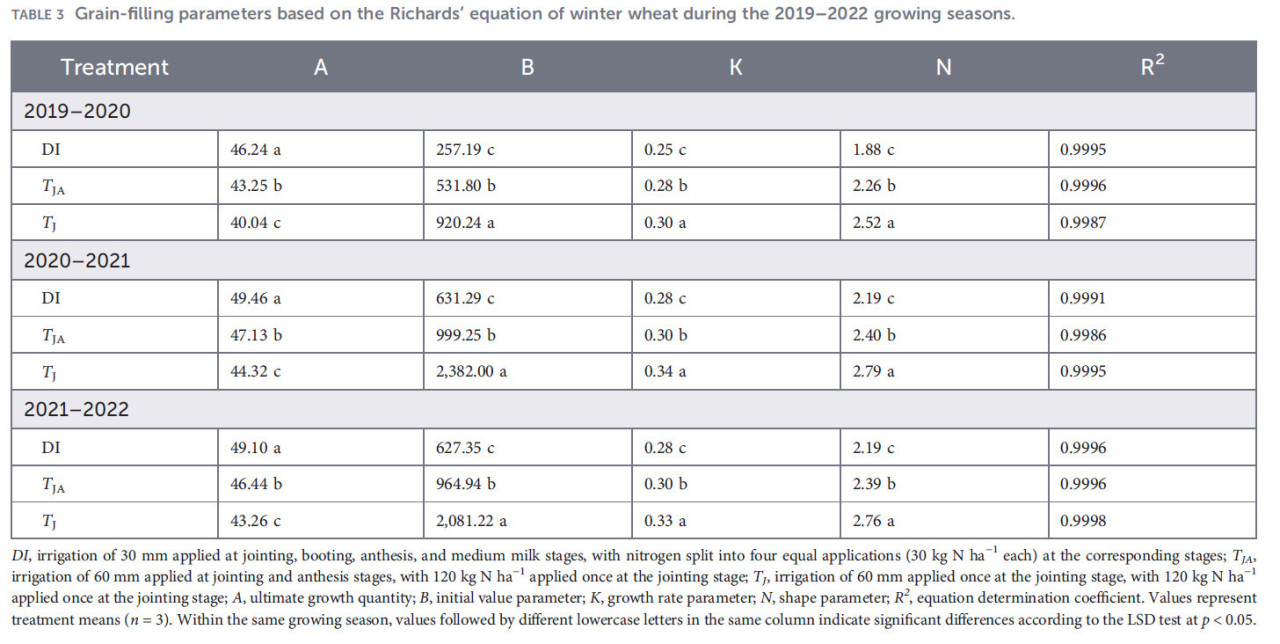
Таблица 3 Параметры налива зерна на основе уравнения Ричардса озимой пшеницы в сезоны выращивания 2019–2022 гг.
DI — орошение 30 мм, применяемое в фазы выхода в трубку, колошения, цветения и молочной спелости, с разделением азота на четыре равные аппликации (по 30 кг N·га−1 каждая) в соответствующие фазы; TJA — орошение 60 мм, применяемое в фазы выхода в трубку и цветения, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; TJ — орошение 60 мм, применяемое однократно в фазу выхода в трубку, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; A — предельная величина роста; B — параметр начального значения; K — параметр скорости роста; N — параметр формы; R2 — коэффициент детерминации уравнения. Значения представляют средние значения вариантов (n = 3). В пределах одного сезона выращивания значения, за которыми следуют разные строчные буквы в одном столбце, указывают на значительные различия согласно тесту НСР при p < 0,05.
3.5.3 Вторичные параметры уравнения Ричардса
В сезоны выращивания 2019–2022 гг. средняя скорость налива зерна (Vmean) и время достижения 99% предельной величины роста (T0.99) в DI были наивысшими, за ними следовали TJA и TJ (таблица 4). Активная продолжительность налива зерна (D) была наибольшей в DI и наименьшей в TJ. На основе двух точек перегиба между кривой скорости налива зерна озимой пшеницы процесс налива зерна можно разделить на три фазы: постепенного, быстрого и медленного роста. В сезоны выращивания 2019–2022 гг. значительных различий между вариантами в продолжительности (T1) и скорости налива зерна (V1) в фазу постепенного роста не наблюдалось. В фазу быстрого роста DI показал большую продолжительность (T2) и более высокую скорость налива зерна (V2), чем TJA и TJ. В фазу медленного роста DI показал наибольшую продолжительность (T3) и скорость налива зерна (V3), за ним следовали TJA и TJ.
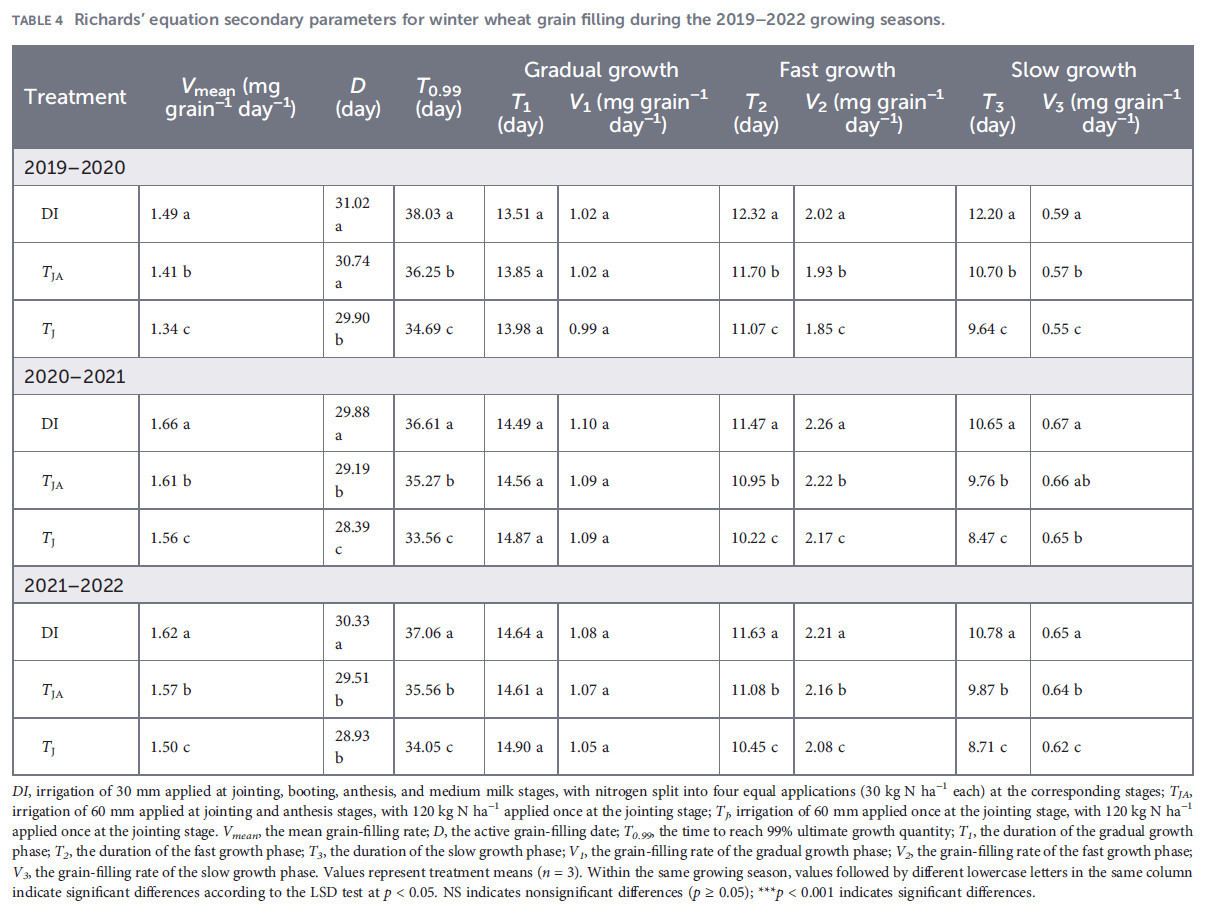
Таблица 4 Вторичные параметры уравнения Ричардса для налива зерна озимой пшеницы в сезоны выращивания 2019–2022 гг.
DI — орошение 30 мм, применяемое в фазы выхода в трубку, колошения, цветения и молочной спелости, с разделением азота на четыре равные аппликации (по 30 кг N·га−1 каждая) в соответствующие фазы; TJA — орошение 60 мм, применяемое в фазы выхода в трубку и цветения, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; TJ — орошение 60 мм, применяемое однократно в фазу выхода в трубку, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку. Vmean — средняя скорость налива зерна; D — активная дата налива зерна; T0.99 — время достижения 99% предельной величины роста; T1 — продолжительность фазы постепенного роста; T2 — продолжительность фазы быстрого роста; T3 — продолжительность фазы медленного роста; V1 — скорость налива зерна фазы постепенного роста; V2 — скорость налива зерна фазы быстрого роста; V3 — скорость налива зерна фазы медленного роста. Значения представляют средние значения вариантов (n = 3). В пределах одного сезона выращивания значения, за которыми следуют разные строчные буквы в одном столбце, указывают на значительные различия согласно тесту НСР при p < 0,05. НЗ указывает на незначительные различия (p ≥ 0,05); ***p < 0,001 указывает на значительные различия.
3.6 Морфологические характеристики зерна
Все морфологические характеристики зерна, за исключением длины зерна и округлости, значительно зависели от года (Г; p < 0,001). Орошение (О) также оказывало значительное влияние на эти признаки. Однако взаимодействие между годом и орошением (Г × О) не оказывало значительного влияния ни на одну из измеренных характеристик (таблица 5). В сезоны выращивания 2019–2022 гг. по сравнению с TJ, DI значительно увеличил длину зерна; значительной разницы между DI и TJA не наблюдалось. По сравнению с TJA и TJ, DI значительно увеличил ширину, толщину, округлость зерна и среднюю площадь семени; наименьшие длина, ширина, толщина, округлость зерна и средняя площадь семени наблюдались в TJ. Напротив, соотношение сторон в DI было ниже, чем в других вариантах.
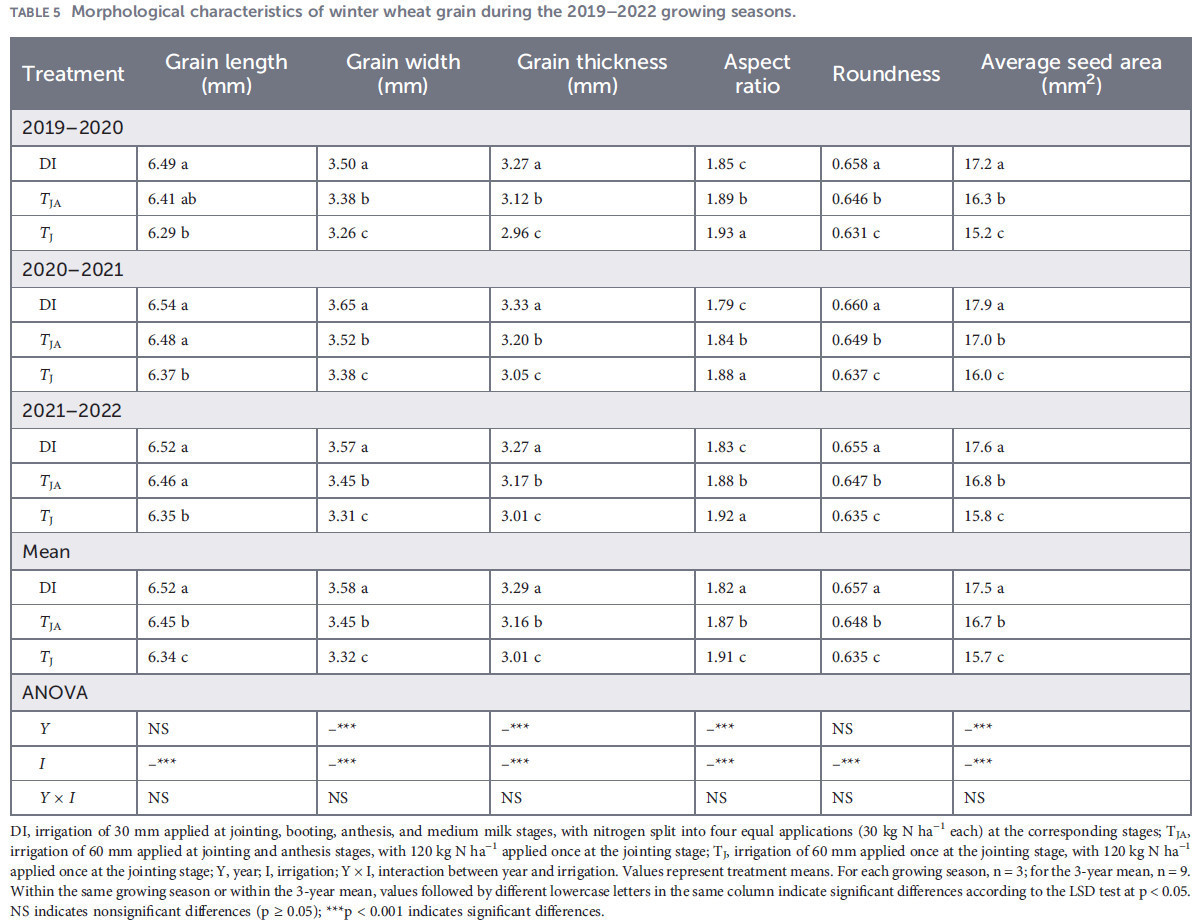
Таблица 5 Морфологические характеристики зерна озимой пшеницы в сезоны выращивания 2019–2022 гг.
DI — орошение 30 мм, применяемое в фазы выхода в трубку, колошения, цветения и молочной спелости, с разделением азота на четыре равные аппликации (по 30 кг N·га−1 каждая) в соответствующие фазы; TJA — орошение 60 мм, применяемое в фазы выхода в трубку и цветения, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; TJ — орошение 60 мм, применяемое однократно в фазу выхода в трубку, с внесением 120 кг N·га−1 однократно в фазу выхода в трубку; Г — год; О — орошение; Г × О — взаимодействие между годом и орошением. Значения представляют средние значения вариантов. Для каждого сезона выращивания n = 3; для среднего за 3 года n = 9. В пределах одного сезона выращивания или в пределах среднего за 3 года значения, за которыми следуют разные строчные буквы в одном столбце, указывают на значительные различия согласно тесту НСР при p < 0,05. НЗ указывает на незначительные различия (p ≥ 0,05); ***p < 0,001 указывает на значительные различия.
3.7 Корреляционный анализ
Как показано на рисунке 6, в сезоны выращивания 2019–2022 гг. масса тысячи зёрен была значительно и положительно коррелирована со средней скоростью налива зерна (Vmean), активной датой налива зерна (D), временем достижения 99% предельной величины роста (T0.99), продолжительностью фазы быстрого роста (T2), скоростью налива зерна фазы быстрого роста (V2), продолжительностью фазы медленного роста (T3), скоростью налива зерна фазы медленного роста (V3), длиной, шириной, толщиной, округлостью и средней площадью семени зерна соответственно. Масса тысячи зёрен была значительно и отрицательно коррелирована с продолжительностью фазы постепенного роста (T1) и соотношением сторон соответственно.
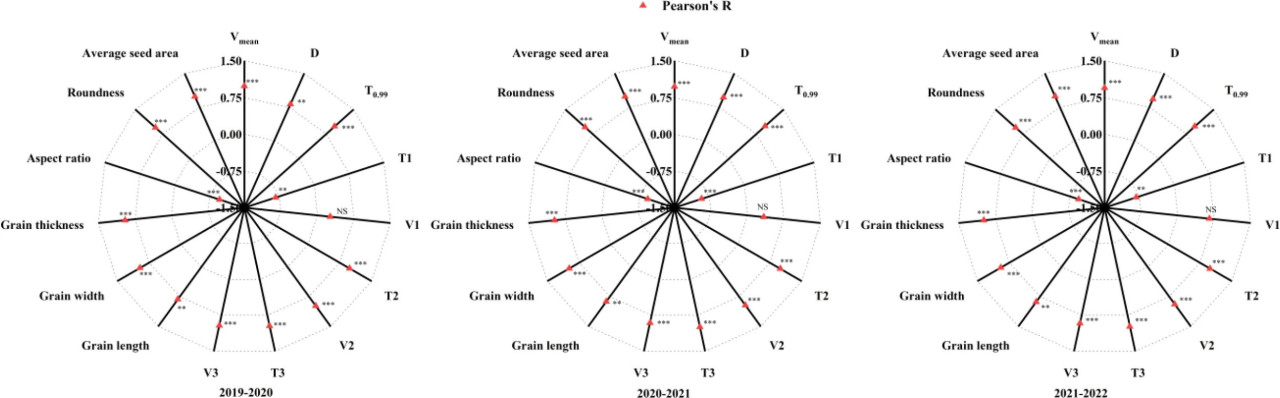
Рисунок 6 Коэффициенты корреляции Пирсона массы тысячи зёрен с вторичными параметрами уравнения Ричардса и морфологическими характеристиками зерна. Vmean — средняя скорость налива зерна; D — активная дата налива зерна; T0.99 — время достижения 99% предельной величины роста; T1 — продолжительность фазы постепенного роста; T2 — продолжительность фазы быстрого роста; T3 — продолжительность фазы медленного роста; V1 — скорость налива зерна фазы постепенного роста; V2 — скорость налива зерна фазы быстрого роста; V3 — скорость налива зерна фазы медленного роста. НЗ — незначимо (p ≥ 0,05); **p < 0,01 и ***p < 0,001 указывают на значительные различия.
4 Обсуждение
Период от фазы конечного колоска до завязывания зерна критически важен как для числа зёрен, так и для формирования потенциальной массы зерна. Напротив, период от завязывания зерна до физиологической спелости критически важен для достижения конечной массы зерна (Reynolds и др., 2022). Учитывая физиологическую значимость этих фаз в определении компонентов урожайности, согласование агрономических воздействий (таких как управление орошением и азотом) с этими критическими периодами необходимо для оптимизации результатов урожайности (Li и др., 2021). Настоящие результаты показали, что DI был связан с более высокой массой тысячи зёрен и числом зёрен на единицу площади по сравнению с другими режимами орошения (таблица 2). Контраст между DI и TJ в первую очередь отражает различия в общем объёме орошения или дробном внесении азота (таблица 1), тогда как сравнение между DI и TJA включает различия в частоте орошения и стратегии внесения азота. Эти различия вариантов совпадали с большим числом зёрен на единицу площади и массой тысячи зёрен в DI, что согласуется с предыдущими исследованиями (Li и др., 2005; Zhang и др., 2025; Li и др., 2021). Наблюдаемые реакции могут быть связаны с улучшенной доступностью воды и азота в критические периоды развития компонентов урожайности (от конечного колоска до завязывания зерна и от завязывания зерна до физиологической спелости) (Ren и др., 2025; Xu и др., 2018; Zhang и др., 2024). В целом результаты свидетельствуют о том, что соответствующее регулирование снабжения водой и азотом в ключевые фазы развития связано с одновременным улучшением числа зёрен и массы зерна.
ИПЛ, фотосинтетическая способность и физиологические признаки антиоксидантной системы пшеницы были критическими физиологическими детерминантами массы зерна и формирования урожайности. В период налива зерна высокий ИПЛ и стабильная фотосинтетическая продуктивность поддерживают непрерывное снабжение развивающихся зёрен ассимилятами. Это поддерживает накопление массы зерна и общее формирование урожайности (Hamani и др., 2023). Однако послецветочный стресс от засухи может нарушить эти процессы путём индукции перекисного окисления липидов мембран, приводя к накоплению МДА и снижению регуляции ключевых антиоксидантных ферментов, таких как КАТ, пероксидаза (ПОД) и СОД (Che и др., 2025; Lv и др., 2021). Результаты показали, что ИПЛ (рисунок 2) и активности СОД и КАТ (рисунок 3) были выше в DI, чем в TJ, начиная с 7 или 14 ДПЦ, и выше, чем в TJA, начиная с 21 ДПЦ. Напротив, концентрация МДА была ниже в DI, чем в TJ, начиная с 7 ДПЦ, и ниже, чем в TJA, начиная с 21 ДПЦ. Сообщалось, что сезонное поступление воды при дефицитном орошении влияет на физиологическое состояние листьев в период налива зерна (Man и др., 2017; Naseer и др., 2024). В настоящем исследовании DI получал больший общий объём орошения, чем TJ, что совпадало с более высоким послецветочным ИПЛ и антиоксидантной способностью листьев. Предыдущие исследования также показали, что оптимизированный график орошения или снабжение азотом связаны с поддержанием фотосинтетически активной площади листьев и повышенной антиоксидантной способностью (Wang и др., 2025; Xu и др., 2018; Yan и др., 2019). По сравнению с TJA, DI включал более частые орошение и внесение азота, что также совпадало с более высоким ИПЛ и антиоксидантной способностью в средне-поздний период налива зерна. Фотосинтез считался ранним и чувствительным индикатором реакций растений на экологический стресс, поскольку его способность обычно снижалась до других физиологических функций (Lodeyro и др., 2021). Регуляция Gs листьев была ключевым физиологическим процессом у растений, поскольку она играла решающую роль в предотвращении высыхания, одновременно облегчая поглощение CO2. В стрессовых условиях снижение скорости фотосинтеза обычно приписывалось снижению проводимости мезофилла и закрытию устьиц (Ashraf and Harris, 2013). В данном исследовании Pn, Gs и Tr были выше в DI, чем в TJ, после 7 ДПЦ, и выше, чем в варианте TJA, после 21 ДПЦ. Напротив, Ci в DI был ниже, чем в TJ, начиная с 7 ДПЦ, и ниже, чем в TJA, начиная с 21 ДПЦ (рисунок 4). DI был связан с более высокой послецветочной фотосинтетической продуктивностью по сравнению с TJ, что совпадало с его большим общим объёмом орошения, согласуясь с предыдущими сообщениями (Naseer и др., 2024; Xue и др., 2006). Относительно TJA, более частые орошение и внесение азота, осуществляемые в DI, сопровождались более высокой фотосинтетической продуктивностью в средне-поздний период налива зерна, что согласуется с результатами Zhao и др. (2022).
Процесс налива зерна опосредует транслокацию фотосинтетических ассимилятов в запасающие органы. У пшеницы этот процесс проявляет различные закономерности при разных азотных и влажностных условиях (Liang и др., 2024; Wang и др., 2024; Yan и др., 2019). Wang и др. (2024) сообщили, что масса зерна преимущественно определялась скоростью налива зерна, при этом продолжительность налива зерна вносила лишь незначительный вклад. Напротив, González и др. (2014) предположили, что продолжительность налива зерна была более чувствительна к условиям окружающей среды, чем сама скорость. В данном исследовании вариант DI показал наивысшие значения средней скорости налива зерна (Vmean), активной даты налива зерна (D) и времени достижения 99% предельной величины роста (T0.99) (таблица 4). Более того, масса тысячи зёрен показала значительную положительную корреляцию с Vmean, D и T0.99 (рисунок 6). Следовательно, как скорость, так и продолжительность налива зерна играют критическую роль в определении конечной массы зерна, что согласуется с исследованием Li и др. (2021). Накопление сухого вещества зерна показало S-образную тенденцию медленно–быстро–медленно. Согласно уравнению Ричардса, процесс налива зерна был разделён на три стадии: постепенный рост, быстрый рост и медленный рост. Xie и др. (2015) продемонстрировали, что конечная масса зерна была более тесно связана с постепенной и быстрой фазами налива зерна, чем с медленной фазой. Согласованно, другие исследования подчеркнули, что повышение способности к наливу зерна на ранних и средних стадиях критически важно для увеличения массы зерна (Liang и др., 2018; Wang и др., 2024). Однако в нашем исследовании продолжительность и скорость налива зерна фаз быстрого и медленного роста в варианте DI были выше, чем в других вариантах (таблица 4). Кроме того, конечная масса зерна была более тесно связана с продолжительностью и скоростью налива зерна фаз быстрого и медленного роста (рисунок 6). Это может быть связано с относительно высокой фотосинтетической способностью, поддерживаемой в DI в средне- и поздний периоды налива зерна (рисунок 4). Размер зерна включает длину, ширину и толщину зерна. Это ключевой агрономический признак у зерновых, положительно связанный с массой зерна и в конечном итоге с урожайностью (He и др., 2025). У пшеницы размер зерна зависит главным образом от скорости и продолжительности налива зерна. Зёрна быстро удлиняются в течение первых ~1–5 дней после цветения (ДПЦ), но мало набирают массу. Впоследствии ширина, толщина и масса зерна существенно увеличиваются до физиологической спелости. Таким образом, конечный размер зерна формируется ранней морфологической фазой и последующей активной фазой налива (Brinton and Uauy, 2019; Gao и др., 2024). В данном исследовании по сравнению с TJ как DI, так и TJA увеличили длину зерна. Более того, относительно TJ и TJA, DI значительно увеличил ширину, толщину, округлость зерна и среднюю площадь семени, одновременно снизив соотношение сторон (таблица 5). Эти улучшения были связаны с более высокой скоростью налива и более длительной эффективной продолжительностью в DI, что привело к большим размерам зерна, согласуясь с предыдущими результатами (Brinton and Uauy, 2019; Geng и др., 2017). Согласованно, масса тысячи зёрен была значительно коррелирована с этими параметрами размера зерна (рисунок 6), что согласуется с предыдущими результатами (Rasheed и др., 2014). Эти результаты указывают на то, что оптимизированное управление водой и азотом совпадало с более высокой скоростью и продолжительностью налива зерна и улучшенным размером зерна, поддерживая большую конечную массу зерна и потенциал урожайности.
Помимо климатических вариаций между сезонами, в третий год была произведена незначительная корректировка управления. Норма высева была увеличена из-за позднего посева, вызванного чрезмерными осадками перед оптимальным окном посева. Хотя более высокая плотность растений может влиять на структуру полога и формирование стока, двухфакторный ДДА показал, что взаимодействие между годом и режимом орошения (Г × О) не было значительным для урожайности зерна или компонентов урожайности (p ≥ 0,05; таблица 2). Это указывает на то, что закономерности реакции на варианты орошения были в целом согласованными между сезонами и не были существенно изменены скорректированной нормой высева. Следовательно, эта межгодовая корректировка управления вряд ли повлияла на интерпретацию эффектов вариантов в настоящем исследовании.
Кроме того, хотя режим орошения и сроки внесения азота оценивались в комбинации, результаты свидетельствуют о том, что согласованное управление в критические фазы развития было связано с улучшенным формированием компонентов урожайности в водосберегающих условиях. Будущие исследования, независимо манипулирующие объёмом орошения и сроками внесения азота, помогли бы разделить их относительные вклады и дополнительно прояснить лежащие в основе физиологические механизмы.
5 Выводы
В условиях водосберегающего орошения орошение в сочетании с дробным внесением азота в фазы выхода в трубку, колошения, цветения и молочной спелости (DI) было связано с большим числом зёрен и массой зерна озимой пшеницы, что привело к повышению урожайности зерна. DI оптимизировал снабжение водой и азотом в течение двух критических периодов — от конечного колоска до завязывания зерна и от завязывания зерна до физиологической спелости. В течение первого периода DI был связан с большим числом зёрен в колосе без влияния на число колосьев. Во второй период DI поддерживал более высокий индекс площади листьев и фотосинтетическую активность и повышал антиоксидантную способность в средне-поздний период налива зерна. Эти эффекты улучшили скорость и продолжительность налива зерна и способствовали развитию размера зерна, внося вклад в более высокую конечную массу зерна. В целом согласованное управление водой и азотом в ключевые фазы развития поддерживает сбалансированное формирование компонентов урожайности и обеспечивает практическую стратегию повышения продуктивности пшеницы в условиях ограниченных водных ресурсов.
Cao Z, Gao G, Duan Y, Zhang H, Tian C, Zhao C and Xu X (2026) Water and nitrogen management strategies influence grain filling and yield of winter wheat in the North China Plain. Front. Plant Sci. 17:1795994. doi: 10.3389/fpls.2026.1795994
Перевод статьи «Water and nitrogen management strategies influence grain filling and yield of winter wheat in the North China Plain» авторов Cao Z, Gao G, Duan Y, Zhang H, Tian C, Zhao C and Xu X, оригинал доступен по ссылке. Лицензия: CC BY. Изменения: переведено на русский язык
Фото: Designed by Freepik




Комментарии (0)