

Отбор коров по эффективности кормления: сравнение подходов к прогнозу геномной племенной ценности
Корм является основной статьёй затрат в молочном животноводстве. Любое улучшение эффективности использования корма (ЭИК) увеличило бы маржинальную прибыль и устойчивость, а также смягчило бы воздействие молочного животноводства на окружающую среду. В данном исследовании мы применили одношаговый геномный метод наилучшего линейного несмещённого прогнозирования (single-step genomic BLUP) к различным показателям эффективности использования корма, используя данные, собранные от коров северной красной молочной породы (RDC).
Аннотация
Основной целью было сравнение различных показателей с точки зрения их эффективности при отборе животных с более высокой эффективностью использования корма. В исследовании использовались еженедельные наблюдения (n = 22 071) потребления сухого вещества от 791 коровы RDC, собранные с 1998 по 2021 год. Родословная включала 5 604 особи, из которых 1 489 животных были генотипированы. Были проанализированы различные подходы к моделированию, включая традиционный остаточный приём корма (RFI), регрессию на ожидаемое потребление корма (ReFI), два многофакторных индекса остаточной эффективности использования корма (RFIIndex и RZFE) и эффективность преобразования энергии (ECE). Для подхода ReFI сравнивались два варианта прогнозирования ожидаемого потребления корма: уравнение прогнозирования, адаптированное к данным RDC, и уравнение прогнозирования на основе данных голштинских молочных коров, предложенное Национальными академиями наук, инженерии и медицины (NRC 2021). Сначала была разработана модель BLUP и оценены необходимые компоненты дисперсии для каждого подхода. Затем были оценены племенные ценности на основе родословной и с использованием геномной информации (PEBV и GEBV соответственно) с использованием как сокращённого, так и полного наборов данных. Для валидации модели PEBV и GEBV, оценённые с использованием полного набора данных, были регрессированы на PEBV и GEBV, оценённые с использованием сокращённого набора данных, соответственно, для измерения смещения, дисперсии и точности прогнозирования (PAC). Оценки наследуемости различных остаточных показателей варьировались от 0,23 для RFI до 0,30 для ReFINRC2021, а оценки повторяемости — от 0,48 до 0,52. Оценённые наследуемость и повторяемость ECE составили 0,23 и 0,56 соответственно. Для всех показателей использование геномной информации увеличило PAC. Однако между показателями наблюдались расхождения в величине PAC: PAC был наибольшим для ReFIRDC и наименьшим для RFIIndex. Аналогично, ReFIRDC имел наименьшее смещение, тогда как наибольшее смещение было оценено для RFIIndex. Кроме того, RZFE и ReFIRDC показали меньшую дисперсию. Корреляции между GEBV остаточных показателей и GEBV ECE были наименьшими для RFINRC2021 и RFI и наибольшими для ReFIRDC. Среди сравниваемых показателей ReFIRDC и RFIIndex показали наибольшую эффективность при отборе эффективных коров. Это указывает на то, что использование соответствующих коэффициентов частичной регрессии и типа моделирования имеет жизненно важное значение в программах разведения, направленных на повышение ЭИК.
Введение
Затраты на корм являются основной статьёй производственных затрат в молочном животноводстве; в некоторых производственных системах они составляют до 75 процентов общих производственных затрат (Alqaisi и др., 2011). Следовательно, любое улучшение эффективности использования корма повысило бы прибыльность молочных фермеров и снизило бы выбросы парниковых газов (Negussie и др., 2017). Косвенные улучшения эффективности использования корма (ЭИК) наблюдались в течение последних десятилетий как следствие генетического отбора по удою. Это связано с тем, что при увеличении удоя потребность на поддержание жизнедеятельности разбавляется, и, следовательно, более высокая доля потребления энергии направляется на производство (Capper и др., 2008). Однако было заявлено, что дальнейшее улучшение ЭИК за счёт увеличения удоя затруднительно, поскольку существует неопределённость в том, развивается ли разбавление потребности на поддержание линейно или криволинейно (VandeHaar and St-Pierre, 2006; Bach и др., 2020). Кроме того, дальнейший отбор на увеличение удоя может ухудшить плодовитость и состояние здоровья животного (Pryce и др., 2004; Oltenacu and Broom, 2010).
Различные исследования анализировали возможность улучшения ЭИК у разных видов (то есть свиней, кур, индеек и мясного скота), особенно у молочного скота в последнее десятилетие (Pryce и др., 2012; Berry and Crowley, 2013; Abdalla и др., 2019; Islam и др., 2020; Wang и др., 2022; Lidauer и др., 2023). Для улучшения ЭИК изучались различные показатели, включая коэффициент конверсии корма, валовую эффективность использования энергии и эффективность преобразования энергии (ECE) (Liinamo и др., 2015). Хотя они легче рассчитываются и интерпретируются, признаки-отношения не были признаны подходящими показателями для ЭИК, поскольку отбор на их улучшение может оказывать неравноценное селекционное давление на компонентные признаки (Gunsett, 1984). Более того, они сильно коррелируют со своими компонентами и могут увеличивать дисперсию ошибки в статистическом анализе (Berry and Crowley, 2013). Среди предложенных показателей остаточный приём корма (RFI) является наиболее изученным и известным показателем для улучшения ЭИК, и он рассчитывается путём вычитания ожидаемого потребления сухого вещества (eDMI) из фактического потребления сухого вещества (DMI) (Koch и др., 1963). Традиционно eDMI рассчитывается путём регрессии DMI на стоки энергии, главным образом на молоко, скорректированное по энергии (ECM), метаболическую массу тела (MBW), потерю массы тела (BWL) и прирост массы тела (BWG).
Kennedy и др. (1993) заявили, что RFI коррелирует со стоками энергии и имеет некоторые недостатки; поэтому они предложили показатель, не коррелирующий со стоками энергии, известный как генетический RFI (gRFI). Однако было обнаружено, что gRFI имеет характеристики, сходные с RFI, в выявлении животных с эффективным использованием корма. Это связано с тем, что оценённые частичные фенотипические коэффициенты регрессии, которые моделируют eDMI в gRFI, напоминают оценённые частичные коэффициенты регрессии RFI (Lu и др., 2015; Lidauer и др., 2023). Lu и др. (2015) заявили, что расчёт RFI основан на предположении, что регистрация стоков энергии осуществляется без ошибок измерения и что оценки коэффициентов регрессии не смешаны. Однако оба предположения могут не выполняться и могут давать нелогичные частичные коэффициенты регрессии для расчёта eDMI. Например, частичный коэффициент регрессии для ECM был оценён ниже 0,30 в нескольких исследованиях (Tempelman и др., 2015; Li и др., 2017; Lidauer и др., 2023). Учитывая обменную энергию (ME), необходимую для производства 1 кг ECM (4 765 кДж/кг; National Academies of Sciences, Engineering, and Medicine, 2021), это означает, что энергетическая ценность корма должна составлять не менее 15 883 кДж/кг DMI, поскольку в противном случае эффективность использования энергии коровами для лактации была бы выше 100 процентов. Для устранения этого несоответствия Lidauer и др. (2023) предложили рассчитывать eDMI и выводить частичные коэффициенты регрессии из формулировок потребности в энергии, которые были оценены в nutritional исследованиях. Они также продемонстрировали, что регрессия DMI на eDMI, то есть применение так называемого показателя «регрессия на ожидаемое потребление корма (ReFI)», приведёт к отбору животных с более эффективным использованием корма.
Целями данного исследования были: 1) оценка компонентов дисперсии и племенных ценностей на основе родословной и с использованием геномной информации (PEBV и GEBV) для пяти различных показателей эффективности использования корма и 2) сравнение различных показателей с точки зрения их эффективности и точности при отборе животных с эффективным использованием корма путём применения прямой валидации и расчёта корреляций GEBV среди пяти различных показателей с GEBV и скорректированными фенотипами ECE, что служит мерой реализованной общей ЭИК лактирующей коровы.
Материалы и методы
Данные
Данные, использованные в данном исследовании, были извлечены из исследовательской базы данных по ЭИК Института природных ресурсов Финляндии (Luke). Все животные, включённые в регистрацию потребления корма, были первотёлками северной красной молочной породы (RDC), большинство из которых были набраны из племенного ядра VikingGenetics и, следовательно, являются генетически превосходными коровами популяции северной RDC. Регистрация проводилась на четырёх различных исследовательских фермах: двух в Йокиойнене и по одной в Хельсинки и Маанинке. Коровы на последних двух фермах содержались в беспривязных коровниках, тогда как коровы стада Йокиойнена содержались в привязном коровнике до 2009 года и в беспривязном коровнике после этого.
Все коровы, включённые в данные, кормились вволю, и рационы основывались на травяном силосе и смеси концентратов собственного производства, которая содержала в среднем 48% концентрата в сухом веществе. Для химических анализов рационов образцы травяного силоса отбирались дважды в неделю и объединялись в 4-недельные образцы, а образцы концентратов отбирались раз в неделю и объединялись в 6-недельные образцы. Образцы молока анализировались раз в неделю до 8-й недели лактации и ежемесячно до конца лактации с использованием инфракрасных анализаторов (MilkoScan FT 6000, Foss, Хиллерёд, Дания) в молочной лаборатории Valio Ltd. (Сейняйоки, Финляндия). Сбор данных начинался через 5 дней после отёла и продолжался в течение всего периода лактации, до максимума 305 дней лактации (DIM). Потребление корма не регистрировалось в пастбищный период; поэтому у коров, отелившихся в конце периода отёлов (с сентября по декабрь), были пробелы в записях потребления корма. Наблюдения за массой тела (BW), использованные в данном исследовании, были рассчитаны путём подбора индивидуальных для каждой коровы функций случайной регрессии к измерениям массы тела (Mäntysaari and Mäntysaari, 2015) и прогнозирования ежедневных наблюдений массы тела и ежедневного изменения массы тела из подобранных функций.
Исходные данные состояли из 138 365 недельных и ежедневных наблюдений, из которых были сформированы и использованы в данном исследовании 22 071 недельное среднее для 791 особи. Фенотипические записи были доступны с 1998 по 2021 год. Описательная статистика для различных признаков представлена в таблице 1. Для расчёта ECM использовалась формула, приведённая Sjaunja и др. (1990), то есть ECM = удой × [(38,30 × содержание жира + 24,20 × содержание белка + 16,54 × содержание лактозы + 20,7)/3 140]. Наблюдения ECE рассчитывались путём деления наблюдений ECM на наблюдения потребления обменной энергии. Распределение фенотипических записей в 30-дневных интервалах в течение лактации показано на рисунке 1.
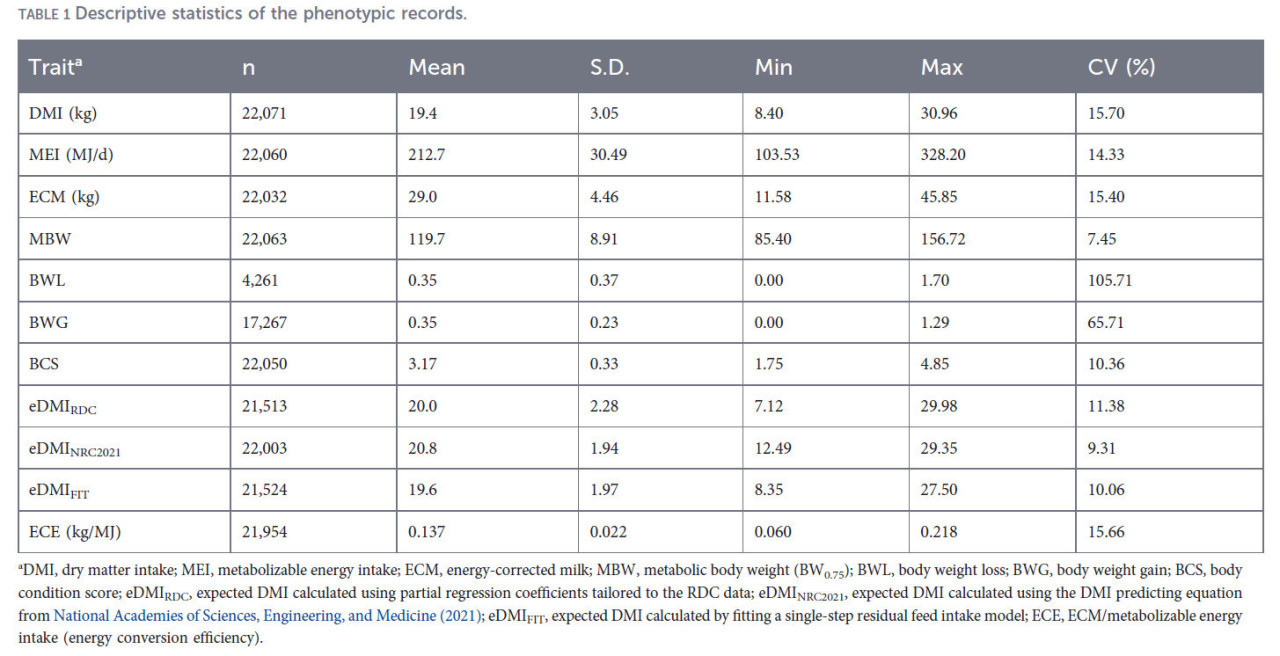
ТАБЛИЦА 1 Описательная статистика фенотипических записей.
DMI — потребление сухого вещества; MEI — потребление обменной энергии; ECM — молоко, скорректированное по энергии; MBW — метаболическая масса тела (BW0,75); BWL — потеря массы тела; BWG — прирост массы тела; BCS — оценка упитанности; eDMIRDC — ожидаемое DMI, рассчитанное с использованием частичных коэффициентов регрессии, адаптированных к данным RDC; eDMINRC2021 — ожидаемое DMI, рассчитанное с использованием уравнения прогнозирования DMI из National Academies of Sciences, Engineering, and Medicine (2021); eDMIFIT — ожидаемое DMI, рассчитанное путём подбора одношаговой модели остаточного приёма корма; ECE — ECM/потребление обменной энергии (эффективность преобразования энергии).
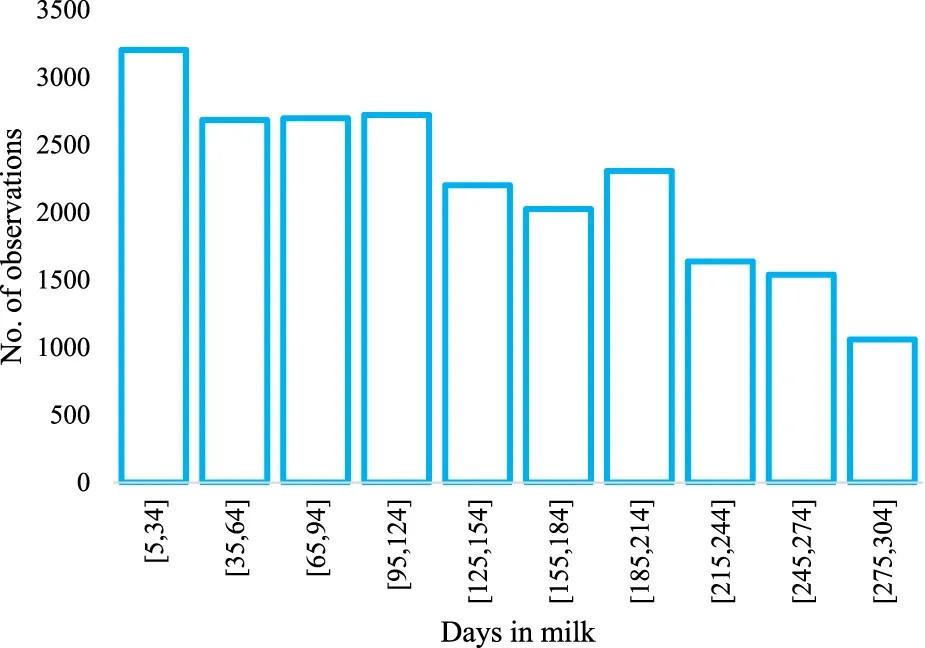
РИСУНОК 1 Распределение записей потребления сухого вещества в течение лактации в наборе данных.
Коровы с наблюдениями были дочерями 309 быков-производителей и 666 коров-матерей, из которых 289 быков-производителей и 229 коров-матерей были генотипированы, и с 2004 года 431 корова с наблюдениями ЭИК была генотипирована. В общей сложности 1 489 животных (762 самца и 727 самок) были генотипированы с использованием чипа Illumina BovineSNP50 BeadChip (Illumina, Сан-Диего, Калифорния). Используя те же критерии отбора, что и в Nordic Cattle Genetic Evaluation (NAV), осталось 46 914 SNP-маркеров. Родословная была урезана для коров с наблюдениями путём включения до пяти поколений, что дало в общей сложности 5 604 животных. Животные с неизвестными родителями были отнесены к 10 группам неизвестных родителей в соответствии с их годом рождения и происхождением, чтобы учесть генетические различия, поскольку все коровы стада Йокиойнена были набраны из племенной программы ядра RDC и были тесно связаны с элитной бычьей популяцией RDC.
Статистический анализ
Изучались пять различных показателей эффективности использования корма.
Регрессия на ожидаемое потребление корма
Первые два показателя были основаны на подходе ReFI (уравнение 1) и моделировались с использованием модели случайной регрессии следующим образом:
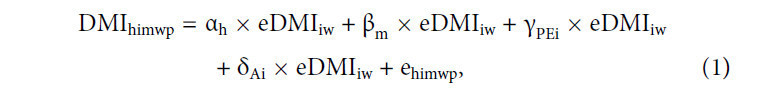
σ_β^2), где I — единичная матрица, а σ_β^2 — дисперсия коэффициентов HTM]; γPEi — коэффициент случайной регрессии для постоянного средового эффекта животного [γ ∼ N(0, I × σ_γ^2), где I — единичная матрица, а σ_γ^2 — дисперсия коэффициентов регрессии постоянного средового эффекта]; δAi — коэффициент случайной регрессии для аддитивного генетического эффекта животного с [δ ∼ N(0, A × σ_δ^2)] или [δ ∼ N(0, H × σ_δ^2)], где σ_δ^2 — дисперсия коэффициента аддитивной генетической регрессии, A — матрица родственных связей на основе родословной, а H — объединённая матрица родственных связей на основе родословной и геномных данных, которая будет объяснена позже, соответственно; и ehimwp — остаточный случайный эффект [e ∼ N(0, R), где R=∑_(p=1)^5▒⊕ I_((p) ) σ_(e_((p) ))^2] и с учётом пяти классов периодов лактации (1-й, 2-й, 3-й, 4–8-й и 9–11-й месяцы лактации).
Для расчёта ожидаемого потребления сухого вещества (eDMIiw) для коровы i, находившейся на неделе лактации w, мы применили две формулировки потребности в энергии. Первая формулировка была разработана на основе данных ЭИК RDC (Lidauer и др., 2023) и учитывает четыре стока энергии:
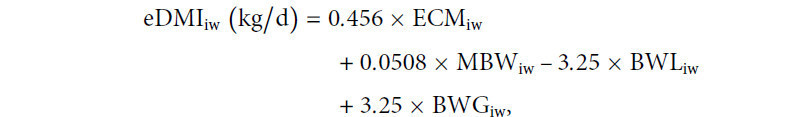
National Academies of Sciences, Engineering, and Medicine (2021) для прогнозирования DMI у голштинских коров, адаптированная для первотёлок:
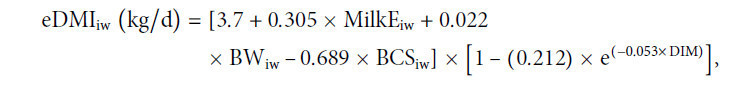
〖"DMI" 〗_(t:"ihmlwp" )=∑_(k=1)^5▒γ_(t:"lk" ) " " Ø_"iwk" +〖"HPY" 〗_(t:h)+〖"HTM" 〗_(t:m)+〖"pe" 〗_(t:i)+u_(t:i)+e_(t:"ihmlw" p),
∑_(k=1)^5▒γ_(t:"lk" ) " " Ø_"iwk" — фиксированная функция регрессии по неделе лактации w, вложенная в стадо l, где Ø_iwk — k-й коэффициент полинома Лежандра четвёртого порядка; HTMt:m — случайный эффект HTM m на признак t с [var(HTM) ∼ MVN (0, I ⊗ M), где I — единичная матрица, а M — матрица (ко)дисперсий HTM размером 5 × 5], а ⊗ — произведение Кронекера; pet:i и ut:i — постоянные средовые эффекты животного и аддитивные генетические эффекты животного, соответственно, для признака t с [var(pe) ∼ MVN (0, I ⊗ P), где I — единичная матрица, P — матрица (ко)дисперсий постоянного средового эффекта размером 5 × 5], и с [var(u) ∼ MVN (0, A ⊗ Va) или var(u) ∼ MVN (0, H ⊗ Va), где A — матрица родственных связей на основе родословной или H — объединённая одношаговая матрица родственных связей, соответственно, а Va — матрица (ко)дисперсий аддитивного генетического эффекта животного размером 5 × 5]; и et:ihmlwp — случайный остаточный эффект с [var(e) ∼ MVN (0, R), где R — матрица (ко)дисперсий остаточных эффектов, R=∑_(p=1)^5▒⊕ I_((p) ) R_((p) ), с учётом пяти классов периодов лактации].
На втором этапе для каждого животного i выводился индекс племенной ценности (BV) на основе родословной или одношаговый индекс (то есть RFIIndex; уравнение 3) путём применения тех же весов индекса, что и для ReFIRDC, к оценённой многофакторной племенной ценности животного:
〖"RFI" 〗_("Index"∶i)=〖"BV" 〗_("DMI"∶i) " "-" " (0,456" " ×〖"BV" 〗_("ECM"∶i)+0,0508×〖"BV" 〗_("MBW"∶i) " " -" " 3,25×〖"BV" 〗_("BWL"∶i)+3,25×〖"BV" 〗_("BWG"∶i) ),
Pryce и др. (2015). Немецкий индекс называется RZFeedEfficiency (RZFE; Abdalla и др., 2024), и в данном исследовании он рассчитывался для животного i той же процедурой, что описана для RFIIndex, но с применением весов, используемых в немецком индексе, следующим образом:
〖"RZFE" 〗_i=(0,4" " ×〖"BV" 〗_("ECM"∶i) " " -" " 4,5×〖"BV" 〗_("BWL"∶i)+4,5×〖"BV" 〗_("BWG"∶i) )" "-" " 〖"BV" 〗_("DMI"∶i),
〖"DMI" 〗_"himwp" =c1×〖"ECM" 〗_"iw" +c2×〖"MBW" 〗_"iw" +c3×〖"BWL" 〗_"iw" +c4×〖"BWG" 〗_"iw" +〖"HPY" 〗_h+〖"HTM" 〗_m+〖"pe" 〗_i+u_i+e_"himwp" ,
〖"ECE" 〗_"himwp" =〖"LWK" 〗_w+〖"HPY" 〗_h+〖"HTM" 〗_m+〖"pe" 〗_i+u_i+e_"himwp" ,
Matilainen и др., 2012). Наследуемости и дисперсии для показателей RFIindex и RZFE были получены на основе компонентов дисперсии, оценённых для модели (2), и применённых весов индекса показателей. Разработанные модели использовались для прогнозирования необходимых PEBV и GEBV для прямой валидации, как описано в следующей главе (см. раздел «Валидация модели»). Для оценки GEBV мы провели одношаговые анализы GBLUP путём замены обратной матрицы числителя родственных связей A–1 на обратную матрицу одношаговых родственных связей H−1 в моделях BLUP (Aguilar и др., 2010; Christensen and Lund, 2010), то есть H−1 = A–1 + [■(0&0@0&G^(-1)-A_22^(-1) )], где G–1 — обратная матрица взвешенной геномной матрицы родственных связей, G = G* × 0,9 + A22 × 0,1, а A_22^(-1) — обратная матрица числителя родственных связей для генотипированных животных. Для построения геномной матрицы родственных связей G* использовался метод 1 из VanRaden (2008). Программа Relax2 (Strandén and Vuori, 2006) использовалась для урезания и валидации родословной, программа Htginv_v7 (Strandén and Mäntysaari, 2018) использовалась для построения матрицы H−1, а программный комплекс MiX99 (Pitkänen и др., 2022) использовался для оценки BV.
Валидация модели
Для оценки прогностической способности различных показателей использовался метод прямой валидации на основе линейной регрессии, описанный Legarra and Reverter (2018) (LR). В этом методе PEBV и GEBV из полного набора данных (PEBVf и GEBVf) регрессируются на PEBV и GEBV из сокращённого набора данных (PEBVr и GEBVr), соответственно, следующим образом: (P)GEBVf = b0 + b1 × (P)GEBVr, где b0 и b1 — смещение (свободный член) и дисперсия (коэффициент регрессии), соответственно, а корреляция между (P)GEBVf и (P)GEBVr — это точность прогнозирования (PAC). В группу валидации были включены 88 самых молодых генотипированных животных, родившихся между 2017 и 2019 годами, которые имели записи в полном наборе данных, но не имели ни записей, ни дочерей с записями в сокращённом наборе данных.
Для расчёта стандартных ошибок наследуемостей (h2) и повторяемостей (r) применялся дельта-метод. Кроме того, для расчёта стандартных ошибок оценок различных показателей с целью оценки согласованности оценок применялся обычный непараметрический бутстрэп-метод (R Development Core Team, 2012). Furthermore, были рассчитаны корреляции Пирсона и Спирмена между GEBV животных с фенотипами для различных показателей. Фенотипы ECE были скорректированы на все эффекты, оценённые с помощью модели (6), кроме аддитивного генетического эффекта животного, чтобы получить скорректированные фенотипы, эквивалентные отклонению по удою ECE, и были рассчитаны корреляции между этими скорректированными фенотипами ECE и GEBV коров для различных показателей.
Результаты и обсуждение
Сводная статистика и частичные коэффициенты регрессии
Описательная статистика для фенотипов изученных данных по эффективности использования корма и применённых альтернативных значений eDMI представлена в таблице 1. В среднем корова потребляла 19,4 кг сухого вещества в день, содержащего 212,7 МДж обменной энергии, и производила 29,0 кг ECM с 4,43% молочного жира и 3,63% молочного белка. Средняя энергетическая плотность рационов составляла 10,94 МДж обменной энергии на кг сухого вещества, что согласуется с сообщениями предыдущих исследований (Mäntysaari и др., 2012; Karlsson и др., 2022). Средние значения eDMI при использовании различных формулировок потребности в энергии были относительно схожими. При применении модели RFI среднее значение eDMI было наиболее близким к среднему наблюдаемого DMI. Напротив, формулировка, рекомендованная в National Academies of Sciences, Engineering, and Medicine (2021), завысила DMI на 1,4 кг. Различия обусловлены различиями в коэффициентах регрессии стоков энергии между различными формулировками. Например, более низкий коэффициент потребности был отнесён к ECM (0,229 против 0,276 для RFI), а более высокий коэффициент потребности — к MBW (0,108 против 0,068 для RFI) в National Academies of Sciences, Engineering, and Medicine (2021) по сравнению с другими формулировками. Кроме того, в National Academies of Sciences, Engineering, and Medicine (2021) имеется коэффициент потребности для BCS в формуле (−0,689), что делает её несколько отличной от других формулировок. Более того, формула прогнозирования DMI, представленная в National Academies of Sciences, Engineering, and Medicine (2021), была разработана для голштинских коров и использовала наблюдения как от первотёлок, так и от многотёльных коров, которые могут иметь различный метаболизм и потребности в энергии. Стандартное отклонение eDMI было наибольшим для формулировки, разработанной для данных ЭИК RDC, что, скорее всего, связано с тем, что среди всех изученных формулировок она имела наибольший коэффициент потребности в энергии для ECM.
Частичные коэффициенты регрессии для различных показателей обобщены в таблице 2. Чтобы сделать частичные коэффициенты регрессии различных показателей сопоставимыми, мы преобразовали коэффициенты уравнения прогнозирования eDMI из National Academies of Sciences, Engineering, and Medicine (2021) в шкалы ECM и MBW. Предполагая, что 1 кг ECM содержит 0,75 Мкал NEL, это приводит к коэффициенту ReFINRC2021, равному 0,229 кг сухого вещества на кг ECM. Средняя MBW в наших данных составляла 119,7 кг0,75, что соответствует массе тела 590 кг. Использование коэффициента 0,022 кг сухого вещества/кг массы тела из уравнения 2-1 в National Academies of Sciences, Engineering, and Medicine (2021) дало 0,108 в качестве коэффициента для MBW. Однако, помимо формулировки National Academies of Sciences, Engineering, and Medicine (2021), применённой в данном исследовании, National Academies of Sciences, Engineering, and Medicine (2021) предложили увеличить потребность в энергии на поддержание жизнедеятельности на 25% по сравнению с NRC (2001), что дало бы коэффициент 0,121 для MBW.
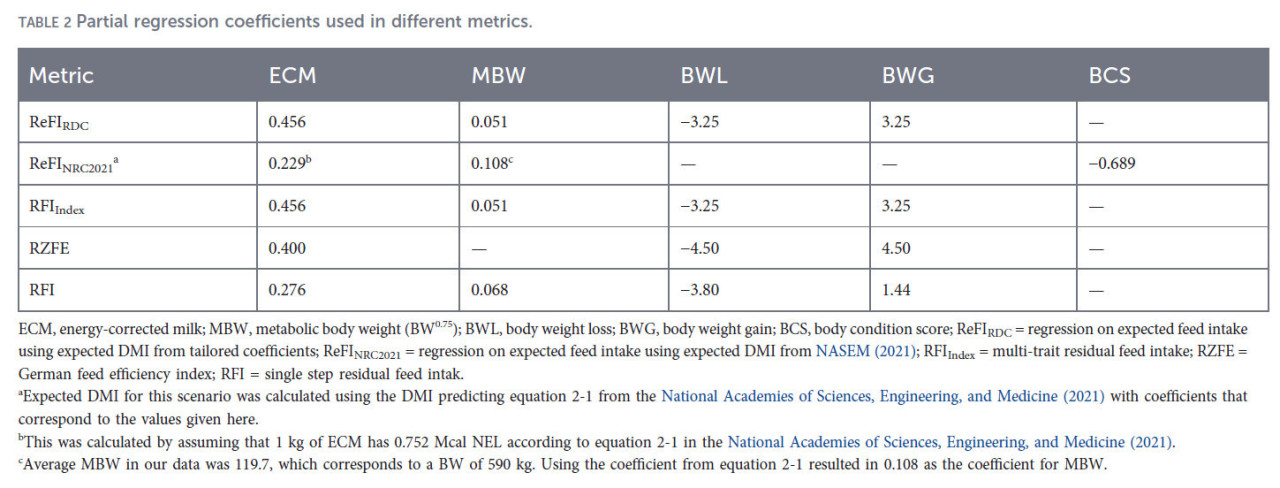
ТАБЛИЦА 2 Частичные коэффициенты регрессии, используемые в различных показателях.
ECM — молоко, скорректированное по энергии; MBW — метаболическая масса тела (BW0,75); BWL — потеря массы тела; BWG — прирост массы тела; BCS — оценка упитанности; ReFIRDC = регрессия на ожидаемое потребление корма с использованием ожидаемого DMI из адаптированных коэффициентов; ReFINRC2021 = регрессия на ожидаемое потребление корма с использованием ожидаемого DMI из NASEM (2021); RFIIndex = многофакторный остаточный приём корма; RZFE = немецкий индекс эффективности использования корма; RFI = одношаговый остаточный приём корма.
При сравнении частичных коэффициентов регрессии формулировок, разработанных с учётом nutritional исследований (ReFIRDC, RFIIndex и RZFE), с теми, которые основаны на частичном регрессионном анализе (ReFINRC2021 и RFI), видно, что формулировки, основанные на частичном регрессионном анализе, дают более низкие коэффициенты регрессии для ECM и более высокие коэффициенты регрессии для MBW. Частичные коэффициенты регрессии, полученные при применении одношаговой модели RFI, составили 0,276 для ECM и 0,068 для MBW, тогда как соответствующие значения на основе данных RDC составили 0,456 и 0,0508 соответственно. Формулировки потребности для ReFIRDC и RZFE существенно различаются в распределении корма на производство молока и рост. Для ReFIRDC коэффициент для BWG в 7,1 раза больше, чем для ECM. Напротив, для RZFE коэффициент для BWG в 11,3 раза больше, чем для ECM, что подразумевает, что более низкая эффективность конверсии DMI в ткань тела была учтена в немецком показателе RZFE.
Компоненты дисперсии
Компоненты дисперсии, h2 и повторяемость для пяти показателей эффективности использования корма и для ECE представлены в таблице 3. Объединённые оценки остаточной дисперсии, рассчитанные как взвешенные средние остаточных оценок для пяти периодов лактации, использовались для облегчения сравнений. Среди пяти показателей наименьшая остаточная дисперсия наблюдалась для RFIIndex, за которой следовали схожие оценки для RZFE, ReFINRC2021 и RFI, с наибольшей оценкой для ReFIRDC. Тем не менее, наследуемости были на одном уровне для RFI, ReFIRDC и RFIIndex (0,23, 0,24 и 0,26 соответственно) и несколько выше для RZFE и ReFINRC2021 (0,29 и 0,30 соответственно). Это может быть связано с оценённой генетической дисперсией для ReFIRDC (0,00303 × 202 = 1,21 кг2), которая была выше, чем оценки для RFI и RFIIndex. Мы получили наивысшую оценку аддитивной генетической дисперсии для ReFINRC2021 (0,00334 × 20,82 = 1,45 кг2), за которой следует оценка для RZEF (1,41 кг2). Оценённые повторяемости были довольно схожими для ReFIRDC, ReFINRC2021, RFIIndex и RZFE (0,50–0,52), но несколько ниже для RFI (0,48). Из-за размера доступных данных оценки наследуемости и надёжности были связаны с большими стандартными ошибками.
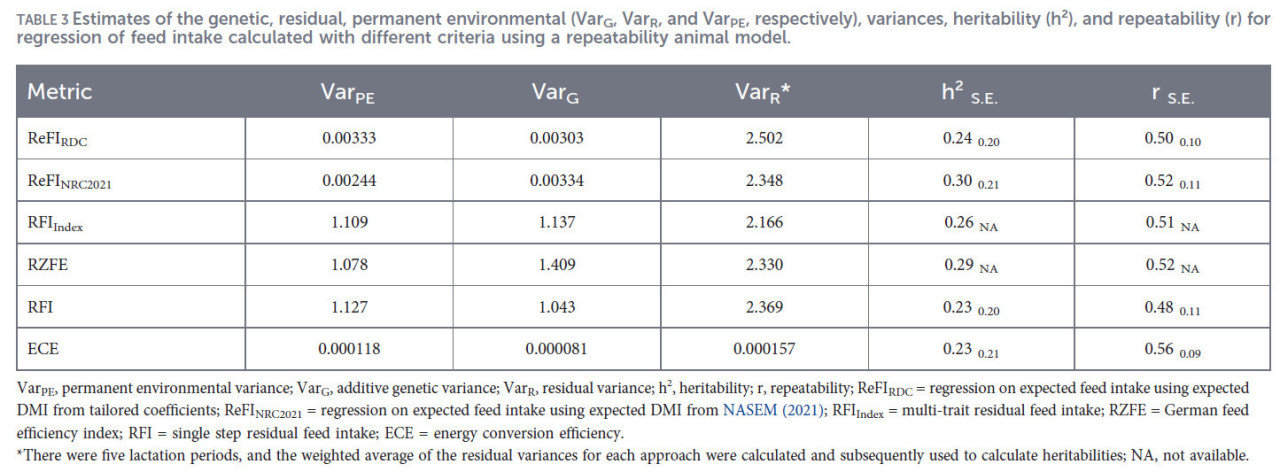
ТАБЛИЦА 3 Оценки генетической, остаточной, постоянной средовой (VarG, VarR и VarPE соответственно) дисперсий, наследуемости (h2) и повторяемости (r) для регрессии потребления корма, рассчитанные по различным критериям с использованием модели повторяемости животного.
VarPE — дисперсия постоянного средового эффекта; VarG — аддитивная генетическая дисперсия; VarR — остаточная дисперсия; h2 — наследуемость; r — повторяемость; ReFIRDC = регрессия на ожидаемое потребление корма с использованием ожидаемого DMI из адаптированных коэффициентов; ReFINRC2021 = регрессия на ожидаемое потребление корма с использованием ожидаемого DMI из NASEM (2021); RFIIndex = многофакторный остаточный приём корма; RZFE = немецкий индекс эффективности использования корма; RFI = одношаговый остаточный приём корма; ECE — эффективность преобразования энергии.
*Было пять периодов лактации, и взвешенное среднее остаточных дисперсий для каждого подхода было рассчитано и впоследствии использовано для расчёта наследуемостей; NA — недоступно.
Сообщения о h2 RFI у молочных коров из разных стран хорошо согласуются с оценками настоящего исследования, которые варьировались от 0,16 до 0,38 (Pryce и др., 2012; Lu и др., 2015; Stephansen и др., 2022). Схожие значения h2 были сообщены для голштинских молочных тёлок (0,24) (Khanal и др., 2023), скота породы нелоре (0,21) (Brunes и др., 2023) и других видов, таких как индейки (0,15) (Abdalla и др., 2019) и свиньи (0,30) (Wang и др., 2022). Величина оценённой генетической дисперсии и h2 указывает на то, что существует достаточная генетическая изменчивость по ЭИК, и эти признаки могут быть улучшены путём отбора.
Причина более высокой оценки h2 для ReFINRC2021 по сравнению с ReFIRDC неясна. Формулировка потребности в энергии, применённая для ReFINRC2021, выделяет меньше DMI на ECM и больше DMI на массу тела по сравнению с формулировкой потребности в энергии для ReFIRDC. Если разница между наблюдаемым и ожидаемым DMI меньше подвержена влиянию фактической разницы в ЭИК и больше подвержена влиянию неподходящих коэффициентов, это может завысить наследуемость, поскольку разница может отражать вариации, вызванные признаками-стоками, а не вариации в ЭИК. Более высокая оценка h2 для RZFE может быть связана с тем, что RZFE является индексным признаком, состоящим из компонента метаболической эффективности, аналогичного другим показателям в данном исследовании, и компонента поддержания жизнедеятельности, который учитывает размер коровы.
Признак ECE, который использовался для целей валидации в данном исследовании, имел относительно схожую h2 с другими показателями ЭИК. Из-за ограниченной доступности как записей DMI, так и анализов содержания обменной энергии оценки ECE редки в литературе. Выполняя лонгитюдный анализ, Hurley и др. (2017) оценили h2 для ECE в диапазоне от 0,06 на 60-й день лактации до 0,28 на 250-й день лактации. Liinamo и др. (2015) сообщили о лактационной h2 ECE, равной 0,16 для коров RDC. Оценённое значение h2 для валовой эффективности использования корма составило 0,32 для голштинских коров на исследовательской ферме Университета штата Айова (Spurlock и др., 2012). В другом исследовании с использованием более крупного набора данных Vallimont и др. (2011) сообщили о значении h2, равном 0,14, для эффективности DMI, которая представляла собой отношение молока, скорректированного по жиру, к DMI.
Валидация показателей
Результаты прямой валидации, полученные с использованием процедуры LR, представлены в таблице 4. Результаты показывают, что смещения, полученные из моделей прогнозирования на основе родословной и геномных данных, различались, указывая на более низкие смещения для ReFIRDC, ReFINRC2021 и ECE и более высокие смещения для индексных показателей RFIIndex и RZFE. Среди различных показателей RFIIndex, RZFE и RFI показали более высокое смещение прогнозирования как для прогнозов на основе родословной, так и для геномных прогнозов, варьирующееся в диапазоне от 0,09 до 0,22 генетических стандартных отклонений. Оценки дисперсии для моделей прогнозирования на основе родословной и геномных данных были ниже 1,0. Среди геномных моделей наименьшая оценка дисперсии (0,454) была получена для RFIIndex, а наибольшая (0,951) — для RZFE. Кроме того, дисперсии, оценённые с использованием геномных прогнозов, как правило, были связаны с более низкими стандартными ошибками, что указывает на большую стабильность оценок. Корреляции между GEBVf и GEBVr для различных показателей варьировались от 0,30 до 0,53 и были значительно выше корреляций между PEBVf и PEBVr (от 0,17 до 0,41; таблица 4). Среди показателей ReFIRDC дал наивысший PAC, за которым следует RFI. Хотя ReFIRDC и ReFINRC2021 имели одинаковое моделирование, ReFIRDC дал на 23% более высокий PAC. Это можно объяснить применёнными коэффициентами регрессии при расчёте eDMI, которые существенно различались (таблица 2). Применённые коэффициенты регрессии для eDMI в ReFIRDC получены из nutritional исследований и отражают потребность в DMI для ECM, MBW и изменения массы тела. Напротив, коэффициенты регрессии, применённые при расчёте eDMI для ReFINRC2021, были получены из регрессионных анализов, сообщённых National Academies of Sciences, Engineering, and Medicine (2021). Частичные регрессионные анализы обеспечивают хорошее соответствие модели при моделировании общей потребности в энергии. Тем не менее, частичный коэффициент для конкретного стока энергии может быть неоптимальным, что снижает точность индивидуальных значений eDMI. Например, для ReFINRC2021 применённый коэффициент для ECM занижает ожидаемую потребность в корме для ECM. Более того, коэффициент вариации ECM выше, чем у MBW, что позволяет ReFIRDC охватывать большую долю общей вариации составного признака и, таким образом, лучше стабилизировать обучающие и валидационные GEBV и гарантировать, что они находятся в одном масштабе. С другой стороны, ReFIRDC включает BWL и BWG, которые измеряются более точно по сравнению с субъективной природой BCS в National Academies of Sciences, Engineering, and Medicine (2021). Кроме того, для ECE корреляция между GEBVf и GEBVr была значительно выше, чем между PEBVf и PEBVr (0,43 против 0,18). В целом, показатели ЭИК с одношаговым моделированием приводили к более высокому PAC.
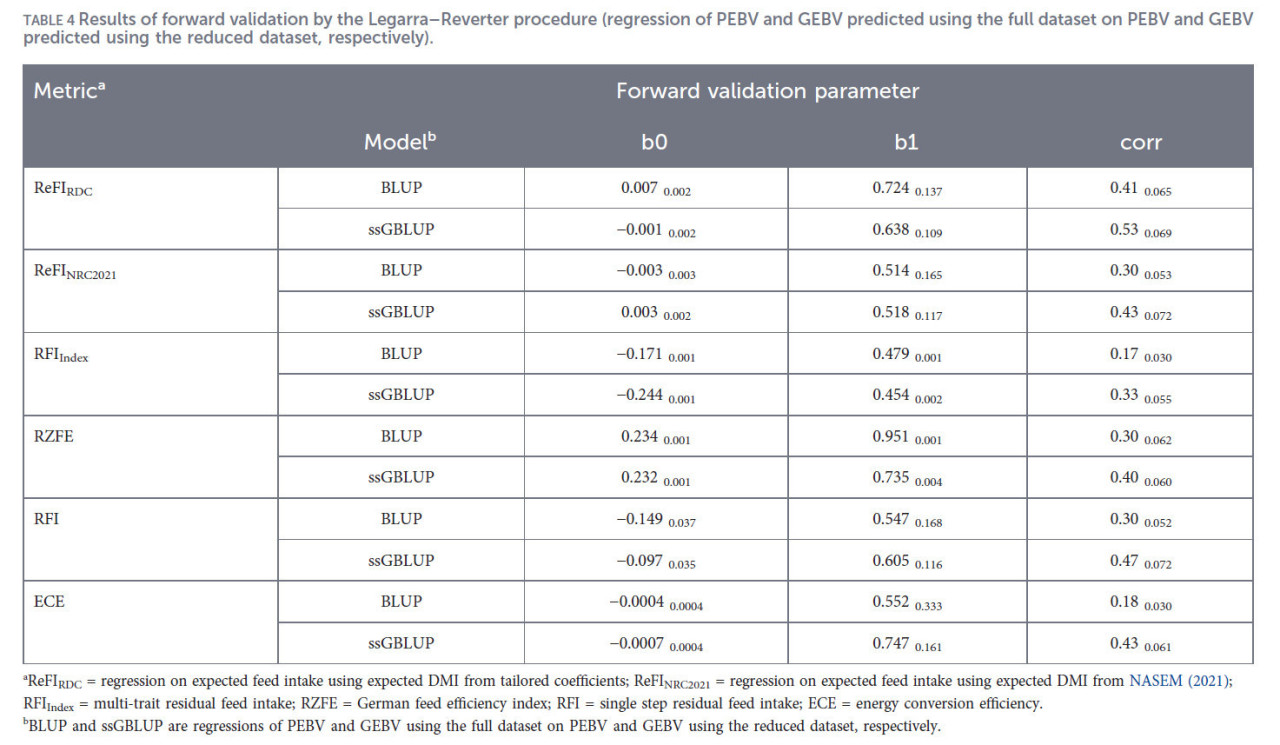
ТАБЛИЦА 4 Результаты прямой валидации по процедуре Legarra–Reverter (регрессия PEBV и GEBV, предсказанных с использованием полного набора данных, на PEBV и GEBV, предсказанных с использованием сокращённого набора данных, соответственно).
Результаты указывают на то, что включение геномной информации в оценку животных приводит к более высокому PAC. Используя различные подходы (GBLUP и BayesA), Pryce и др. (2012) сообщили о среднем PAC для значений RFI 0,37 и 0,31 у австралийских и новозеландских молочных тёлок соответственно. Кроме того, Li и др. (2020) оценили средний PAC 0,34 для RFI для всех фенотипированных животных с использованием одношагового GBLUP в своём исследовании. В другом исследовании Abdalla и др. (2019) сообщили об улучшенной дисперсии и более высоком PAC при использовании одношагового GBLUP по сравнению с PBLUP для RFI у индеек. Наивысший достижимый PAC при использовании геномной селекции может варьироваться в зависимости от конкретного применения и используемых данных. В целом он может составлять от примерно 0,4 до 0,9, что означает, что от 40% до 90% генетической дисперсии признака может быть объяснено геномными данными.
Несмотря на то, что метод прямого прогнозирования LR позволяет оценить качество прогнозируемых BV для показателей, сравниваемых в данном исследовании, он не позволяет оценить потенциал показателей для отбора животных с общей эффективностью использования корма. Поэтому мы оценили корреляции между GEBV различных показателей и геномными племенными ценностями для ECE. В целом, ECE легко рассчитать и понять, и это фактический признак ЭИК, который молочные фермеры хотят улучшить. Корреляции Пирсона и Спирмена между GEBV животных для различных остаточных показателей и ECE показаны в таблице 5. GEBV для ReFIRDC и RFIIndex имели наивысшие корреляции Пирсона с GEBV для ECE (−0,70 и −0,69 соответственно) и наивысшие корреляции Спирмена, тогда как GEBV для RFINRC2021 и RFI имели наименьшую корреляцию Пирсона с GEBV для ECE (−0,54 и −0,58 соответственно). Это подразумевает, что отбор особей с более низкими GEBV для ReFIRDC или RFIIndex лучше всего улучшил бы общую ЭИК по сравнению с отбором на основе GEBV, который основан на других изученных показателях. Вопреки нашим ожиданиям, корреляция между ReFIRDC и RFIIndex была меньше, чем между ReFIRDC и RFI (0,82 против 0,93), и она отклонялась от единицы, хотя оба использовали один и тот же набор частичных коэффициентов регрессии. Это связано с моделированием, поскольку ReFIRDC и RFI выполнялись одношаговым способом, тогда как для RFIIndex мы сначала прогнозировали многофакторные (G)EBV, а затем объединяли их.
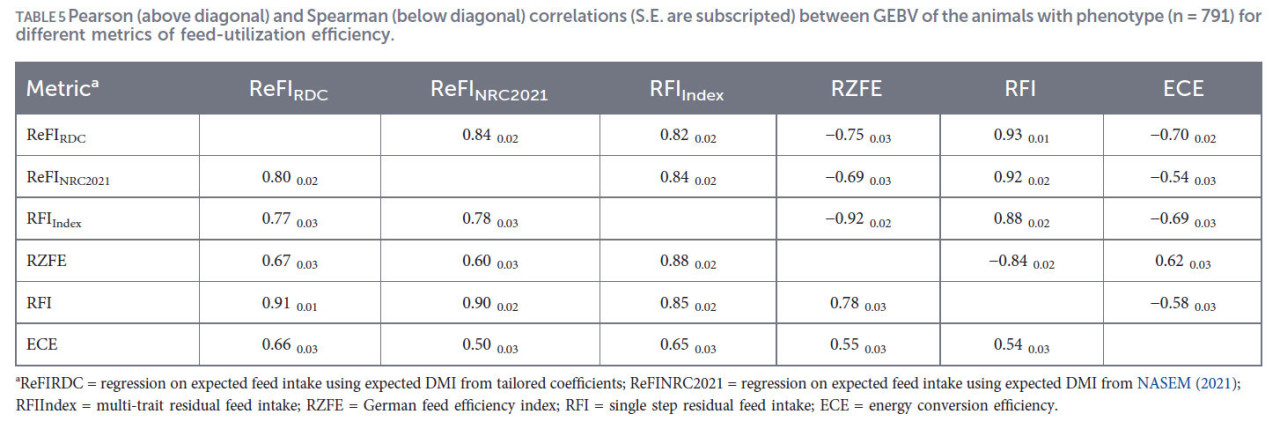
ТАБЛИЦА 5 Корреляции Пирсона (выше диагонали) и Спирмена (ниже диагонали) (стандартные ошибки указаны в нижнем индексе) между GEBV животных с фенотипом (n = 791) для различных показателей эффективности использования корма.
Последние результаты также подтверждаются корреляциями между фенотипами ECE, скорректированными на все эффекты в модели, кроме аддитивного генетического эффекта животного, и GEBV различных показателей (таблица 6). Среди изученных показателей GEBV животных для ReFIRDC имели наивысшую корреляцию (−0,64), а GEBV для RFINRC2021 (−0,47) имели наименьшую корреляцию со скорректированными фенотипами ECE. Причина более высокой корреляции ECE с ReFIRDC по сравнению с RZFE требует дальнейшего анализа. Можно было бы ожидать, что RZFE имеет более высокую корреляцию с ECE, поскольку индекс RZFE включает DMI, необходимый для поддержания жизнедеятельности, в качестве дополнительного компонента, и, таким образом, он должен лучше напоминать ECE. Одна из причин может заключаться в том, что применённый коэффициент потребности в энергии для ECM в показателе RZFE довольно низок (0,4) и соответствует очень высокой эффективности использования обменной энергии для лактации kl = 0,72, которая, скорее всего, не была достигнута коровами. С другой стороны, ReFIRDC основан на подходе случайной регрессии и, следовательно, имеет ту же способность, что и ECE, учитывать мультипликативный эффект факторов эффективности (Lidauer и др., 2023). GEBV для RFINRC2021, показывающие относительно низкую корреляцию со скорректированными наблюдениями ECE (−0,47), скорее всего, обусловлены очень низким коэффициентом потребности в энергии для ECM, который может плохо согласовываться с потребностью в DMI для производства. Следовательно, учёт специфических потребностей животного в энергии для различных стоков энергии, наряду с выбором подходящей модели, имеет важное значение при стремлении максимизировать генетический прогресс по ЭИК в программе разведения. Хотя все наблюдения в данном исследовании были от первотёлок, поскольку расчёты основывались на единице стоков энергии, можно ожидать, что аналогичные результаты будут получены и для многотёльных коров.
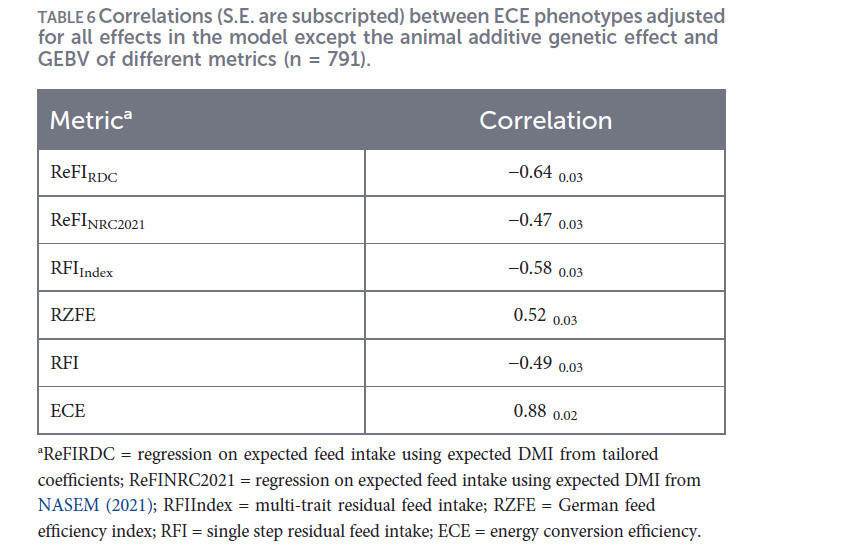
ТАБЛИЦА 6 Корреляции (стандартные ошибки указаны в нижнем индексе) между фенотипами ECE, скорректированными на все эффекты в модели, кроме аддитивного генетического эффекта животного, и GEBV различных показателей (n = 791).
Заключение
В данном исследовании сравнивались различные показатели ЭИК, основанные на различных моделях и системах потребности в энергии. Геномная информация также была включена для оценки степени улучшения точности прогнозирования, которое потенциально может быть достигнуто путём внедрения одношагового GBLUP. Результаты показали, что как различия в системах потребности в энергии, так и различия в процессе моделирования приведут к различным ранжированиям животных, различающихся по эффективности использования корма. При использовании одной и той же модели ReFIRDC превзошёл ReFINRC2021, обеспечив на 23% более высокую точность прогнозирования, что подчёркивает важность выбора надлежащих частичных коэффициентов регрессии (или уравнений прогнозирования) для расчёта ожидаемого DMI. С другой стороны, при использовании одних и тех же частичных коэффициентов регрессии, но различных процессов моделирования ReFIRDC привёл к более высокой точности прогнозирования и показал несколько более высокую корреляцию с ECE по сравнению с RFIIndex. Результаты указывают на то, что модификация моделирования признаков ЭИК приведёт к значительному генетическому прогрессу. Это также указывает на то, что значительное улучшение ЭИК может быть достигнуто даже при наличии небольшого числа фенотипированных и генотипированных животных. Однако для достижения более высокой надёжности прогнозирования и ускорения генетического улучшения ЭИК необходима более крупная референсная популяция.
Chegini A, Negussie E, Kokkonen T and Lidauer MH (2026) Different feed efficiency modeling approaches for the prediction of genomic breeding values in lactating dairy cows. Front. Genet. 17:1815864. doi: 10.3389/fgene.2026.1815864
Перевод статьи «Different feed efficiency modeling approaches for the prediction of genomic breeding values in lactating dairy cows» авторов Chegini A, Negussie E, Kokkonen T and Lidauer MH, оригинал доступен по ссылке. Лицензия: CC BY. Изменения: переведено на русский язык
Фото: Designed by Freepik




Комментарии (0)