

Древние вирусы в геноме томата: как методы земледелия помогают растению справляться с солью
Эндогенные последовательности параретровирусов (ЭПРВ) расширяют пластичность генома растений и могут служить резервуарами для адаптивной эволюции. Большинство из них претерпели перестройки и мутации, что делает их в значительной степени неактивными. Хотя их интеграция обычно нейтральна, биотические и абиотические стрессы могут иногда реактивировать ЭПРВ, вызывая спонтанные инфекции. Растения противодействуют этому, подавляя экспрессию посредством дегенерации последовательностей, фрагментации и механизмов эпигенетического подавления, таких как метилирование ДНК.
Аннотация
Методы: ЭПРВ были обнаружены с помощью ПЦР в пределах семейства Паслёновые. Геномные сегменты были охарактеризованы посредством ПЦР-амплификации, секвенирования и анализа генетического разнообразия и эволюционных параметров. Два контрастных по солеустойчивости генотипа томата выращивали в условиях засоления с использованием двух стратегий земледелия, включая монокультуру и совместное выращивание с галофитными растениями. Распределение ЭПРВ определяли с помощью количественной ПЦР, а статус метилирования оценивали посредством бисульфитной обработки с последующей ПЦР-амплификацией, клонированием и секвенированием.
Результаты: Сравнительный анализ генетического разнообразия выявил дифференциальную вариабельность в межгенной (IGR) области и в месте соединения капсидного и транспортного белков (CP-MP), что, вероятно, отражает различные селективные ограничения. Гаплотипические сети, построенные по последовательностям, а также тесты на нейтральность и распределения несоответствий указали на наличие циклов регуляторного «бутылочного горлышка» — расширения в IGR, что контрастирует с признаками очищающего отбора в месте соединения CP-MP. Количественная ПЦР и бисульфит-ПЦР-секвенирование области IGR показали, что как число копий ЭПРВ, так и уровень метилирования цитозина дифференциально модулируются в ответ на стратегию выращивания.
Обсуждение: Эти результаты дают новые представления о динамической роли ЭПРВ в формировании ответных реакций растений на солевой стресс, при этом подход совместного выращивания оказался эффективной стратегией земледелия для смягчения неблагоприятных эффектов солевого стресса.
1 Введение
Эндогенные параретровирусы, ЭПРВ, представители семейства Caulimoviridae, обладают кольцевым двуцепочечным геномом ДНК и реплицируются через РНК-посредник, а также широко распространены по всему растительному царству (Sharma и др., 2020). Помимо присутствия в эписомальной форме, эти параретровирусные элементы были обнаружены в геномах нескольких видов растений (Staginnus и Richert-Pöggeler, 2006), включая томат (De Tomás и Vicient, 2022; Staginnus и др., 2007), рис (Chen и Kishima, 2016), табак (Mette и др., 2002), Petunia hybrida (Richert-Pöggeler и Shepherd, 1997) и банан (Chabannes и др., 2021). Эти элементы часто демонстрируют перестройки и фрагментацию, и считается, что их интеграция в геном растения происходит посредством незаконной рекомбинации в процессе репарации ДНК хозяина, что обеспечивает их долгосрочное сохранение в геноме растения (Richert-Pöggeler и др., 2021).
Большинство ЭПРВ состоят из нефункциональных линейных фрагментов вирусной ДНК, неспособных формировать эписомальные частицы (Yu и др., 2019). Тем не менее, специфические стрессовые условия или селекционные вмешательства могут запускать реактивацию определенных интегрантов, что приводит к восстановлению инфекционных эписомальных форм и потенциальному повторному возникновению экзогенных инфекций (Geering и др., 2005; Richert-Pöggeler и др., 2003; Schmidt и др., 2021).
В геномах покрытосеменных, голосеменных и папоротников повторы, происходящие от ретроэлементов, могут накапливаться в высоких числах копий и, по-видимому, обладают гомологией последовательностей с ретровирусами и ретротранспозонами с длинными концевыми повторами (LTR) (Quadrana и Henderson, 2025). Они обычно кодируют консервативные ферментативные домены, включая обратную транскриптазу (RT), аспартатную протеазу (PR) и РНКазу H (RH), а также неферментативные белки, такие как транспортный белок (MP) и белок оболочки (CP). Эти элементы преимущественно обогащены в гетерохроматиновых областях, особенно в AT-богатых и TA-динамических доменах, и часто обнаруживаются рядом с другими ретроэлементами и транспозонами (Schmidt и др., 2021). В отличие от классических ретротранспозонов, ЭПРВ не имеют фланкирующих LTR, что выделяет их в уникальный подкласс транспозируемых элементов (Jakowitsch и др., 1999).
Транспозируемые элементы (TEs) представляют собой доминирующий компонент большинства эукариотических геномов, включая геномы растений, и их обилие существенно различается не только между разными видами растений, но и между особями внутри вида (Cahn и др., 2016; Domínguez и др., 2020). У Arabidopsis thaliana TEs составляют примерно 21% генома, тогда как многие другие растительные геномы демонстрируют значительно более высокую долю TEs: около 40% у риса, 60% у томата, 80% у пшеницы и до 85% у кукурузы (Jouffroy и др., 2016; Oliver и др., 2013; Quesneville, 2020). Это расхождение в значительной степени обусловлено высокой распространенностью ретротранспозонов, которые доминируют в крупных растительных геномах, таких как геном томата (Deneweth и др., 2022). ЭПРВ, возможно, были одомашнены как TEs и стабильно интегрированы в геномы растений-хозяев в ходе эволюционного процесса (Yu и др., 2019). В роде Petuvirus семейства Caulimoviridae были идентифицированы остатки интегразоподобного домена вместе с квази-длинными концевыми повторами (Richert-Pöggeler и Shepherd, 1997, 2003), что предполагает, что некоторые предковые компоненты могли быть элиминированы в ходе эволюционного развития каулимовирусов.
События интеграции могут происходить через множество путей, включая тандемные или вложенные вставки, эктопическую рекомбинацию между негомологичными локусами (Bombarely и др., 2016), интеграцию, управляемую обратной транскрипцией (Bennetzen, 2002), и неравный кроссинговер в ходе мейотической профазы тандемных массивов (Gayral и др., 2008). После интеграции эти элементы наследуемо сохраняются и передаются из поколения в поколение подобно нативным генам хозяина. В ходе эволюции большинство ЭПРВ претерпели обширные перестройки и накопили мутации, что сделало их функционально неактивными. Хотя интеграция последовательностей ЭПРВ в растительные геномы обычно считается нейтральной, определенные биотические и абиотические ограничения могут реактивировать эти элементы, потенциально приводя к спонтанным инфекциям (Valli и др., 2023). Данные свидетельствуют о том, что ЭПРВ не всегда остаются транскрипционно инертными; их активность обычно подавляется механизмами сайленсинга хозяина, что приводит к прогрессирующей фрагментации или дегенерации последовательностей. Тем не менее, было показано, что интегрированные сегменты вируса полосатости банана (BSV) (Gayral и др., 2008), вируса просветления жилок табака (TVCV) и вируса просветления жилок петунии (PVCV) (Kuriyama и др., 2022) реактивируются под действием абиотического стресса. Это динамическое взаимодействие генома хозяина и ЭПРВ может culminировать в образовании вирусных частиц и проявлении симптомов, подобных инфекционным. Реактивация, вероятно, требует транскрипции близко расположенных интегрантов или рекомбинации фрагментированных последовательностей, что в конечном итоге приводит к образованию эписомальных копий. Эти механизмы приводят к продукции вирусных частиц и появлению симптомов, связанных с вирусными инфекциями (Lisch, 2009). Чтобы ограничить активацию и потенциальное распространение ЭПРВ, растения часто подавляют их экспрессию посредством дегенерации и фрагментации последовательностей, что делает транскрипцию полноразмерных вирусных компонентов неэффективной. Кроме того, эпигенетические механизмы, такие как метилирование ДНК и модификация гистонов, способствуют долгосрочному сайленсингу ЭПРВ (Dohm и др., 2014; Zakrzewski и др., 2017; Richert-Pöggeler и др., 2021).
Эти стратегии сдерживания могут включать полногеномную амплификацию с последующей интеграцией в гетерохроматиновые области для структурной стабилизации и транскрипционной репрессии. Такие регуляторные механизмы помогают смягчить потенциальную геномную нестабильность и вирусную реактивацию, индуцированные ЭПРВ (Schmidt и др., 2021).
Кроме того, выдвигается гипотеза, что случайное геномное включение ЭПРВ обеспечивает своего рода иммунологическую память против родственных патогенов, хотя прямые доказательства остаются ограниченными (Chen и Kishima, 2016; Richert-Pöggeler и др., 2021). ЭПРВ, по-видимому, способствуют противовирусной защите в своем хозяине, опосредуя транскрипционный сайленсинг генов (TGS) и посттранскрипционный сайленсинг генов (PTGS), главным образом через пути РНК-направленного метилирования ДНК и РНК-интерференции (Kuriyama и др., 2020). Виды Solanum использовались в качестве модельных систем для изучения состава и динамики ЭПРВ (Hosmani и др., 2019; Hardigan и др., 2017; Tomato Genome Sequencing Consortium, 2014). Недавние исследования предполагают, что хромосомные области, происходящие от ЭПРВ, могут служить источниками широкоспектрального, гомология-зависимого сайленсинга, потенциально кодируя наследуемую запись о предшествующих вирусных экспозициях (Valli и др., 2023). Наличие естественно встречающихся инвертированных повторов в локусах ЭПРВ может представлять ранние этапы эволюции иммунологической памяти на основе последовательностей.
Быстрый рост мирового населения повысил спрос на продовольственные ресурсы. Однако продуктивность сельского хозяйства сталкивается с растущими проблемами из-за различных биотических и абиотических стрессоров, включая засуху и засоление (Tkemaladze, 2025), что значительно затрудняет устойчивость продовольственного снабжения. Среди этих факторов солевой стресс выделяется какmajor абиотическая угроза, серьезно влияющая на развитие и урожайность растений (Afzal и др., 2023). Усиление засоления почв по всему миру привело к существенному снижению производства сельскохозяйственных культур, негативно влияя на здоровье растений и ограничивая эффективность сельского хозяйства (AbuQamar и др., 2024). Кроме того, такие проблемы способствовали быстрому распространению засоленных почв, сокращая площадь возделываемых земель и негативно влияя на сельскохозяйственное производство (Tibesigwa и др., 2025). Использование солеустойчивых растений для решения проблемы засоления почв и воды представляет собой рентабельный и эффективный подход фиторемедиации, повышающий продуктивность сельского хозяйства на засоленных территориях. Многочисленные виды галофитов обладают замечательной способностью поглощать и накапливать соль в своих тканях, что делает их ценными для смягчения проблем, связанных с засолением (Simpson и др., 2018; Wang и др., 2022). Все больше исследований сосредоточено на интеграции галофитов в системы совместного или последовательного выращивания для содействия рассолению почв (Ben Hamed и др., 2021, Slatni и др., 2024). Практика совместного выращивания с галофитами показала многообещающие результаты в повышении роста и урожайности agriculturally важных растений (Jurado и др., 2024; Slatni и др., 2024; Sogoni и др., 2025). Graifenberg и др. (2003) наблюдали, что присутствие галофита Suaeda salsa смягчало негативное воздействие соли и улучшало показатели растений томата по сухой массе побегов и производству плодов. Таким образом, смешивание томата с галофитом Portulaca oleracea привело к увеличению роста растений и производства плодов, а также смягчило воздействие засоления на урожайность томата (Zuccarini, 2008). Кроме того, сообщения указывают, что система совместного выращивания, объединяющая хлопчатник и галофиты, продемонстрировала превосходные показатели по удалению соли и продуктивности культур по сравнению с системой монокультуры (Liang и She, 2021). Принятие системы выращивания томата и галофитов представляется мощной возможностью значительно повысить устойчивость солечувствительных культур в районах, подверженных засолению (Jurado и др., 2024). Однако такая стратегия должна управляться правильно, чтобы избежать конкуренции между видами и оптимизировать использование природных ресурсов (Maitra и др., 2021).
Томат (Solanum lycopersicum L.), одна из наиболее важных овощных культур, возделываемых в Средиземноморском регионе, умеренно чувствителен к засолению (Wang и др., 2023). В условиях солевого стресса растения томата проявляют сниженную эффективность использования питательных веществ, что создает проблему для поддержания высокой урожайности и качества плодов (Patanè и др., 2011; Wang и др., 2020). Понимание неблагоприятного воздействия солевого стресса на культуры томата имеет ключевое значение для разработки и внедрения эффективных практик для удовлетворения рыночного спроса. Для решения этой проблемы наше исследование сосредоточено на динамической роли ЭПРВ как ключевых биомаркеров адаптации к солевому стрессу у контрастных генотипов томата. ЭПРВ были идентифицированы у видов Solanaceae, включая томат, баклажан и табак. Мы специально проанализировали генетическое разнообразие и эволюционный сценарий в пределах двух параретровирусных сегментов, соответствующих межгенной области (IGR) и соединению капсидного и транспортного белков (CP-MP). Одновременно мы оценили влияние систем земледелия на динамику ЭПРВ путем сравнения традиционной монокультуры с совместным выращиванием с участием видов галофитов в условиях засоления. Мы дополнительно исследовали распределение ЭПРВ и статус метилирования области IGR. Наши результаты подчеркивают регуляторную гибкость ЭПРВ и демонстрируют агрономическую пользу совместного выращивания как перспективной стратегии для повышения устойчивости культур и содействия устойчивому сельскому хозяйству.
2 Материалы и методы
2.1 Растительный материал и выращивание в теплице
Растительный материал соответствует (i) Solanum lycopersicum: Coeur de boeuf (Cbf), Sabra (Sb), Saint-pierre (Sp), Marmade VR (Mar), Rio grande (Rio), Merveille des marchés (Mdm); (ii) Capsicum annuum: Marconi rosso (Mr), Corno di toro rosso (Cdt), Picante rosso (Pr); (iii) Solanum melongena: Bellezza near (Bn), Mezza lunga violetta (Ml)) и (iiii) Nicotiana tabacum Xanthi (N). Эти сорта обычно используются тунисскими фермерами, и соответствующие семена были предоставлены Лабораторией семян и анализа растений (Министерство сельского хозяйства, ТУНИС). Семена дезинфицировали раствором 95% этанола и 0,1% твина, а затем высаживали в горшки высотой 500 мм, заполненные смесью растительного компоста (40%), торфяного мха (40%) и песка (20%). Почву обогащали удобрением NPK 20-20-20 (pH 6,8, Terranum). 10 растений каждого сорта поливали снизу каждые 3 дня. Эксперименты проводились в экологически контролируемой теплице, расположенной на факультете наук Туниса (GPS-координаты 36,8125°N, 10,1387°E), Тунис. Горшки располагали случайным образом в контролируемых условиях (40-60% относительной влажности; 8/16 ч темного/светлого цикла (100 мкмоль/м2.с) с дневной/ночной температурой 25°C/18°C.
2.2 Экстракция ДНК и амплификация ЭПРВ
Геномную ДНК выделяли из свежих листьев с использованием набора для экстракции Analytik Jena согласно инструкциям производителя. Набор соответствует методу экстракции ДНК, специально разработанному для выделения геномной ДНК и активно исключающему мелкие кольцевые эписомальные формы. Количественную оценку ДНК проводили с помощью спектрофотометра ND-1000 (Nanodrop Technologies, США). ПЦР-амплификацию проводили с использованием вырожденных праймеров для нацеливания на соединение CP-MP параретровируса (F:5’CWTGTTAYAAYTGYGGAAARWTAGGAC3’ и R:5’TTTCWATRGGNGTATCTATTCCTTCTC3’) и межгенную область IGR (F: 5’CWYTTAAGWTYATGAGTAGCTAWATTAATTTATTCCTG3’ и R: 5’CCTCAAMTYTGTTTAMTCCCCTAAACGG3’) (Staginnus и др., 2007). ПЦР-реакцию проводили в конечном объеме 25 мкл, содержащем 100 нг каждого праймера, 5 мкл 10X буфера, 1 мкл dNTP (по 10 мМ каждого), 1,5 мкл MgCl2 (1,5 мМ), 1U Taq ДНК-полимеразы (MP Biomedicals, Европа), 2 мкл экстрагированной ДНК и стерильную воду. ПЦР-амплификации проводили на термоциклере T professional TRIO system (Biometra, Германия) с использованием следующей программы циклирования: один первый этап денатурации 3 мин при 94°C, затем 35 циклов амплификации, каждый из которых состоял из 30 сек при 94°C, 50 сек при 55°C, 1 мин при 72°C. Заключительный этап элонгации проводили при 72°C в течение 10 мин.
2.3 Анализ последовательностей
Полосы ПЦР-ампликонов экстрагировали с использованием набора Qiagen Gel Extraction Kit и элюировали в 30 мкл H2O. Очищенные продукты подвергали методу секвенирования Сэнгера на автоматическом секвенаторе Genetic Analyzer (Applied Biosystems, США). Три ампликона, полученные из двух независимых экспериментов, были секвенированы для каждой рассматриваемой параретровирусной области. Последовательности, соответствующие как IGR, так и CP-MP, выравнивали и качественно проверяли с использованием алгоритма BLASTn, а затем дополнительно редактировали вручную с помощью программного обеспечения Chromas 2.6.6 (Technelysium Pty Ltd). Множественное выравнивание выполняли с использованием алгоритма Muscle, реализованного в программном обеспечении MEGA11 (Tamura и др., 2021).
Попарное сравнение нуклеотидных последовательностей рассчитывали и схематизировали с использованием Sequence Demarcation Tool (SDT) версии 1.2 (Muhire и др., 2014). Множественное выравнивание полученных последовательностей было выполнено (программное обеспечение MEGA11) для анализа с помощью программы DnaSP версии 6.0 (Rozas и др., 2017). Учитывались несколько параметров: общее число сегрегирующих сайтов (S), гаплотипическое разнообразие (Hd) (Nei и Tajima, 1983) и попарные оценки нуклеотидной дивергенции (π) (Jukes и Cantor, 1969). Гаплотипические отношения между всеми проанализированными образцами были преобразованы в сеть с использованием программного обеспечения Network версии 4.5.0.0 (Bandelt и др., 1999). Тест на нейтральность проводили для проверки гипотезы нейтральных мутаций с использованием среднего числа нуклеотидных различий (k) в рамках IGR и CP-MP и числа использованных сайтов сегрегации. Оценивались такие параметры, как тест Таджимы (Tajima, 1989), R2, индекс статистики шероховатости (r), тест Fs Фу и анализ несоответствий (MMA). Учитывая, что соединение CP и MP является кодирующей областью, был установлен смещение использования кодонов (программное обеспечение MEGA11).
2.4 Классификация по шкале засоления
На стадии четырех листьев генотипы Coeur de Boeuf (Cbf) или Sabra (Sb) пересаживали в отдельные пластиковые горшки, заполненные смесью торфа и песка. Режим солевого стресса включал применение раствора 50 мМ NaCl (6 дС/м) в первый день, затем увеличение до 100 мМ (12 дС/м) на второй день и, наконец, до 150 мМ (15 дС/м) на третий день. Мы использовали три биологических повтора, каждый из которых состоял из пула из 10 растений, расположенных случайным образом. Набор из трех растений каждого генотипа выращивали в несоленых условиях и поливали питательным раствором, что служило экспериментальным контролем (TC). Через три недели после обработки растения оценивали на солеустойчивость путем сравнения визуальных фенотипов генотипов, обработанных солью, с контрольными растениями, поливаемыми нормально. Растения оценивали и классифицировали согласно шкале засоления, установленной Chookhampaeng и др. (2007).
2.5 Сельскохозяйственные практики и схема полевого эксперимента
Схема культур была организована, как описано Slatni и др. (2024). Кратко: схема полевого эксперимента была организована в виде рандомизированного полноблочного размещения с тремя повторами и включала оба контрастных генотипа томата (Рисунок 1). В данной работе были рассмотрены две схемы выращивания: (i) томат в монокультуре (TMC) и (ii) томат, возделываемый вместе с галофитом Arthrocaulon macrostachyum L., с использованием подхода совместного выращивания (TIC). Растения томата, выращенные в хорошо поливаемых условиях (TC), считались контролем. Каждый экспериментальный участок состоял из одного ряда длиной 6 метров, содержащего 15 растений с расстоянием 40 см между особями. Саженцы томата, приобретенные в местном тунисском питомнике, были пересажены в середине марта вместе с растениями галофитов, полученными из питомника CBBC. Эксперимент проводился на полевом участке в районе Солиман на северо-востоке Туниса (N43°40’30.7”, E10°18’38.6”). После периода роста верхние листья растений тщательно собирали для обеспечения последующего анализа и получения данных.
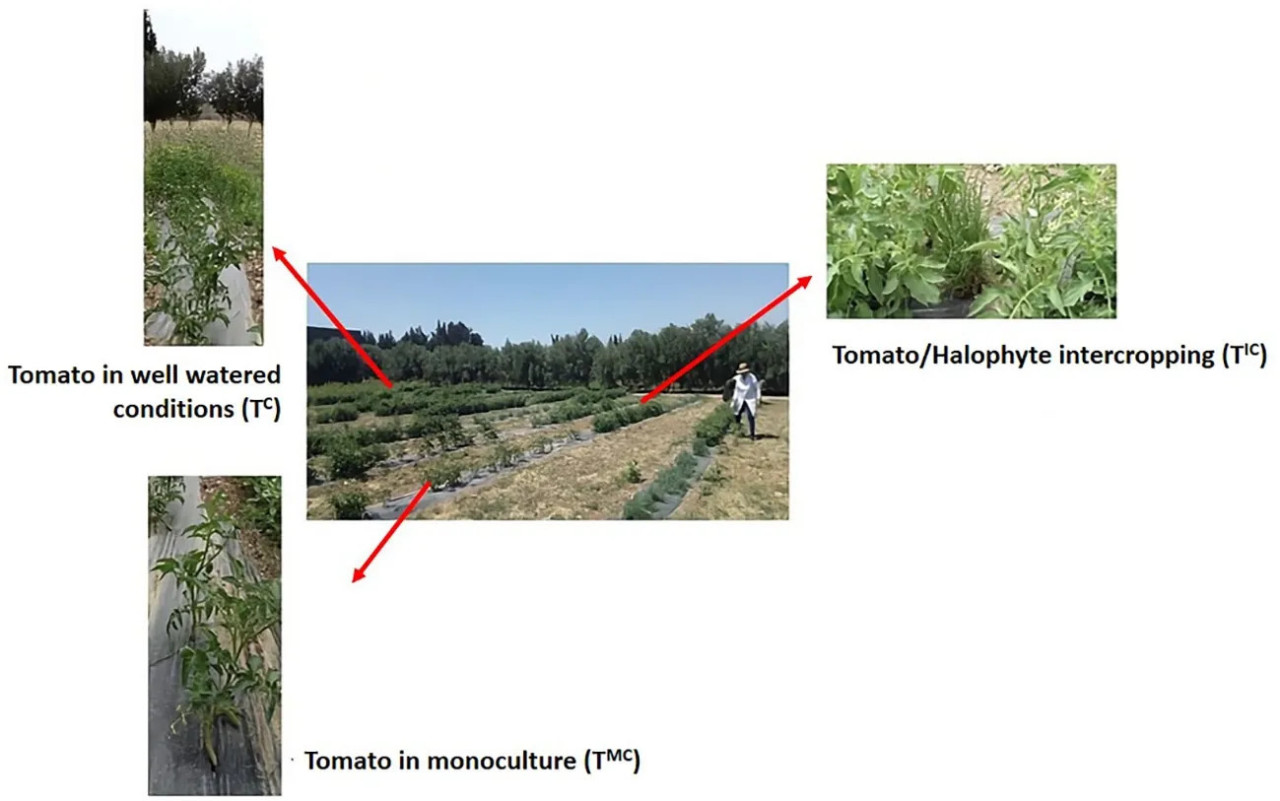
Рисунок 1 Схема полевого эксперимента, показывающая растения томата в монокультуре (TMC) и в совместном выращивании с галофитами (TIC) наряду с растениями томата в хорошо поливаемых условиях (TC).
2.6 Количественная оценка числа копий ЭПРВ
Количественную ПЦР (QPCR) проводили в системе ABI A Prism 7500 Sequence Detection System (Applied Biosystems, США) в следующих условиях: 10 мин при 95 °C, затем 40 циклов по 15 сек при 95 °C, 1 мин при 60 °C. Реакцию проводили с использованием Igreen qPCR master Mix-Rox (BIOMATIK, США). Для каждого образца проводили три технических повтора. Использовали праймеры IGR, а ген β-актина томата в качестве внутреннего референсного гена (Løvdal и Lillo, 2009). Число копий рассчитывали на основе метода 2-ΔΔCt (Livak и Schmittgen, 2001) с использованием программного обеспечения DataAssist™ v3.0 (Applied Biosystems, США). Результаты анализировали с помощью программного обеспечения GraphPad (версия 6.0, CA, США). Тепловую карту строили на основе евклидова расстояния с использованием программного обеспечения DataAssist™ v3.0 (Applied Biosystems, США). Среднее число копий представляет медиану полученных значений ΔCt.
2.7 Бисульфитная конверсия, клонирование и секвенирование
Свежие листья собирали через 30 дней после высадки рассады, и общую геномную ДНК выделяли с использованием набора для экстракции Analytik Jena. Проводили дополнительный этап, соответствующий обработке протеиназой K (20 мг/мл) (Scientific Thermofisher). 500 нг ДНК обрабатывали бисульфитом натрия (Martinez и др., 2014) с использованием набора Methylation Kit (Zymo, США). Модифицированную ДНК амплифицировали методом ПЦР с использованием праймеров IGR1/2 и Taq ДНК-полимеразы (MP Biomedicals, Европа). Ампликоны очищали из агарозного геля и клонировали с использованием векторной системы pGEM-TEasy (Promega). Для анализа секвенирования каждого сорта отбирали три клона. Секвенирование проводили на обеих цепях с помощью автоматического секвенатора ДНК ABI Prism DNA-377 (Applied Biosystems, Париж, Франция). Качество данных бисульфитного секвенирования оценивали с помощью BioEdit. Выравнивание последовательностей выполняли с помощью ClustalW в MEGA11. Выровненные файлы обрабатывали программным обеспечением Cymate для расчета среднего метилирования оснований цитозина в контексте симметричных CG и CHG и асимметричных CHH (где H = A, C или T).
3 Результаты
Мы исследовали присутствие и распределение последовательностей ЭПРВ в коллекции растительных геномов семейства пасленовых. Мы стремились оценить их генетическое разнообразие и обеспечить более полное понимание их динамического вклада в обеспечение способности растений томата противостоять солевому стрессу (Дополнительный рисунок S1).
3.1 Геномная идентификация и разнообразие ЭПРВ пасленовых
Исследование охватило двенадцать сортов, представляющих четыре преобладающих вида Solanaceae в Тунисе: томат (Solanum lycopersicum), перец (Capsicum annuum), баклажан (Solanum melongena) и табак (Nicotiana tabacum). Интеграцию ЭПРВ в геномы пасленовых оценивали посредством ПЦР-амплификации межгенной области IGR и соединения между капсидным и транспортным белками CP-MP. Продукты ПЦР-амплификации первоначально оценивали с помощью электрофореза в агарозном геле, который выявил четкие и однородные картины фрагментов размером 200 п.н. и 600 п.н. для областей IGR и соединения CP-MP соответственно (Дополнительный рисунок S2). Результаты указывают на присутствие всех ампликонов ожидаемых размеров, что подтверждает однозначное присутствие ЭПРВ во всех протестированных растениях-хозяевах. После очистки ампликонов и секвенирования по Сэнгеру полученные последовательности были исправлены и проверены с помощью программы Chromas. Затем эти последовательности были поданы в базы данных с использованием программы BLASTN для подтверждения их надежности и идентификации генетически наиболее близкого ЭПРВ.
Идентичность последовательностей варьировала от 88,8% до 98,7% у томата, от 98% до 100% у перца и около 98,7% у баклажана. Сравнение последовательностей IGR между разными видами растений показало очень высокую идентичность, с минимумом 80,9% между табаком и томатом и максимумом 100% между томатом и баклажаном, томатом и перцем и перцем и баклажаном. По сравнению с последовательностями, доступными в базах данных, ЭПРВ показал наибольшее сходство последовательностей с TVCV (вирус просветления жилок табака), американским изолятом, описанным у Nicotiana edwardsonii (AF190123) (Таблица 1).
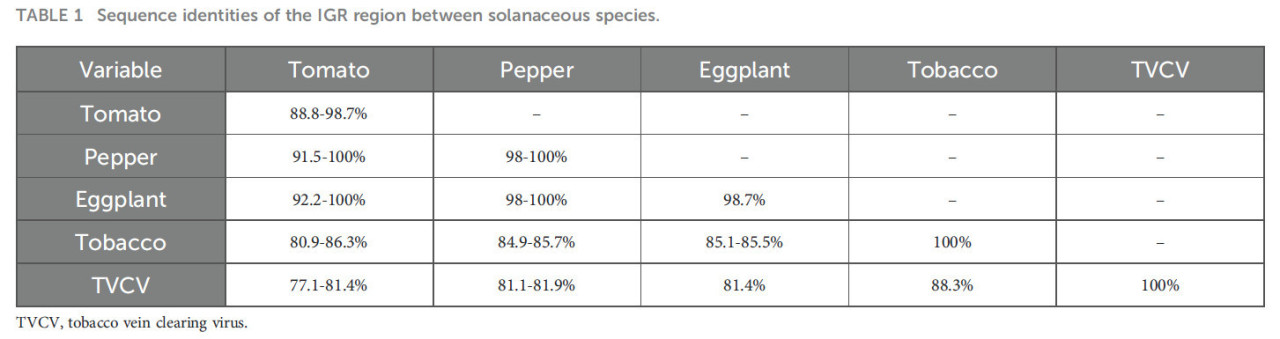
Таблица 1 Идентичность последовательностей области IGR между видами пасленовых.
Последовательности, амплифицированные с использованием пары праймеров CP/MP (600 п.н.), выявили внутривидовую идентичность последовательностей в диапазоне от 86,0% до 95,7% у томата и от 99,2% до 99,8%, со средним значением около 99,6%, у баклажана. Межвидовые сравнения показали минимальную идентичность 62,9% между табаком и томатом и максимальную 76,0% между баклажаном и перцем, что указывает на видеоспецифичную дивергенцию этой геномной области. Примечательно, что перец продемонстрировал наибольшую гомологию с вирусом просветления жилок табака (TVCV), тогда как томат показал наименьшую, с идентичностью последовательностей в диапазоне от 69,4% до 77,3% (Таблица 2). После этого последовательности IGR и CP-MP были выровнены и сравнены друг с другом с использованием программы SDT (Рисунок 2). Наши результаты указывают на то, что область IGR демонстрирует более высокую степень консервативности по сравнению с областью CP-MP среди протестированных сортов семейства Solanaceae.
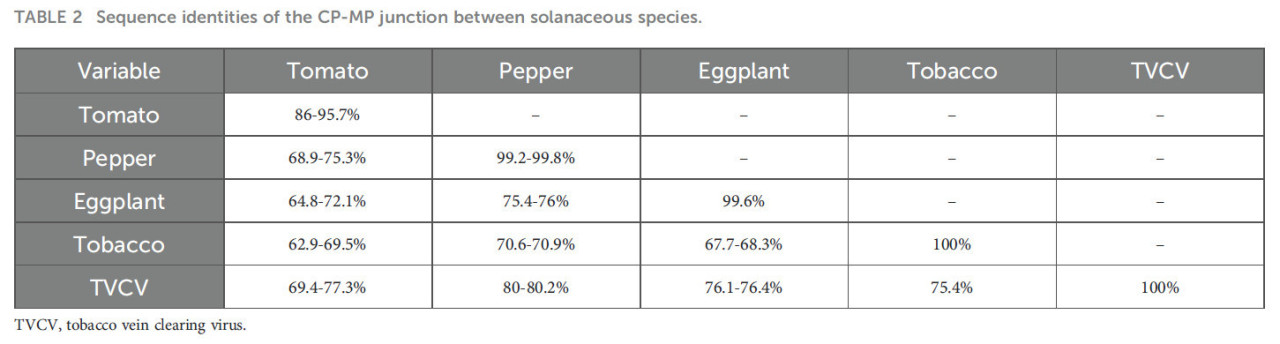
Таблица 2 Идентичность последовательностей соединения CP-MP между видами пасленовых.
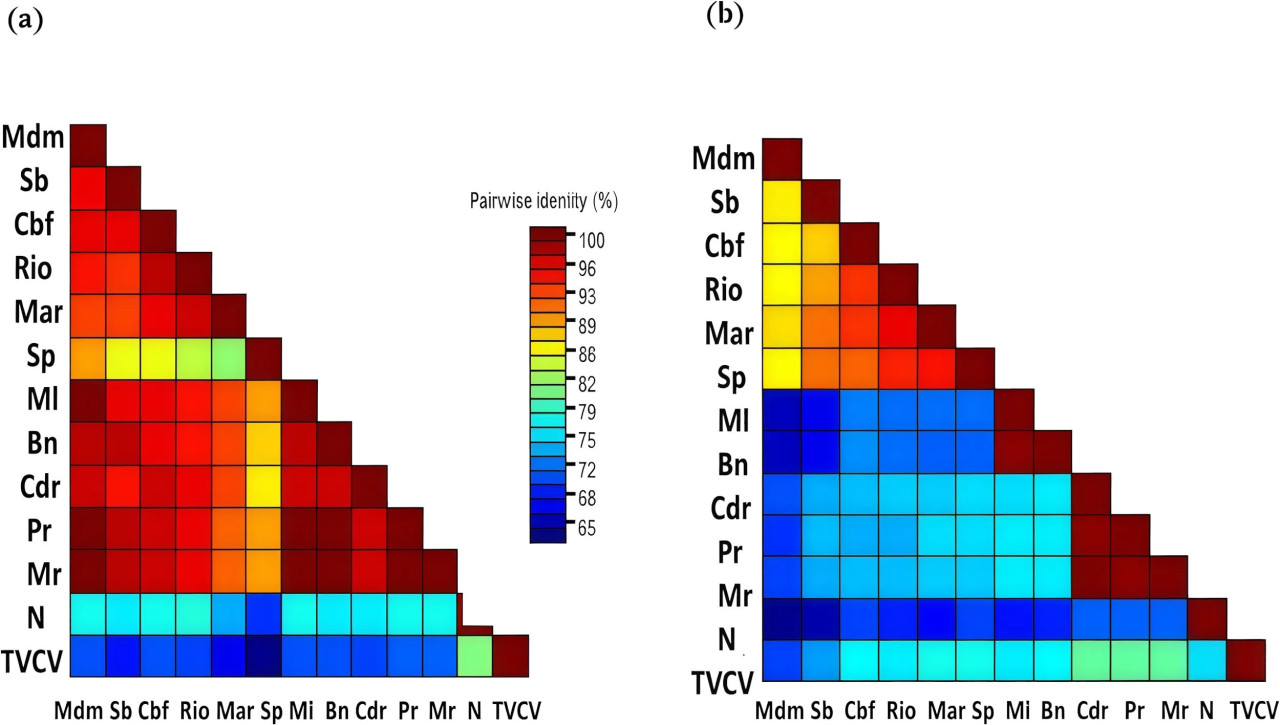
Рисунок 2 Попарная нуклеотидная идентичность, сгенерированная SDT на основе (A) межгенной области IGR и (B) соединения CP-MP. Томат: Coeur de boeuf (Cbf), Sabra (Sb), Saint-pierre (Sp), Marmade VR (Mar), Rio grande (Rio), Merveille des marchés (Mdm); перец: Marconi rosso (Mr), Corno di toro rosso (Cdr), Picante rosso (Pr); баклажан: Bellezza near (Bn), Mezza lunga violetta (Ml); табак: Xanthi (N) и TVCV (AF190123).
3.2 Гаплотипические сети
Эволюционный анализ с использованием метода гаплотипической сети был проведен для обеих областей: IGR и соединения CP-MP (Рисунок 3). Что касается области IGR, медианно-соединительная гаплотипическая сеть отобразила 10 гаплотипов (Рисунок 3A). Гаплотип H2 является единственным, включающим несколько последовательностей, охватывая четыре последовательности от разных хозяев, таких как перец (Pr и Mr) вместе с томатом (MdM) и баклажаном (Ml). Это предполагает, что мажорный гаплотип H2 может представлять общего предка. В противном случае H10 (табак) и H1 (TVCV) представляются наиболее дивергентными с длинными ветвями, указывающими на высокий мутационный шаг. Последовательности соединения CP-MP распределились в 13 гаплотипов (Рисунок 3B). Топология сети показала пять назначенных клад, зависящих от вида. Действительно, распределение показало, что гаплотипы распределены по группам на основе их растения-хозяина происхождения. Различные гаплотипические группы дивергируют друг от друга через многочисленные мутации. Таким образом, мутационные изменения driven видеоспецифичным отбором, а не накапливаются случайно.
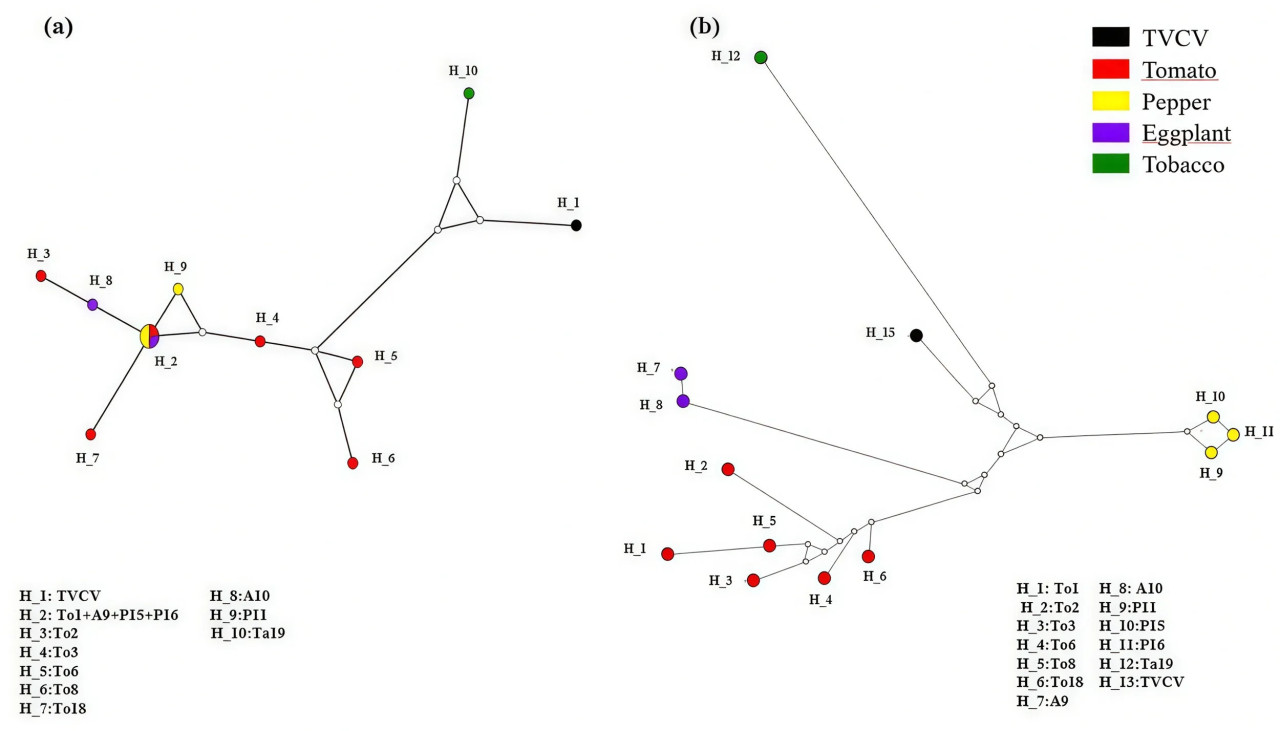
Рисунок 3 Сеть выведенных гаплотипов (A) области IGR и (B) соединения CP-MP. Размер узлов пропорционален частотам гаплотипов; размер ветвей пропорционален числу мутаций между гаплотипами; пустые кружки соответствуют мутациям. Гаплотипы соответствуют последовательностям в пределах томата: To1 (Mdm), To2 (Sb), To3 (Cbf), To6 (Rio), To8 (Mar), To18 (Sp); перец P11 (Cdr), P15 (Pr), P16 (Mr); баклажан: A9 (Ml), A10 (Bn), табак: Ta19 (N2).
3.3 Генетическое разнообразие
Параметры генетического разнообразия были оценены среди общих последовательностей как IGR, так и CP-MP от вовлеченных видов Solanaceae (Таблица 3). Тесты на нейтральность для обеих областей, межгенной CP-MP и IGR, показали общее число 585 и 159 сайтов соответственно, среди которых 262 и 34 соответствовали сайтам сегрегации соответственно. Исторические демографические паттерны были исследованы двумя различными подходами, включая тест R2, тест Fs Фу (1997) и тест D Таджимы (1989). Это генетическое разнообразие подтверждается положительными значениями индексов нейтральности R2 (0,186 и 0,164), Fs (0,231 и 0,005) и r (0,031 и 0,150) и отрицательными значениями Tajima D (- 0,299 и - 1,183) для CP-MP и IGR соответственно. Среднее число нуклеотидных различий k, равное 109,167 (CP-MP) и 7,500 (IGR), свидетельствует в пользу мультимодальных распределений несоответствий попарных нуклеотидов (Рисунок 4).
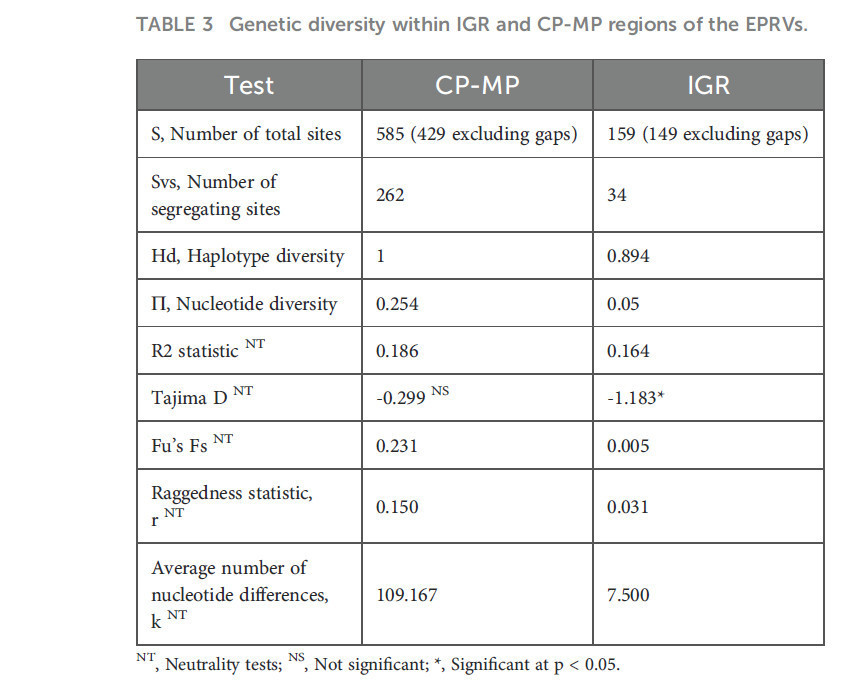
Таблица 3 Генетическое разнообразие в областях IGR и CP-MP ЭПРВ.
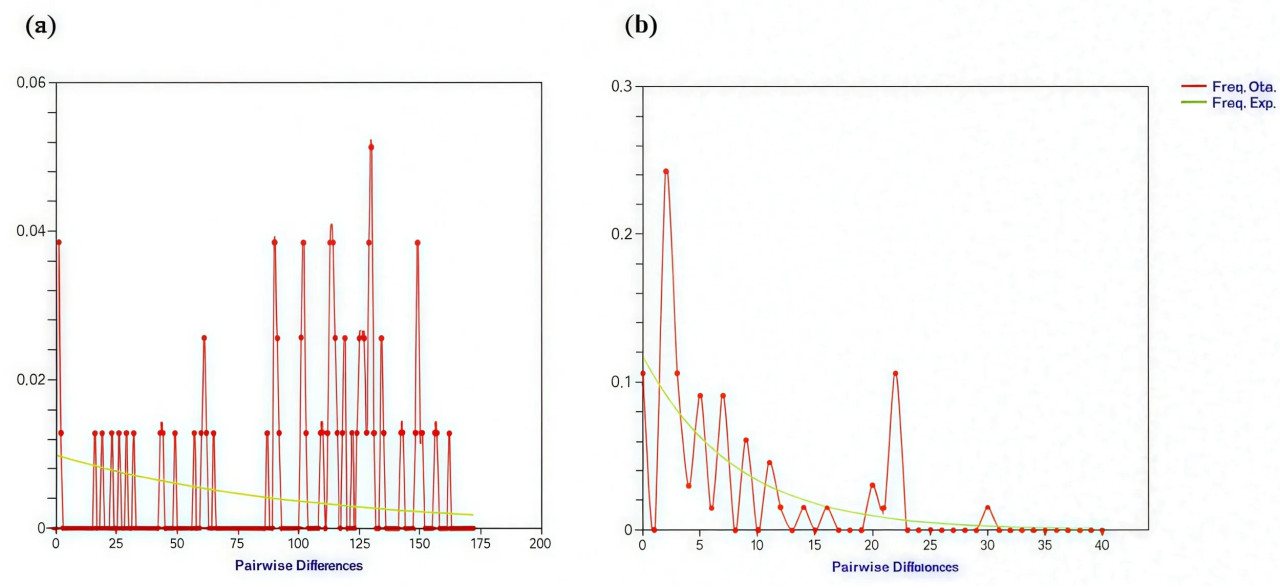
Рисунок 4 Анализ несоответствий (MMA) попарных нуклеотидов в (A) области CP-MP и (B) области IGR. Сплошная линия: наблюдаемые попарные различия. Пунктирная линия: ожидаемые результаты попарных различий. Числа нуклеотидных различий между всеми парами последовательностей указаны по оси x, а частота пар указана по оси y.
В пределах обеих областей распределение несоответствий отобразило мультимодальные паттерны, указывающие на то, что последовательности претерпели стабильный размер популяции и подразделение в течение длительных периодов. При построении частотного распределения нуклеотидных различий между возможными парами последовательностей наблюдается несколько пиков с большим числом в области CP-MP, несмотря на наличие одного мажорного пика. Предполагая, что область IGR склонна проявлять более вероятное бимодальное распределение, возникает более низкий уровень генетической дивергенции по сравнению с CP-MP.
При исследовании последовательностей аминокислот (AAs) в области CP-MP анализ выявил наличие нескольких стоп-кодонов (Дополнительная таблица S1). Кроме того, были рассчитаны и представлены смещение использования кодонов для всех AAs и кодонов. Частоты стоп-кодонов, включая UAG, UGA и UAA, оказались равными 0,76, 1,25 и 0,99 соответственно, с использованием кодонов 3,7, 6 и 4,8. Наиболее часто используемым кодоном был AGA с использованием кодона 4,05, тогда как UCG, GGC и GGG не были представлены в анализе.
3.4 Динамика ЭПРВ томата в зависимости от практик земледелия
Реакции растений томата на солевой стресс были исследованы путем скрининга числа копий ЭПРВ, встроенных в их геном, и изучения статуса метилирования параретровирусного фрагмента в пределах области IGR. С этой целью мы исследовали активные изменения у двух контрастных по солеустойчивости генотипов при двух различных практиках земледелия: (i) томат в монокультуре (TMC) и (ii) томат в совместном выращивании с галофитами (TIC). Мы стремились понять влияние этих систем управления на устойчивость и адаптацию растений томата к солевому стрессу с особым акцентом на динамику ЭПРВ.
3.5 Различение контрастных солевосприимчивых генотипов томата
Режим засоления негативно повлиял на растения томата в теплице, и различия между фенотипами стали более выраженными через три недели после наложения солевого стресса. Скрининг визуальных симптомов оценивали согласно шкале восприимчивости к засолению на основе системы оценок (Chookhampaeng и др., 2007). Хотя ни один генотип не был адаптирован к солевому стрессу, был проведён тщательный процесс скрининга для категоризации всех протестированных сортов на категории умеренно солеустойчивых и солечувствительных. Генотип Cbf продемонстрировал пожелтение и слегка скрученные листья и поэтому был отнесён к классу умеренно толерантных, тогда как генотип Sabra считался чувствительным из-за сильного увядания и медленного роста.
Выбранные генотипы Cbf и Sabra культивировали с использованием наружной стратегии фитообессоливания, нового и рентабельного биологического подхода, разработанного для смягчения засоления почв. Помимо монокультуры (TMC), стратегия включает совместное выращивание (TIC), которое представляет собой практику одновременного выращивания томата и галофитных культур, так что они сосуществуют и взаимодействуют друг с другом и с окружающими агроэкосистемами. Эти практики земледелия были осуществлены в поле в условиях режима солевого стресса (5 г/л). При визуальном скрининге засоление неблагоприятно повлияло на фенотипы обоих сортов, замедляя их рост и развитие. Тщательное обследование поля показало, что растения томата (TIC) продемонстрировали заметное восстановление, независимо от рассматриваемого сорта. Между тем, сорт Cbf продемонстрировал лучшее восстановление по сравнению с сортом Sabra.
3.6 Вариации числа копий ЭПРВ
Метод QPCR, нацеленный на область IGR, использовали для точной оценки числа копий ЭПРВ в геномах обоих контрастных генотипов. Этот подход на основе ДНК предоставляет число интегрированных элементов на геном независимо от их транскрипционного статуса. Результаты показали, что обилие ЭПРВ колеблется в зависимости от стратегии выращивания (Рисунок 5).
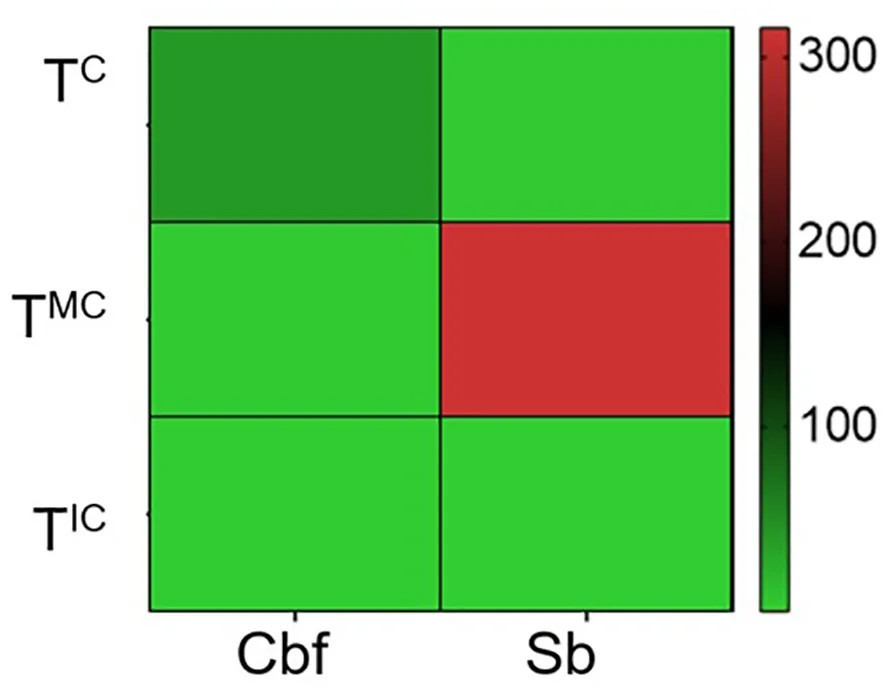
Рисунок 5 Статус числа копий ЭПРВ у обоих солеустойчивого (Cbf) и чувствительного (Sb) генотипов. Кластеризация (средняя связь, евклидово расстояние) была применена для группировки ЭПРВ с аналогичными уровнями. Интенсивность цвета указывает на уровень обилия с цветовой шкалой от красного (высокий) до зеленого (низкий). TC, томат в хорошо поливаемых условиях (контроль); TMC, томат в монокультуре; TIC, томат в совместном выращивании с галофитами, в условиях солевого стресса.
Результаты показали, что при стратегии TMC солевой стресс значительно увеличил накопление ЭПРВ в геноме солечувствительного генотипа Sabra, тогда как управление TIC имело тенденцию снижать этот уровень. Что касается солеустойчивого генотипа Cbf, он не следует аналогичной схеме. Стратегия TMC не оказала значительного влияния на обилие ЭПРВ, тогда как слегка сниженное обилие при стратегии TIC не было статистически значимым.
3.7 Динамические изменения метилирования в области IGR
Чтобы исследовать, связано ли дифференциальное реагирование на солевой стресс с изменением метилирования цитозина (mCs), мы сосредоточились на паттернах метилирования ДНК области IG у обоих контрастных генотипов. Поэтому ДНК растений томата из TMC и TIC была экстрагирована, обработана бисульфитом перед ПЦР-амплификацией, клонированием и секвенированием. Анализ множественных выравниваний клонированных последовательностей сравнивали с таковыми, полученными из TC, и результаты подтвердили, что IGR соответствует дифференциально метилированной области (DMR). Оценена вариация паттернов метилирования цитозина в пределах области IGR (Рисунок 6). Общее число цитозинов составило 23 у генотипа Cbf и 26 у генотипа Sabra, распределенных в контексте симметричных CGH и CHG и асимметричных CHH (где H = A, C или T) островков. Результаты бисульфитного секвенирования показали, что статус метилирования сайтов CGH оставался неизменным независимо от генотипа или экспериментальных практик выращивания растений. Однако были обнаружены значительные различия в сайтах CHG и CHH, которые оказались существенно метилированными.
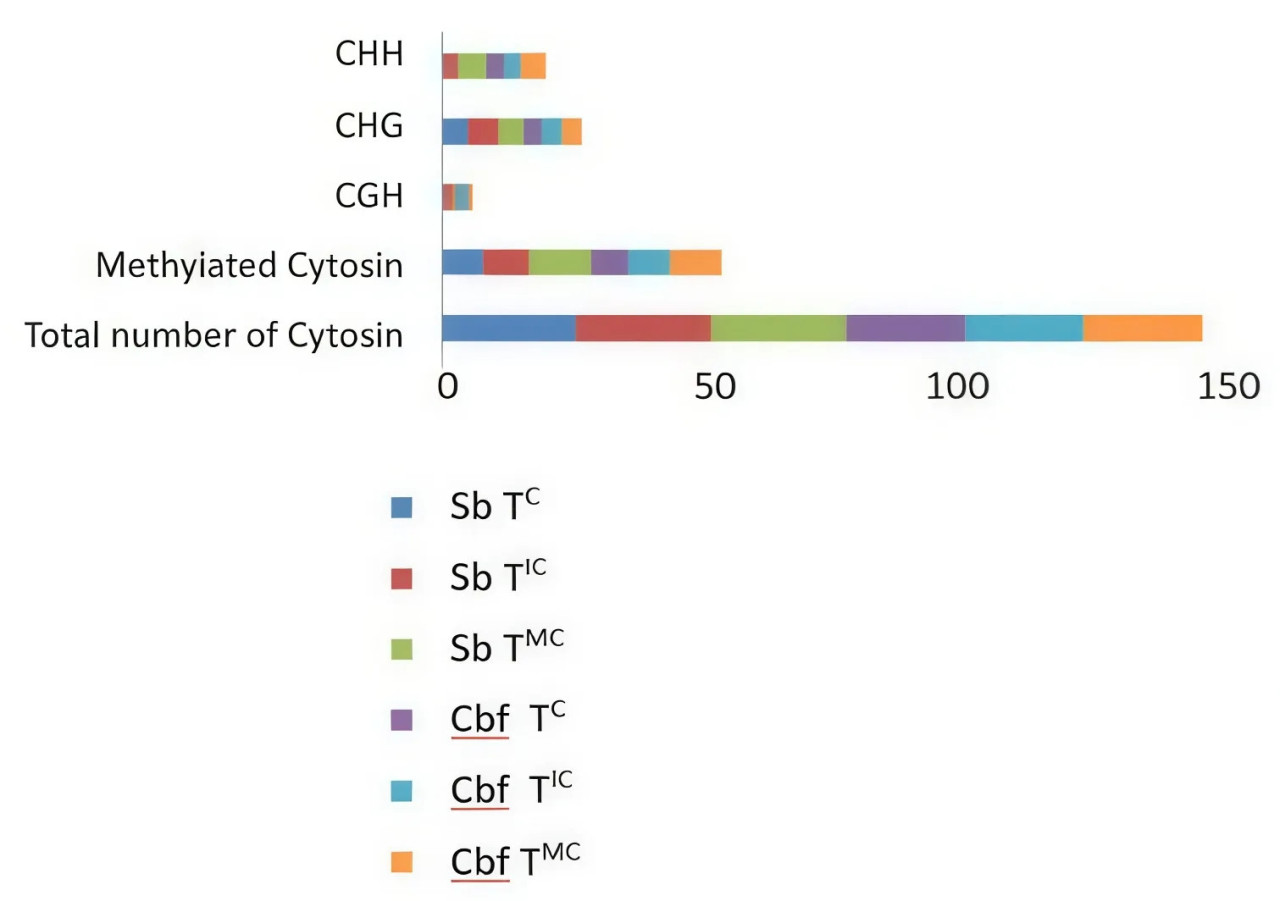
Рисунок 6 Сгруппированная гистограмма, иллюстрирующая вариацию паттернов метилирования цитозина в пределах области IGR. TC, томат в хорошо поливаемых условиях (контроль); TMC, томат в монокультуре; TIC, томат в совместном выращивании с галофитами в условиях солевого стресса.
Необработанный сорт Cbf продемонстрировал средний процент mCs 30,43%, тогда как стратегии TMC и TIC повысили уровни метилирования цитозина до 43,47% и 33% соответственно. Фактически, при солевой обработке сорта TMC показали повышенные уровни метилирования CHG (33,3%) и CHH (66,6%). Между тем, TIC поддерживал уровень метилирования CHH, увеличивая CHG на 22,22%. Необработанный сорт Sabra следовал той же тенденции, что и Cbf, со средним процентом mCs 30,76%, тогда как TMC и TIC показали уровни mCs 47,43% и 32,05% соответственно. При солевой обработке наблюдались заметные изменения в распределении метилированных CHG и CHH по сравнению с контролем. Таким образом, сорта TMC увеличили уровни метилирования CHG (20%) и CHH (166,6%). Кроме того, TIC поддерживал уровень метилирования CHG, слегка увеличивая метилирование CHH на 16,66%.
Для каждого генотипа, рассматриваемого отдельно, стратегия TMC влияет на метилирование CHG и CHH, тогда как TIC стремится восстановить статус метилирования CHH до уровня контроля по сравнению с TMC.
4 Обсуждение
4.1 Паттерны разнообразия ЭПРВ в семействе Solanaceae
ЭПРВ широко интегрированы в растительные геномы, где их переменное накопление или элиминация у разных хозяев влияет на архитектуру генома (Richert-Pöggeler и др., 2021). Хотя их разнообразие исследовалось, предыдущие анализы были ограничены доступными данными (Sahebi и др., 2018). Недавнее существенное расширение секвенированных растительных геномов позволило провести комплексный скрининг ЭПРВ и обеспечило более широкое понимание того, как эти эндогенные элементы распределены по растительным геномам. Исследования на сегодняшний день предполагают, что ЭПРВ abundant в различных членах семейства Solanaceae и могли происходить от разных родов (Staginnus и др., 2007). В этом исследовании мы достигли молекулярной идентификации ЭПРВ в пределах семейства Solanaceae, включая сорта томата, перца, баклажана и табака. Для дальнейшей характеристики этих элементов были сгенерированы и секвенированы ПЦР-ампликоны, соответствующие кодирующему соединению CP-MP и некодирующей IGR. Комплексный анализ последовательностей ЭПРВ от различных растений-хозяев выявил высокую степень консервативности в пределах IGR у всех протестированных видов. Это наблюдение согласуется с предыдущими исследованиями, сообщающими о консервативности IGR у томата, табака и картофеля (Staginnus и др., 2007). Нуклеотидная идентичность среди изолятов зарегистрирована на минимуме 80,9%, что заметно превышает порог 80%, обычно используемый для разграничения видов (Guimarães и др., 2015). Попарные сравнения IGR выявили более 80% нуклеотидной идентичности между проанализированными последовательностями и изолятом TVCV. Эти результаты дополнительно поддерживают классификацию тунисских изолятов в пределах Solendovirus семейства Caulimoviridae.
Анализ идентичности последовательностей соединения CP-MP выявил сильную консервативность в пределах отдельных видов растений-хозяев. Напротив, межвидовые сравнения нуклеотидных последовательностей дали значения идентичности, не превышающие 80,2%, порог, близкий к критерию 80%, используемому для определения отдельных параретровирусных видов (Geering и Hull, 2012; Guimarães и др., 2015).
Высокая скорость полиморфизма, наблюдаемая в соединении CP-MP по сравнению с областью IGR, предполагает, что сегмент CP-MP проявляет большую генетическую вариабельность, потенциально driven слабым очищающим отбором или повышенными локальными скоростями мутаций.
Область CP-MP, потенциально вовлеченная в функциональную регуляцию (Almeyda и др., 2014), по-видимому, допускает высокие вариации последовательностей без ущерба для геномной целостности. Выраженная вариабельность, наблюдаемая в этом сегменте, может отражать адаптивный потенциал, возможно, повышающий эффективную пластичность и динамику хозяина-ЭПРВ. Напротив, канонические IGR часто содержат регуляторные элементы, необходимые для экспрессии генов, что приводит к более сильной эволюционной консервативности из-за функциональных ограничений (Staginnus и др., 2007). Применение структурированной коалесцентной структуры для моделирования очищающего отбора выявило, что слабые давления отбора могут приводить к повышенным уровням полиморфизма в определенных геномных областях по сравнению с другими (Strütt и др., 2025). ЭПРВ в геномах земляники были проанализированы с использованием поиска гомологичных последовательностей и подходов выравнивания геномов, выявив широкий спектр вариабельности (Wang и др., 2024). Сравнительный анализ между видами Fragaria и близкородственными родами растений подчеркнул родоспецифичные различия в составе вирусоподобных последовательностей наряду с консервативными элементами, общими для родственных родов.
Наличие стоп-кодонов в кодирующей области CP-MP ЭПРВ представляется согласующимся с геномной фрагментацией на множественные рамки считывания, впоследствии модифицированные событиями делеции. Это наблюдение согласуется с результатами Staginnus и др. (2007), которые сообщили, что только один клон томата сохранил полную последовательность CP, демонстрируя 65%-94% идентичности с фрагментами CP от других клонов. Такие структуры обычно представлены среди Eucalyptus grandis, где домен Gag, кодирующий структурный белок, необходимый для сборки и созревания параретровируса, делегирован (Marcon и др., 2017). В геноме риса определённые эндогенные элементы, подобные вирусу бациллиформной формы tungro риса (eRTBVLs), имеют межгенную область (IGR), которая представляется более обильной, чем другие кодирующие сегменты (Chen и др., 2014). Кроме того, эндогенные элементы, подобные PVCV (ePVCVs), идентифицированные у риса, содержат домены MP, PR и RT/RH, но лишены домена CP (Chen и др., 2017). В семействе Solanaceae, включая виды Nicotiana, клонированные белок-кодирующие области либо усечены, либо содержат множественные сдвиги рамки считывания и стоп-кодоны, что делает их трансляционно дефектными. Это явление также наблюдалось у ЭПРВ Nicotiana (Teycheney и Geering, 2011; Staginnus и др., 2007). Кроме того, перестроенные и иммунокомпетентные хромосомные области, служащие наследуемыми транс-действующими маркерами прошлых инфекций, способствуют персистенции латентных ЭПРВ (Valli и др., 2023).
4.2 Прослеживание молекулярной эволюции ЭПРВ
Топология выведенных гаплотипических сетей в сочетании с анализом нейтральной эволюции поддерживает гипотезу мозаичной эволюции генома ЭПРВ, указывая на то, что области IG и CP-MP эволюционируют под разными селективными режимами. Тесты на нейтральность работают в различных возможных условиях, в первую очередь определяемых временем и интенсивностью отбора. Они обнаруживают селективные события только в ограниченном диапазоне параметров, поэтому наблюдаемые sweeps представляют лишь часть тех, которые фактически произошли. Например, Tajima D особенно эффективен для выявления адаптаций и отбора в более широком диапазоне параметров (Tanaka и др., 2023). Области IGR часто содержат регуляторные элементы (промоторы, энхансеры, вторичные структуры РНК), которые функционально ограничены. В гаплотипической сети, выведенной из последовательностей IGR, отсутствие видеоспецифичной кластеризации предполагает, что эти последовательности могут находиться под аналогичными селективными давлениями у разных растений-хозяев, поддерживая свою функцию независимо от среды хозяина. Этот паттерн свидетельствует в пользу очищающего отбора, действующего на функциональные элементы для удаления вредных вариантов, создавая избыток редких мутаций и поддерживая функциональную консервативность у разных растений-хозяев. Расширение популяции, вероятно, происходит без видеоспецифичной специализации хозяина. В отличие от области IGR, соединение CP-MP продемонстрировало гаплотипический паттерн, который предполагает более сильную видеоспецифичную адаптивную эволюцию. Это свидетельствует о том, что область CP-MP подвергается положительному отбору для адаптаций к разным хозяевам, и указывает на то, что полезные мутации, повышающие приспособленность у конкретных хозяев, быстро увеличивают частоту в популяциях. Кроме того, такой профиль диверсификации, обусловленной хозяином, может предполагать, что различные селективные давления, действующие на каждого хозяина, определяют эволюцию изолятов ЭПРВ, адаптированных к этим хозяевам. Эти результаты иллюстрируют, как разные геномные области ЭПРВ могут проявлять различные эволюционные паттерны в зависимости от их ролей в процессах адаптации хозяина. Подобные различия между кодирующими и некодирующими областями распространены у вирусов (Nekoduka и др., 2015).
Распределение попарных различий между парами последовательностей имеет фундаментальное значение для понимания молекулярных эволюционных процессов (Mousset и др., 2004). Действительно, анализ несоответствий последовательностей (MMA) в настоящее время оценивается для реконструкции исторической демографии (Grant, 2015). MMA вирусных последовательностей может демонстрировать либо унимодальные, либо бимодальные паттерны, каждый из которых указывает на различные эволюционные и демографические сценарии (Husev и Rovenchak, 2021).
В этом исследовании бимодальное распределение в области IG предполагает, что эта область испытала меньше регуляторных узких мест с последующими отдельными циклами расширения, несмотря на смешанный паттерн хозяев. Эти два отдельных демографических события, вероятно, представляют две основные фазы популяции, описывающие историю колонизации хозяина с крупной начальной колонизацией, за которой следует вторичное расширение и переходы на новых хозяев для колонизации новых видов растений. Напротив, область CP-MP продемонстрировала изрезанное мультимодальное распределение несоответствий, предполагающее сложную адаптивную историю, характеризующуюся множественными раундами событий видеоспецифичной адаптации. Эти события сопровождаются повторяющимся положительным отбором, который включает несколько волн полезных и видеоспецифичных мутаций.
При демографическом равновесии накопление значительных дивергенций среди линий обычно приводит к изрезанному, мультимодальному распределению несоответствий (Grant, 2015). Напротив, недавнее расширение популяции часто выводится из гладкого, унимодального распределения. Однако важно отметить, что статистические тесты, предназначенные для оценки изрезанности этих распределений, как правило, имеют ограниченную чувствительность (Ramos-Onsins и Rozas, 2002). Область IG с наименьшим значением теста изрезанности поддерживает бимодальный паттерн, представляющий, тогда как изрезанность CP-MP согласуется с мультимодальным паттерном, указывающим на более сложную, нерегулярную демографическую историю с множественными перекрывающимися событиями. Основываясь на наших результатах, мы подчёркиваем важность IGR как ключевого геномного элемента для понимания роли ЭПРВ в динамике генома томата под воздействием стресса окружающей среды. Следовательно, мы выбрали эту область для дальнейшего молекулярного исследования реакции генотипов томата на солевой стресс.
4.3 Стратегии управления в контексте засоления
Предыдущие исследования рассматривали неблагоприятные эффекты солевого стресса на генотипы томата, в настоящее время культивируемые в Тунисе (Gharsallah и др., 2016). Различение этих генотипов имеет ключевое значение для предотвращения близкого генетического родства среди родительских линий и для обеспечения эффективного отбора в расщепляющихся популяциях. Для этой цели фенотипическая характеристика солевой реакции является ключевой. Соответственно, мы выбрали два сорта томата, широко культивируемых тунисскими фермерами из-за их ценных агрономических признаков и сообщаемой контрастной чувствительности к засолению. В качестве первого шага скрининг солеустойчивости проводили в контролируемых условиях — широко признанном, эффективном и рентабельном подходе для оценки фенотипических реакций на абиотический стресс (Singh и др., 2016). Обработанные солью генотипы томата продемонстрировали переменные реакции на солевой стресс и были классифицированы согласно визуальным симптомам. Увядание листьев, преимущественно поражающее более старые листья, служило основным критерием для группировки генотипов с использованием предварительно установленной шкалы от 1 до 4 (Chookhampaeng и др., 2007). На основе визуального скрининга и тщательной оценки симптомов генотип Cbf был отнесён к классу умеренно солеустойчивых 2, тогда как генотип Sabra был кластеризован в солечувствительный класс 3. Учитывая различную чувствительность к солевому стрессу, мы ранее категоризировали 60% местных генотипов томата в чувствительные классы с использованием шкалы либо Dasgan, либо Chookhampaeng (Gharsallah и др., 2016). Поскольку эти генотипы продемонстрировали разнообразные реакции на солевой стресс, причём большинство попало в чувствительные кластеры, ожидается, что засоление значительно ограничит урожайность томата в Тунисе.
На следующем этапе мы перешли от тепличных испытаний к полевым экспериментам с использованием двух контрастных по солеустойчивости генотипов томата с различной восприимчивостью к солевому стрессу, намереваясь культивировать их в рамках инновационных агрономических практик. Одной из практик земледелия является стратегия совместного выращивания, вовлекающая растения томата с видами галофитов. Несмотря на различающиеся результаты, сообщаемые в разных исследованиях, постулируется, что эта стратегия может ослаблять восприимчивость растения томата к солевому стрессу (Jurado и др., 2024). В настоящем исследовании мы реализовали две различные стратегии земледелия наряду с контрольной обработкой (TC). Первая включала растения, выращенные при солевой обработке (TMC), тогда как вторая соответствовала системе совместного выращивания, где томаты выращивались последовательно с видами галофитных культур (TIC). Близость к галофитам, по-видимому, смягчает неблагоприятные эффекты солевого стресса на рост и поддержание томата, поскольку оба генотипа продемонстрировали способность к восстановлению за трехмесячный период культивирования. Генотип Cbf был тем, который показал лучшее развитие и, казалось, эффективно выдерживал солевой стресс. Недавно были реализованы две стратегии выращивания томата, соответствующие совместному выращиванию с галофитами на умеренно засоленных почвах и последовательному выращиванию, где томаты следовали за культивированием галофитов (Jurado и др., 2024). Обе стратегии привели к снижению засоления почвы благодаря способности видов галофитов накапливать соль в своих тканях (Liang и Shi, 2021; Nanhapo и др., 2017; Wang и др., 2022). Сниженные уровни соли в ризосфере культур при культивировании галофитов привели бы к лучшей адаптации солечувствительных растений к этим экстремальным средам, позволяя их культивирование на маргинальных, недоиспользуемых землях или на засоленных сельскохозяйственных почвах (García-Caparros и др., 2020).
Учитывая эти сообщения, наша стратегия TIC, позволяющая генотипам томата восстанавливаться от неблагоприятных эффектов засоления, представляет собой рентабельную и эффективную стратегию для содействия производству на засоленных территориях. Использование систем совместного выращивания в сельском хозяйстве является традиционной практикой, распространенной по всему миру в течение длительного времени, основанной на доказательствах взаимных выгод и увеличения урожайности по сравнению с монокультурой в системе с низкими затратами (Glaze-Corcoran и др., 2020; Maitra и др., 2021).
4.4 Динамика ЭПРВ формируется практиками земледелия
Количественная оценка ЭПРВ на основе области IGR показала, что солевой стресс повлиял на число копий только у солечувствительного генотипа. Напротив, засоление не повлияло на солеустойчивый генотип, независимо от принятой стратегии земледелия. Стресс окружающей среды всё больше признаётся ключевым регулятором динамики транспозонов у растений, поскольку многие TEs могут становиться транскрипционно или транспозиционно активными в ответ на абиотические стимулы. Полногеномные исследования идентифицировали стресс-чувствительные ретротранспозоны у разнообразных видов, включая Helianthus annuus (Mascagni и др., 2020), Populus (Vangelisti и др., 2019) и различные хвойные (Voronova и др., 2014; Fox и др., 2018). Стресс также активирует транспозоны в тканевой культуре и межвидовых гибридах, подчёркивая их чувствительность как к стимулам окружающей среды, так и к искусственным стимулам (Negi и др., 2016). Эти элементы способствуют адаптивной пластичности в условиях колеблющихся параметров окружающей среды (Ito и др., 2022). У пшеницы было показано, что солевой стресс увеличивает как число копий, так и частоту геномной вставки ретротранспозонов (Dilmen и др., 2023).
При противодействии стрессу окружающей среды геномная нестабильность может запускать транскрипцию ЭПРВ с последующей обратной транскрипцией и интеграцией в геном. Действительно, стрессоры окружающей среды могут запускать активацию TEs, которые, будучи мобилизованными, могут влиять на регуляцию экспрессии генов в геноме хозяина (Ito и др., 2022). Эти результаты предполагают, что ЭПРВ действуют как стресс-чувствительные элементы, потенциально способствуя адаптации или отражая побочную активацию под давлением окружающей среды. Стресс-специфичные ассоциации между TEs и близлежащими генами были выявлены у Arabidopsis и томата (Deneweth и др., 2022). После активации эти TEs были преимущественно интронными и преимущественно локализовались вблизи генов с повышенной экспрессией, с новыми и известными регуляторными мотивами, предполагающими их участие в регуляции стресса. Этот межвидовой анализ выявил, что регуляция генов, обусловленная TE, обеспечивает адаптацию к изменениям окружающей среды. Рисовый TE mPing был первым идентифицированным с активной мобильностью у растений, демонстрируя высокую транспозицию у сорта ‘Ginbouzu’ (Nakazaki и др., 2003). Хотя большинство японских сортов, таких как ‘Nipponbare’, содержат ~50 копий, ‘Ginbouzu’ содержит более 1000 из-за активного перемещения. mPing вставляется преимущественно вблизи генов, особенно в промоторных областях, где он может усиливать чувствительность к холоду и солевому стрессу (Naito и др., 2009). Интеграция миниатюрного инвертированного повторного транспозируемого элемента (MITE) в регуляторную область гена транскрипционного фактора ZmNAC111 была связана с естественными различиями в устойчивости к засухе среди сортов кукурузы (Mao и др., 2015). Открытие этой вставки TE проливает свет на молекулярные механизмы, лежащие в основе естественно возникающей вариации толерантности к засухе в популяциях кукурузы. Эндогенный вирус полосатости банана eBSV имеет несколько вставок по десяти хромосомам у Musa acuminata, все из которых были высокорекомбинантными и фрагментированными, что делает их неспособными продуцировать инфекционные вирусы (Chabannes и др., 2021; Chen и др., 2024). Дополнительная работа по геномам баклажана обнаружила четыре различных эндогенных вирусных генома наряду с различными ЭПРВ, подчеркивая сложность интеграции вирусных генов у разных видов (Valli и др., 2023).
Присутствие и распределение ЭПРВ в геномах хозяев находятся под влиянием исторических событий вирусной интеграции, а также последующих процессов, которые могут либо амплифицировать, либо сокращать эти интегрированные последовательности с течением времени. Следовательно, ЭПРВ могут либо оставаться в своих исходных местах вставки, либо перемещаться в другие геномные области. Эти перемещения демонстрируют различные предпочтения сайтов при определённых условиях, тогда как в других случаях они интегрируются случайным образом без специфического выбора сайта (Richert-Pöggeler и др., 2021). Для регуляции ЭПРВ растительные геномы часто инактивируют их копии посредством деградации последовательностей, перестройки или фрагментации, предотвращая эффективную транскрипцию полноразмерных вирусных геномов. Когда эти эндогенные параретровирусные последовательности содержат инвертированные повторы, они продуцируют структуры шпилечной РНК, которые активируют механизм РНК-сайленсинга растения и продукцию малых интерферирующих РНК (Valli и др., 2023). Этот процесс по существу демонстрирует, как растения используют интегрированные вирусные элементы для потенциального предотвращения активации dormant растительных ЭПРВ и родственных параретровирусов.
Другим распространенным механизмом является эпигенетический сайленсинг, который включает метилирование и действие малых РНК (sRNAs) (Staginnus и др., 2007; Schmidt и др., 2021; Noreen и др., 2007). Кроме того, гетерохроматин, который обычно транскрипционно неактивен и характеризуется низкими скоростями рекомбинации, служит защитной средой для ЭПРВ (Kent и др., 2017).Более того, паттерны и уровни метилирования цитозина значительно различаются у разных видов растений, находясь под влиянием размера генома и присутствия TEs (Malinowska и др., 2020). Подтверждая это наблюдение, Cheng и др. (2024) сообщили, что области повышенного полиморфизма часто колокализуются с CpG-богатыми доменами, подвергающимися эпигенетическому ремоделированию, предполагая, что динамические паттерны метилирования ДНК могут играть ключевую роль в влиянии на эволюционную траекторию вирусных последовательностей.
Эпигенетический статус IGR ЭПРВ оценивали путем профилирования паттернов метилирования цитозина в симметричных (CG, CHG) и асимметричных (CHH) контекстах у обоих контрастных по солеустойчивости генотипов томата. Было обнаружено, что наложение солевого стресса в контексте монокультуры изменяет динамический статус метилирования области IGR у солечувствительного генотипа. Это способствовало гиперметилированию цитозина главным образом в мотивах CHH и CHG, обеспечивая связь между эпигенетической регуляцией ЭПРВ и реакцией растения на солевой стресс. Это согласуется с результатами по другим культурам, где гиперметилирование было связано со сниженной стрессоустойчивостью (Wu и др., 2024). Стабильное поддержание метилирования CHG и тонкие изменения в паттернах метилирования CHH, наблюдаемые у солеустойчивого генотипа, могут указывать на усиленную регуляцию генов, вовлеченных в осмозащиту и ионный гомеостаз. Подобные паттерны метилирования были идентифицированы у стресс-устойчивых генотипов, которые активно поддерживают специфические состояния метилирования для запуска стресс-чувствительной экспрессии генов (Kumar и Mohapatra, 2021). IGR, вероятно, является дифференциально метилированной областью (DMRs), несмотря на то, что метилирование CGH оставалось неизменным при стратегиях TMC и TIC для обоих генотипов. Эти результаты подчеркивают эволюционное ограничение ЭПРВ оставаться транскрипционно молчащими, что отражается стабильностью метилирования CGH, одновременно выявляя внутреннюю вариабельность и эпигенетическую пластичность интенсивности сайленсинга, потенциально обеспечивая адаптивные реакции на условия окружающей среды.
5 Заключение
В пределах томата встречаемость ЭПРВ опосредует тонкий баланс между сохранением стабильности генома хозяина и допущением вариабельности числа копий. Эти изменения вместе с эпигенетической регуляцией через уровень метилирования цитозина помогают смягчить солевой стресс у томата как в системах монокультуры, так и совместного выращивания. Основываясь на результатах нашего исследования, совместное выращивание галофитов с томатом представляется перспективной агрономической стратегией для повышения овощного производства в засоленных, маргинальных аридных и полуаридных средах. Рекомендуется проведение полевых испытаний в этих засоленных средах для подтверждения потенциала фитообессоливания галофитов в естественных условиях.
Дополнительные материалы
Дополнительные материалы к этой статье можно найти онлайн по адресу: https://www.frontiersin.org/articles/10.3389/fpls.2026.1702837/full#supplementary-material
Zitouna N, Sakka H, Bouteraa MT, Mehrez M, Slatni T, Fakhfakh H, Ben Hamed K and Gorsane F (2026) Genetic diversity and evolution of endogenous pararetroviruses across Solanaceae: How farming systems drive dynamic tomato EPRVS changes under salt stress. Front. Plant Sci. 17:1702837. doi: 10.3389/fpls.2026.1702837
Перевод статьи «Genetic diversity and evolution of endogenous pararetroviruses across Solanaceae: How farming systems drive dynamic tomato EPRVS changes under salt stress» авторов Zitouna N, Sakka H, Bouteraa MT, Mehrez M, Slatni T, Fakhfakh H, Ben Hamed K and Gorsane F, оригинал доступен по ссылке. Лицензия: CC BY. Изменения: переведено на русский язык
Фото: Designed by Freepik




Комментарии (0)