

Как окружающая среда формирует бактериом устриц: абсолютная количественная оценка методом метабаркодинга
Популяции устриц создают новые местообитания, поддерживают продуктивность, улучшают качество воды путём удаления избытка биогенных элементов в прибрежных экосистемах и служат источником животного белка. Что ещё важнее, связанный с ними бактериом, вероятно, вносит основной вклад в эти экологические функции. Однако профили сообществ, механизмы формирования бактерий, связанных с устрицами, и их взаимодействие с окружающей средой остаются недостаточно изученными.
Аннотация
Методы:
В данном исследовании было собрано 24 устрицы из четырёх типичных районов устричного хозяйства залива Юэцин (Китай), после чего проведено высокопроизводительное секвенирование ампликонов 16S rRNA с добавлением внутренних стандартов (spike-in) для абсолютной количественной оценки и последующий биоинформатический анализ.
Результаты и обсуждение:
Результаты показывают, что в совокупном бактериоме устриц из Юэцина доминировали Proteobacteria на уровне типа и Vibrio на уровне рода — наиболее распространённые и многочисленные бактерии. Более того, структура бактериома устриц из разных мест отбора проб выявила значительные географические различия. Было установлено, что эти вариации значимо коррелируют с физико-химическими свойствами, такими как солёность, общий азот, аммонийный азот (NH4+-N), нитратный азот (NO3−-N) и др. Важно отметить, что анализ нейтральной модели сообщества (NCM) и нулевой модели показал, что в формировании бактериома устриц преобладала стохастичность. Подобные экологические процессы могут способствовать поддержанию разнообразия и стабильности бактериома устриц.
Заключение:
В совокупности полученные результаты углубляют наше понимание закономерностей бактериома культивируемых устриц в различных условиях окружающей среды и лежащих в их основе механизмов формирования, тем самым обеспечивая важные сведения для оценки здоровья прибрежных экосистем и ценные рекомендации для устойчивой практики устричного хозяйства.
1 Введение
Устрицы — это двустворчатые моллюски, которые питаются путём фильтрации взвешенных органических частиц, микроводорослей, фитопланктона и бактерий. Они играют важную роль в функционировании прибрежных морских экосистем. Например, популяции устриц способствуют сохранению и устойчивому использованию морей, создавая новые местообитания, поддерживая продуктивность, очищая воду путём удаления взвешенных частиц и избытка биогенных элементов (Newell et al., 2005; Kellogg et al., 2014), а также обеспечивая источник животного белка с низким уровнем выбросов парниковых газов (Ray et al., 2019). В частности, благодаря высокой питательной ценности (высокое содержание высококачественного белка, а также минералов, таких как цинк и селен) (Zhang et al., 2025), устрицы широко употребляются в пищу в мире (Willer and Aldridge, 2020). Мировой рынок устриц значительно вырос за последние два десятилетия, особенно активное расширение наблюдалось в Китае. Их широко культивировали в заливах Китая вдоль 18 000-километровой береговой линии, с севера на юг, что составляет 80% мирового производства (Botta et al., 2020; Sun et al., 2023). Следовательно, устрицы экологически и экономически важны для устойчивого развития здоровья прибрежных районов Китая.
Залив Юэцин — это полузакрытый залив, расположенный на северной стороне устья реки Оуцзян на юго-востоке провинции Чжэцзян, Китай. Он охватывает площадь около 469 км² и береговую линию протяжённостью 220 км. Этот регион известен как «золотой залив» и является одной из важных баз морской аквакультуры Китая, где в больших масштабах культивируют устриц. Исторически устричное хозяйство было традиционным семейным промыслом, который приносит доход местным рыбакам. Устойчивость устричного хозяйства в заливе Юэцин тесно связана со стабильностью его хозяйственных экосистем, которые совместно формируются биотическими и абиотическими физико-химическими параметрами. Эта связь подчёркивает актуальность изучения бактериомов, связанных с устрицами, поскольку они не только являются неотъемлемой частью экосистемных функций залива, но и играют критическую роль в росте и здоровье устриц. Например, связанный с ними бактериом участвует в биогеохимических циклах через реминерализацию органического вещества и трансформацию углерода (C), азота (N) и серы (S) между различными химическими формами (Unzueta-Martínez et al., 2022; Lei et al., 2025). Предыдущие исследования сообщали, что среда обитания хозяина является главным определяющим фактором микробиома морских видов (Kim et al., 2021), и эти микробиомы играют важную роль в их росте, предоставляя хозяину дополнительные функциональные ресурсы, такие как метаболизм питательных веществ, модуляция иммунной системы и устойчивость к патогенам (Roeselers et al., 2011; Geraylou et al., 2012; Trabal Fernández et al., 2014). Эти результаты свидетельствуют о том, что бактериом устриц разных видов и из разных мест различается, и что внешние факторы окружающей среды, такие как солёность, температура, pH и др., могут оказывать значительное влияние на микробиом живых морских пищевых организмов (Sullam et al., 2012; Kim et al., 2021; Unzueta-Martínez et al., 2022). Например, в предыдущих исследованиях анализировали состав кишечного бактериома таких устриц, как Crassostrea virginica, Crassostrea corteziensis, Crassostrea gigas и Crassostrea sikamea (Trabal Fernández et al., 2014; Pierce et al., 2019; Lei et al., 2025), и обнаружили, что Proteobacteria стабильно определялась как наиболее многочисленный тип у разных видов устриц (Trabal Fernández et al., 2014). Однако состав бактериома устриц может варьировать в зависимости от географического положения, что согласуется с предыдущими исследованиями, демонстрирующими географическую изменчивость структуры бактериальных сообществ, связанных с устрицами (Trabal Fernández et al., 2014; Lei et al., 2025). Поэтому, несмотря на то что предыдущие исследования описывали структуру бактериома, связанного с устрицами, знания о профилях бактериальных сообществ в заливе Юэцин и их взаимодействии со специфическими экологическими условиями региона остаются ограниченными.
Основная цель экологии микробных сообществ — понять силы, которые структурируют состав сообщества. Механизмы формирования экологических сообществ в своей основе регулируются теориями, основанными на нишах, и нейтральными теориями (Riddley et al., 2025). Согласно этим框架, природные сообщества формируются комбинацией факторов, опосредованных нишами, и стохастических факторов, интегрируя как нейтральную, так и нишевую динамику, действующую в различных пространственно-временных масштабах (Wang et al., 2013; Wu et al., 2021; Li et al., 2025). Например, Liu et al. обнаружили, что стохастические факторы контролировали небольшой процент микробиоты, попадающей в устриц, обеспечивая пластичность, позволяющую им поддерживать микробный гомеостаз, в то время как большинство микробиоты устриц являются резидентными, управляемыми детерминистическими факторами (Liu et al., 2024). Liu et al. обнаружили, что кишечные микробиомы, связанные с краснобрюхой тилапией, доминируются стохастическими процессами (Liu et al., 2025). В частности, теория экологической ниши подчёркивает детерминистические процессы, движимые средовым отбором. Эти процессы включают абиотические факторы, такие как доступность питательных веществ, и биотические взаимодействия, такие как мутуализм и конкуренция, которые играют критическую роль в формировании сообщества (Riddley et al., 2025). В соответствии с этой теорией исследования определили солёность как ключевой определяющий фактор состава и функций бактериального сообщества, связанного с устрицами (Lei et al., 2025). Они обнаружили, что повышение солёности значительно влияло на обилие доминирующих бактериальных родов, таких как Vibrio, Pseudomonas и Shewanella, тем самым изменяя состав бактериальных сообществ. Напротив, нейтральная теория утверждает, что стохастические процессы, такие как гомогенизирующий рассеивание, ограничение рассеивания и экологический дрейф, оказывают важное влияние на формирование сообщества. Примечательно, что изменения окружающей среды могут вызывать существенные сдвиги в относительном доминировании этих процессов: бактериальные сообщества могут переходить от преимущественно стохастической структурированности к доминированию детерминизма, или наоборот. В более крупных пространственных масштабах влияние стохастических процессов, как правило, перевешивает влияние детерминистических процессов, тогда как в меньших масштабах детерминистические процессы могут быть более доминирующими (Yan et al., 2017). Поэтому природные сообщества чаще формируются под совместным воздействием стохастических и детерминистических процессов (Li et al., 2025; Riddley et al., 2025). Однако механизмы, лежащие в основе формирования бактериального сообщества в устрицах, остаются в значительной степени неизвестными. Различение этих процессов и количественная оценка их относительного вклада критически важны для оценки устойчивости и уязвимости бактериома устриц. В частности, такое исследование может прояснить, как бактериом устриц реагирует на нарушения окружающей среды и патогенную инфекцию (Li et al., 2017).
Высокопроизводительное секвенирование гена 16S rRNA в настоящее время широко используется для глубокой характеристики сложных бактериальных сообществ и значительно продвинуло наше понимание сообществ, связанных с устрицами. Хотя этот подход обеспечивает высокое таксономическое разрешение, он предоставляет только относительное обилие таксона. Более того, интерпретация различий микробных сообществ между образцами, основанная исключительно на относительных обилях, может, однако, вводить в заблуждение, поскольку колебания абсолютного обилия одного вида могут вызывать кажущееся изменение измеренного (относительного) обилия других видов (Tsilimigras and Fodor, 2016; Props et al., 2017). Для решения этого ограничения было разработано высокопроизводительное секвенирование ампликонов гена 16S rRNA на основе внутренних стандартов (spike-in) для абсолютной количественной оценки бактериома (Tourlousse et al., 2016; Props et al., 2017; Ji et al., 2019). Эти стандарты состоят из 12 последовательностей с полноразмерными генами 16S rRNA, содержащими искусственные вариабельные области с пренебрежимо малой идентичностью известным нуклеотидным последовательностям, что позволяет однозначно идентифицировать spike-in последовательности в данных 16S-секвенирования из любого образца микробиома. Этот усовершенствованный подход сохраняет филогенетическое разрешение секвенирования 16S rRNA, одновременно обеспечивая комплексный контроль качества и абсолютную количественную оценку бактериома устриц в заливе Юэцин, тем самым позволяя более надёжно исследовать, как местная окружающая среда специфически взаимодействует с этими бактериальными сообществами и формирует их состав.
В данном исследовании мы отобрали устриц из залива Юэцин, Китай, и охарактеризовали связанный с ними бактериом с использованием подхода количественного высокопроизводительного секвенирования ампликонов гена 16S rRNA. Целями данного исследования были изучение профилей сообществ бактериома устриц, анализ взаимодействия между бактериомом и факторами окружающей среды, а также выявление лежащих в основе механизмов формирования бактериального сообщества. Ожидается, что наши результаты обогатят исследования по экологии морских микробных сообществ и предоставят руководство для устойчивой аквакультуры устриц.
2 Материалы и методы
2.1 Сбор образцов и измерение факторов окружающей среды
Мы отобрали 24 взрослые устрицы (Crassostrea gigas, наиболее широко культивируемый вид устриц в Китае) для анализа бактериома из четырёх мест отбора проб залива Юэцин провинции Чжэцзян, Китай, в октябре 2024 года. Эти места были отобраны на основе двух основных критериев: все места являются естественными местообитаниями устриц, где в настоящее время культивируется один и тот же вид устриц; места охватывают градиент ключевых абиотических факторов, известных своим влиянием как на устриц, так и на микробное сообщество, таких как солёность (от 7,36 до 25,60 промилле), растворённый кислород (от 7,52 до 9,10 мг/л) и общий азот (от 0,80 до 1,23 мг/л). Эти биотические и абиотические факторы могут позволить нам проверить механизм формирования бактериома, связанного с устрицами. Эти устрицы были случайным образом отобраны с высотой раковины 6–12 см и возрастом 7–12 месяцев после постличинки, согласно предыдущему исследованию (Trabal Fernández et al., 2014), чтобы минимизировать влияние стадии роста на бактериальное сообщество. После сбора все образцы устриц были немедленно помещены в лёд и сразу доставлены в лабораторию. Подробные географические координаты четырёх мест отбора проб, таких как D3, D4, D5 и D6, предоставлены в таблице 1. Параметры окружающей среды хозяйственных вод измеряли на месте с использованием детектора качества воды для аквакультуры DZ-C (Qingdao Juchuang Environmental Protection Group Co., LTD). Оценённые параметры включали температуру воды, pH, солёность, аммонийный азот (NH4+-N), нитратный азот (NO3−-N), общий органический углерод (TOC), общее количество растворённых твёрдых веществ (TDS) и растворённый кислород (DO). Результаты этих измерений параметров предоставлены в дополнительной таблице S1.
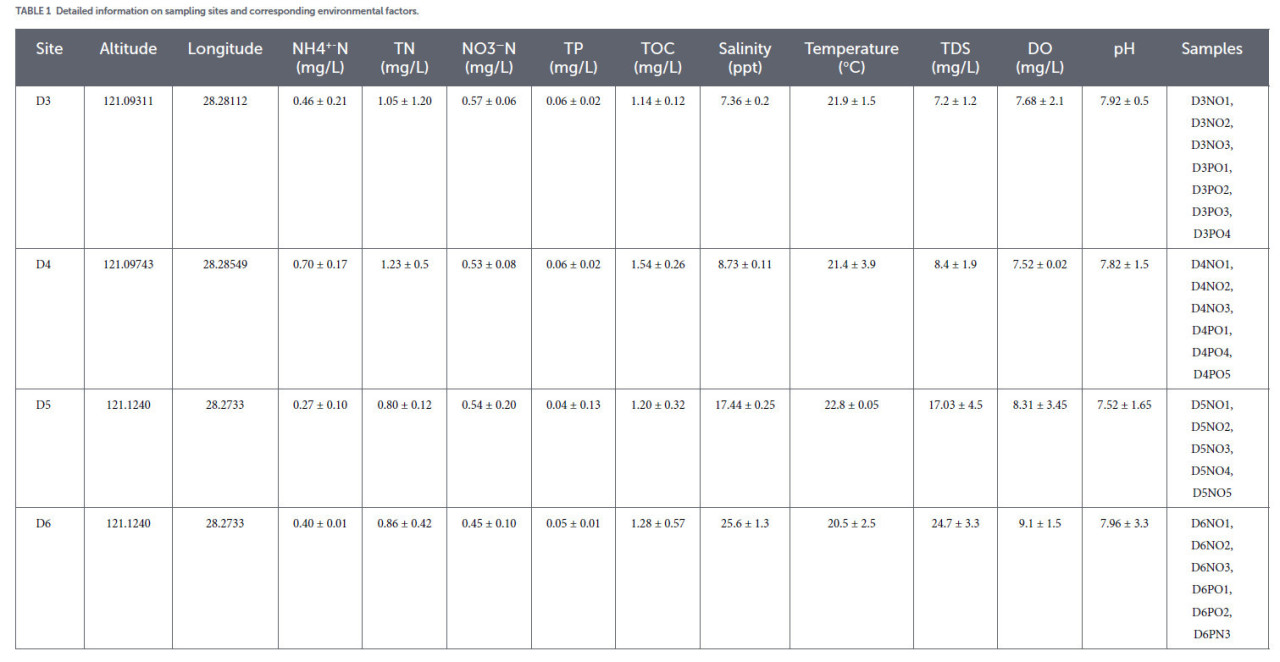
Таблица 1 Подробная информация о местах отбора проб и соответствующих факторах окружающей среды.
2.2 Экстракция ДНК и абсолютное количественное секвенирование ампликонов 16S rRNA
Перед экстракцией микробной ДНК все устрицы были вскрыты после поверхностной дезинфекции 75% этанолом для устранения внешних бактериальных загрязнителей. Для анализа бактериома в данном исследовании внутренние ткани устриц использовались целиком без разделения жабр, мантии или кишечных тканей устриц. Микробную ДНК экстрагировали с использованием набора E. Z. N. A. Stool DNA Kit (Omega Biotek, GA, U. S.). Качество и концентрацию экстрагированной ДНК оценивали и количественно определяли с помощью 1,0% электрофореза в агарозном геле и спектрофотометра Nanodrop 2000 (Thermo Scientific, United States).
Абсолютное количественное секвенирование ампликонов 16S rRNA бактерий было проведено компанией Majorbio Bio-Pharm Technology Co., Ltd. (Шанхай, Китай). Для обеспечения абсолютной количественной оценки в пулы ДНК образцов были добавлены 12 различных spike-in последовательностей (с четырьмя различными концентрациями: 10³, 10⁴, 10⁵ и 10⁶ копий внутренних стандартов). Последовательности spike-in стандартов использовались как ранее разработанные и могут быть найдены в GeneBank под номерами доступа LC140931-42 (Tourlousse et al., 2016). Эти spike-in последовательности содержали консервативные области, идентичные таковым выбранных природных генов 16S rRNA, в то время как их искусственные вариабельные области имели пренебрежимо малую идентичность нуклеотидных последовательностей с публичными базами данных. Этот дизайн позволял spike-in последовательностям функционировать в качестве внутренних стандартов и обеспечивать согласованную абсолютную количественную оценку по всем образцам.
Гипервариабельные области V3–V4 гена 16S rRNA бактерий амплифицировали с помощью пары праймеров 338F (5’-ACTCCTACGGGAGGCAGCAG-3′) и 806R (5’GGACTACHVGGGTWTCTAAT-3′) (Klindworth et al., 2013; Lin et al., 2020) с использованием термоциклера для ПЦР T100 Thermal Cycler (Bio-Rad, USA). Реакционная смесь для ПЦР (общий объём 20 мкл) содержала 4 мкл 5× Fast Pfu буфера, 2 мкл 2,5 мМ dNTP, 0,8 мкл каждого 5 мкМ праймера, 0,4 мкл Fast Pfu полимеразы, 10 нг матричной ДНК и ddH2O до объёма 20 мкл. Условия термоциклирования были следующими: начальная денатурация при 95 °C в течение 3 мин, затем 27 циклов денатурации при 95 °C в течение 30 с, отжиг при 55 °C в течение 30 с, элонгация при 72 °C в течение 45 с и однократная элонгация при 72 °C в течение 10 мин, завершение при 12 °C. Продукты ПЦР анализировали с помощью 2% электрофореза в агарозном геле и очищали с использованием набора PCR Clean-Up Kit (YuHua, Шанхай, Китай) согласно инструкциям производителя и количественно определяли с использованием флуориметра Qubit 4.0 (Thermo Fisher Scientific, USA).
2.3 Высокопроизводительное секвенирование и анализ
Очищенные ампликоны объединяли в эквимолярных количествах и подвергали парно-концевому секвенированию на платформе Illumina NextSeq2000. Необработанные файлы FASTQ были демультиплексированы с использованием внутреннего скрипта Perl, после чего проведена фильтрация качества с помощью fastp версии 0.19.6 (Chen et al., 2018) и объединение с помощью FLASH версии 1.2.7 (Magoč and Salzberg, 2011). Оптимизированные последовательности были кластеризованы в операционные единицы (OTU) с использованием UPARSE 7.1 (Edgar, 2013) с порогом сходства последовательностей 97%. Для каждой OTU наиболее abundant последовательность была выбрана в качестве репрезентативной. Репрезентативные последовательности OTU, отнесённые к 12 spike-in последовательностям (с порогом идентичности 100%), были отфильтрованы, а оставшиеся чтения подсчитаны. Для каждого образца была построена стандартная кривая, скорректированная по стандартной кривой числа копий spike-in ДНК, и на основе этой кривой определялось количественное обилие каждой OTU в соответствующем образце. Таксономическая аннотация каждой репрезентативной последовательности OTU была выполнена с использованием классификатора RDP версии 2.2 (Wang et al., 2007) против базы данных гена 16S rRNA (например, Silva v138) с порогом достоверности 0,7. Необработанные чтения секвенирования были депонированы в NCBI под BioProject PRJNA1359352.
2.4 Статистический анализ
На основе набора данных OTU индексы α- и β-разнообразия были рассчитаны с использованием пакетов R «vegan» и «ggplot2». Сходство микробных сообществ между различными образцами визуализировали с помощью неметрического многомерного шкалирования (NMDS) на основе различий Брея–Кёртиса и с использованием теста PERMANOVA для оценки процента объяснённой вариации, а также его статистической значимости с использованием пакета Vegan v2.5–3. Анализ размера эффекта линейного дискриминантного анализа (LDA) (LEfSe) был выполнен для идентификации бактериальных таксонов со значительно дифференциальным обилием среди мест (LDA > 2, p < 0,05) (Segata et al., 2011). Для исследования влияния факторов окружающей среды на структуру бактериома устриц был выполнен анализ избыточности (RDA)/канонический анализ соответствия (CCA) с использованием пакета Vegan V2.5–3. Различия в бактериальном составе устриц между местами отбора проб представлены как среднее ± стандартное отклонение. Сравнения двух мест проводили с использованием t-теста Стьюдента с помощью SPSS 19.0, при этом значение p < 0,05 считалось статистически значимым. Процессы формирования сообщества оценивали с использованием нейтральной модели сообщества (NCM) Слоана (Sloan et al., 2006) и нулевой модели на основе двухэтапной схемы, подробно описанной в Stegen et al. (2013), для количественной оценки относительного вклада стохастических и детерминистических процессов на уровне отдельных таксонов/линий.Для анализа нулевой модели использовали индекс ближайшего таксона β (βNTI) и матрицу Раупа-Крика (RCbray) для идентификации экологического механизма, движущего вариации филогенетического и таксономического разнообразия (Shi et al., 2023). βNTI использовался для указания степени, в которой композиционные изменения между двумя сообществами обусловлены детерминистическими или стохастическими факторами. В частности, βNTI > 2 указывает на то, что сосуществующие таксоны более близкородственны, чем ожидалось случайно (филогенетическая кластеризация), или βNTI < −2 указывает на то, что сосуществующие таксоны более далеко родственны, чем ожидалось случайно (филогенетическое сверхрассеивание). Значения βNTI в пределах вышеупомянутых диапазонов означают, что сообщества формировались детерминистическими процессами, такими как гетерогенный и гомогенный отбор. Когда значения βNTI попадают в интервал −2 ≦ βNTI ≦ 2, формирование сообщества управляется стохастическими процессами. RCbray рассчитывается из |βNT| < 2, что означает, что замена группы сообществ происходит за счёт ограничения рассеивания, гомогенизирующего рассеивания и недоминируемого контроля процессов. RCbary > 0,95, RCbray < −0,95 и −0,95 ≦ RCbary ≦ 0,95 указывают соответственно на ограничение рассеивания, гомогенизирующее рассеивание и недоминируемые процессы (такие как слабый отбор, слабое рассеивание, диверсификация и дрейф) (Dini-Andreote et al., 2015).
3 Результаты
3.1 Пан-бактериом устриц
Используя абсолютную количественную оценку на основе секвенирования ампликонов 16S rRNA со spike-in, мы проанализировали бактериом 24 устриц, собранных из четырёх мест отбора проб в заливе Юэцин, Китай. В целом общее количество обнаруженных бактерий было классифицировано в 48 типов, 859 родов и 1 268 видов. Бактериальная нагрузка устриц варьировала от 2,8E+07 до 1,52E+09 копий/г, со средним значением 3,32E+08 ± 3,77E+08 копий/г (рисунок 1a; дополнительная таблица S2). Среди четырёх мест отбора проб устрицы из места D3 показали highest бактериальную нагрузку 5,09E+08 ± 4,28E+08 копий/г (рисунок 1a). Напротив, устрицы из места D5 имели lowest бактериальную нагрузку — 1,11E+08 ± 8,2E+07 копий/г (рисунок 1a).
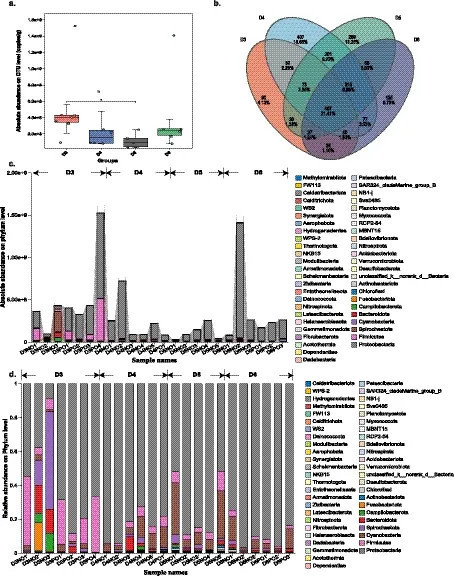
Рисунок 1 Пан-бактериом устриц из разных мест отбора проб в заливе Юэцин, Китай. (a) Абсолютное обилие бактерий в устрицах. (b) Диаграмма Венна бактериома устриц из разных мест на уровне OTU. (c) Абсолютное обилие бактерий устриц на уровне типа. D3, D4, D5 и D6 обозначают места отбора проб, а NO или PO с разным номером были кодом устриц. (d) Абсолютное обилие бактерий устриц на уровне рода.
Устрицы из разных мест отбора проб имели ограниченное количество общих бактерий. Из всех обнаруженных OTU только 21,41% (467) были найдены во всех образцах (рисунок 1b). Наиболее многочисленными ядровыми OTU были OTU244 (составляющая 30,26% общих OTU), OTU247 (составляющая 17,33% общих OTU) и OTU243 (составляющая 10,52% общих OTU) (дополнительный рисунок S1). Эти три OTU были аннотированы как Vibrio campbellii, Citrobacter freundii и неклассифицированный Acinetobacter, все из которых принадлежат к типу Proteobacteria. Среди четырёх мест отбора проб устрицы из места D4 показали наибольшее число уникальных OTU (407), что составляет 18,66% от общего числа OTU (рисунок 1b), за ними следуют устрицы из места D5, которые содержали 289 уникальных OTU (рисунок 1b). На уровне типа пять наиболее многочисленных типов, обнаруженных в бактериоме устриц, были Proteobacteria, Firmicutes, Spirochaetota, Cyanobacteria и Bacteroidota (рисунок 1c). Из них Proteobacteria был наиболее распространённым и многочисленным типом, с относительной долей от 8,75 до 96,93% и средним значением 75,47 ± 20,91% (рисунок 1d). На уровне рода Vibrio и Citrobacter были наиболее многочисленными родами во всех образцах устриц (дополнительные рисунки S2a,b). Для Vibrio относительная доля в устрицах варьировала от 0 до 91,68%, со средней бактериальной нагрузкой 1,26E+08 ± 2,51E+08 копий/г и средней относительной долей 43,50% ± 29,44% (дополнительные рисунки S2a,b). Устрицы из места D6 имели наибольшую нагрузку Vibrio, достигающую 1,29E+09 копий/г (дополнительный рисунок S2a). Для Citrobacter относительная доля в устрицах варьировала от 0 до 84,85%, со средней нагрузкой 8,27E+08 ± 1,70E+08 копий/г и средней относительной долей 17,125% ± 22,02% (дополнительные рисунки S2a,b). Наибольшая нагрузка Citrobacter наблюдалась у устриц из места D3 — 2,05E+08 копий/г (дополнительные рисунки S2a,b). В совокупности эти результаты характеризуют бактериом устриц из залива Юэцин, Китай.
3.2 Бактериом устриц демонстрирует участко-специфическую географическую изменчивость
Структура бактериома различалась среди устриц из разных мест отбора проб. Анализ LEfSe идентифицировал многочисленные маркерные бактерии, принадлежащие к 20 типам и 111 родам из разных мест (рисунок 2a; дополнительная таблица S3). Среди них устрицы из места D5 содержали наибольшее количество маркерных бактерий на различных таксономических уровнях по сравнению с устрицами из других мест. Топ-10 маркерных бактерий, ранжированных по баллу LDA в каждом месте, показаны на рисунке 2b. Например, Enterobacter и Serratia были обогащены в устрицах из места D3, Citrobacter и Klebsiella были обогащены в таковых из места D4, Vibrio и Endozoicomonas были обогащены в месте D6, а Pseudoalteromonas был обогащён в месте D5. Эти результаты свидетельствовали о том, что бактериальный состав устриц из разных мест различался. В соответствии с этим результатом α-разнообразие бактериома устриц также показывает значительное различие. Хотя разнообразие бактериома устриц не продемонстрировало значительной вариации среди мест (на основе индекса Шеннона, рисунок 3a), их богатство и выравненность показали значительные различия (рисунки 3b,c, p < 0,05). В частности, устрицы из места D4 имели наибольшее богатство и выравненность сообщества, в то время как таковые из места D3 имели наименьшие. Соответствуя различиям в разнообразии сообщества бактериома устриц среди разных мест, их структура продемонстрировала значительное различие в β-разнообразии (рисунок 3d, p < 0,05, PERMANOVA). В совокупности эти результаты свидетельствовали о том, что бактериом устриц продемонстрировал местообитание-специфические профили с отличительными характеристиками, связанными с каждым местом отбора проб в заливе Юэцин.Структура бактериома различалась среди устриц из разных мест отбора проб. Анализ LEfSe идентифицировал abundant маркерные бактерии, принадлежащие к 20 типам и 111 родам из разных мест (рисунок 2a; дополнительная таблица S3). Среди них устрицы из места D5 содержали highest количество маркерных бактерий на различных таксономических уровнях по сравнению с устрицами из других мест. Топ-10 маркерных бактерий, ранжированных по баллу LDA в каждом месте, показаны на рисунке 2b. Например, Enterobacter и Serratia были обогащены в устрицах из места D3, Citrobacter и Klebsiella были обогащены в таковых из места D4, Vibrio и Endozoicomonas были обогащены в месте D6, а Pseudoalteromonas был обогащён в месте D5. Эти результаты свидетельствовали о том, что бактериальный состав устриц из разных мест различался. В соответствии с этим результатом α-разнообразие бактериома устриц также показывает значительное различие. Хотя разнообразие бактериома устриц не exhibited значительной вариации среди мест (на основе индекса Шеннона, рисунок 3a), их богатство и выравненность показали значительные различия (рисунки 3b,c, p < 0,05). В частности, устрицы из места D4 имели highest богатство и выравненность сообщества, в то время как таковые из места D3 имели lowest. Соответствуя различиям в разнообразии сообщества бактериома устриц среди разных мест, их структура exhibited значительное различие в β-разнообразии (рисунок 3d, p < 0,05, PERMANOVA). В совокупности эти результаты свидетельствовали о том, что бактериом устриц exhibited местообитание-специфические профили с отличительными характеристиками, связанными с каждым местом отбора проб в заливе Юэцин.
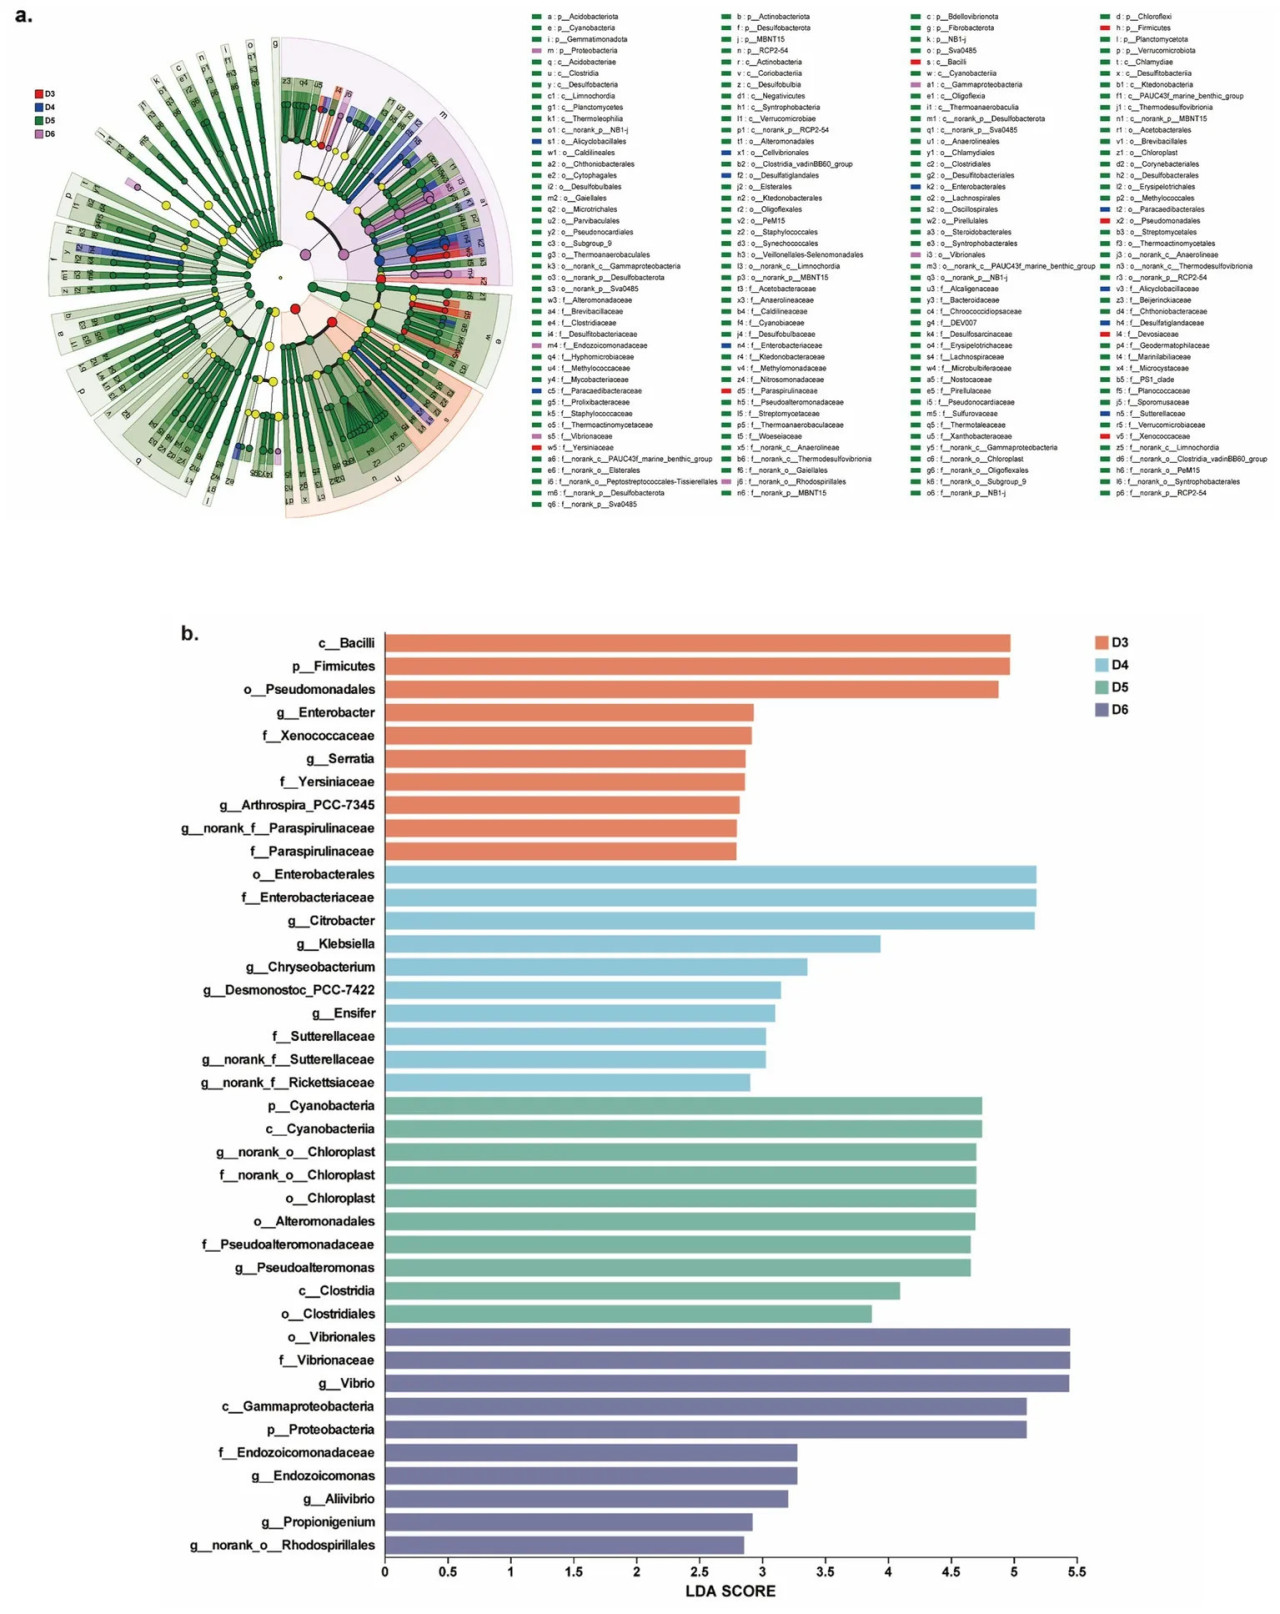
Рисунок 2 Таксономическое различие устриц среди разных мест отбора проб, выявленное с помощью LEfSe. (a) Кладограмма дифференциальных бактерий на разных таксономиях. Эта кладограмма показывает только дифференциальные бактерии на уровне семейства. (b) Баллы LDA дифференциальных бактерий из разных мест. Блот показывает только топ-10 дифференциальных бактерий в каждой группе.
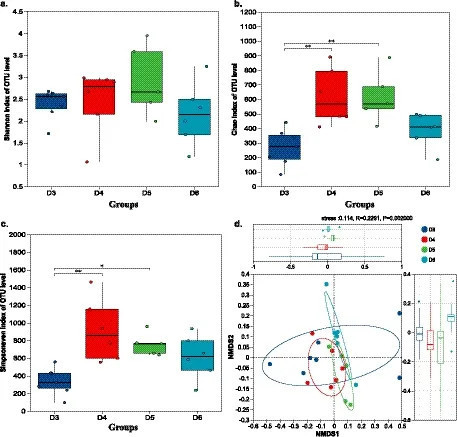
Рисунок 3 α- и β-разнообразие бактериального сообщества устриц. (a–c) Шеннон, Чао и Симпсон являются показателями α-разнообразия, репрезентативными для разнообразия, богатства и выравненности бактериального сообщества. (d) β-разнообразие бактериома устриц.
3.3 Влияние факторов окружающей среды на бактериом, связанный с устрицами
Бактериом устриц из разных мест находился под значительным влиянием факторов окружающей среды, как показал тест Мантеля (рисунок 4a). Как известно, географические закономерности определяют гетерогенность факторов окружающей среды. Из теста Мантеля мы дополнительно подтвердили, что географические координаты, особенно высота, были значительно коррелированы со всеми измеренными факторами окружающей среды (рисунок 4a). Более того, эти различия в факторах окружающей среды оказывали значительное влияние на бактериом устриц. Этот результат был подтверждён CCA, который показал, что все обнаруженные факторы окружающей среды, кроме температуры и pH, значительно влияли на бактериом устриц, такие как NH4+-N, NO3−-N, TN, TP, солёность, TDS и DO (рисунок 4b). Корреляция между факторами окружающей среды и бактериальными родами дополнительно поддержала эти результаты (рисунок 4c). В частности, роды, включая Pseudoalteromonas, Klebsiella и Citrobacter, продемонстрировали более сильную корреляцию с факторами окружающей среды, чем другие роды (рисунок 4c), что свидетельствует о том, что они играют важную роль в адаптации к средовым вариациям. Виды Vibrio показывают сильную корреляцию с солёностью и температурой (рисунок 4c), что указывает на то, что они могут демонстрировать специфические реакции на эти факторы окружающей среды. В совокупности эти результаты свидетельствовали о том, что факторы окружающей среды играют роль в формировании бактериома устриц в заливе Юэцин.
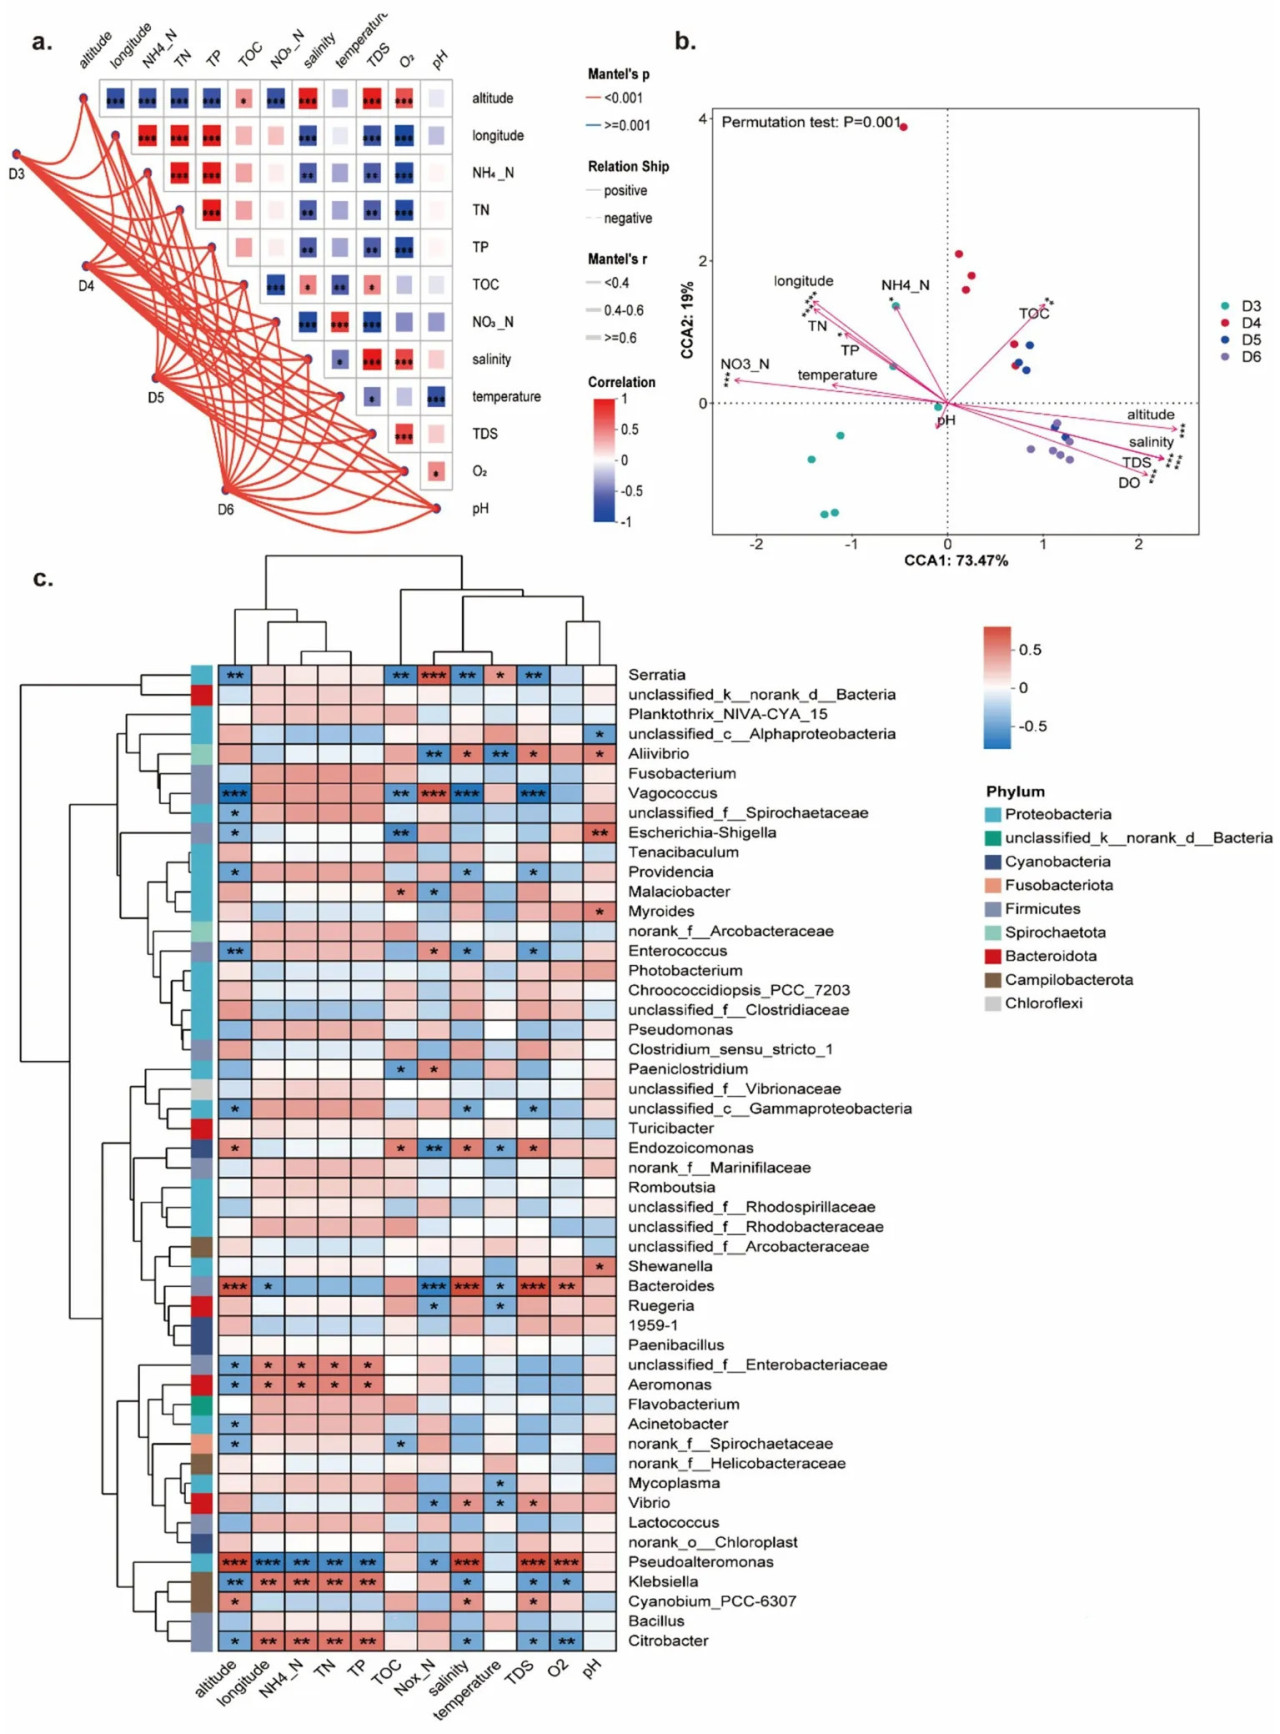
Рисунок 4 Влияние факторов окружающей среды на бактериальное сообщество устриц. (a,b) Тест Мантеля и CCA между факторами окружающей среды и бактериальным сообществом устриц. (c) Корреляция факторов окружающей среды и бактерий на уровне вида. p < 0,05, p < 0,01 и p < 0,001.
3.4 Стохастический процесс формирует географическую закономерность бактериальных сообществ устриц
Результаты NCM показали, что бактериом устриц из разных мест определялся стохастическим процессом, где коэффициент детерминации (R2) для этих сообществ был >0,9, что свидетельствовало о сильном соответствии NCM наблюдаемым данным (рисунок 5a). Кроме того, скорости миграции (m) четырёх бактериальных сообществ устриц были низкими (от 0,05 до 0,08), что указывает на сильное ограничение рассеивания во всех группах. Эти результаты были согласованы с результатами анализа нулевой модели, который дополнительно поддержал роль стохастических процессов в формировании бактериального сообщества. Нулевая модель показала, что все бактериальные сообщества из устриц имели |βNTI| < 2 и |RCbary| < 0,95 — условия, указывающие на то, что недоминируемые стохастические процессы, такие как слабый отбор, слабое рассеивание, диверсификация и экологический дрейф, оказывали наибольшее воздействие (рисунок 5b; дополнительный рисунок S3). Этот недоминируемый процесс составляет от 66,7 до 100% экологического процесса, формирующего бактериом устриц (рисунок 5C). Кроме того, другие процессы, такие как гомогенизирующее рассеивание, также влияли на бактериом устриц, составляя от 0 до 26,7% экологического процесса (рисунок 5C). В совокупности эти результаты демонстрируют, что стохастические процессы являются первичными движущими силами формирования бактериома устриц из залива Юэцин.
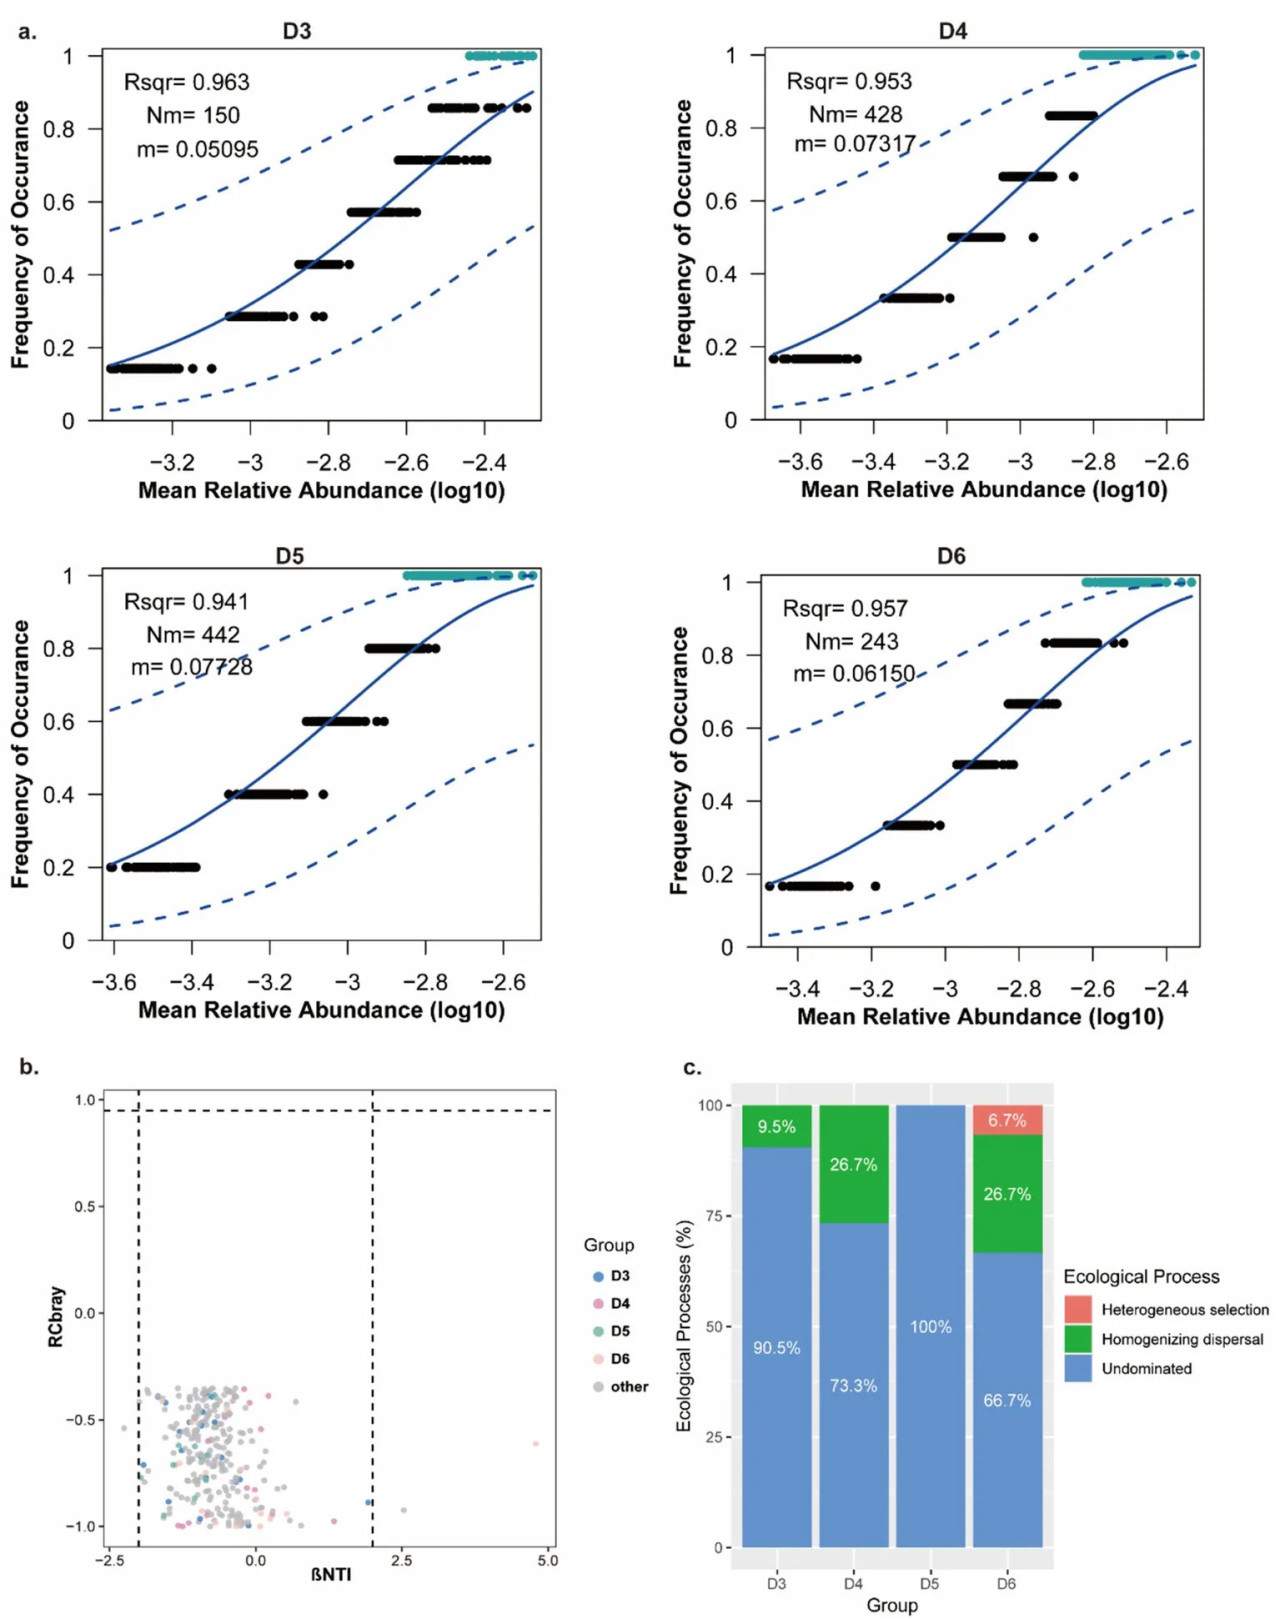
Рисунок 5 Механизм формирования бактериома устриц на основе NCM и нулевой модели. (a) NCM устриц из разных мест отбора проб. (b) Значения βNTI и RCbray бактериального сообщества устриц из разных мест. (c) Вклад экологических процессов в бактериом устриц из разных мест.
4 Обсуждение
Бактериом устриц находится под влиянием как биотических, так и абиотических факторов и участвует в здоровье их хозяина и прибрежной экосистемы (Ray and Fulweiler, 2021; Unzueta-Martínez et al., 2022; Lei et al., 2025). Поэтому характеристика профилей бактериома устриц вместе с его лежащим в основе движущим фактором и механизмами формирования имеет важное значение для понимания их экологии. Здесь, используя высокопроизводительное секвенирование и анализ ампликонов 16S rRNA на основе spike-in стандартов, мы обнаружили, что бактериом устриц в заливе Юэцин, Китай, exhibited географически отличительные закономерности и доминируется стохастическими процессами формирования, при этом его структура находится под влиянием местных факторов окружающей среды.
Proteobacteria были наиболее многочисленным бактериальным типом в устрицах, что согласуется с предыдущими исследованиями (Prapaiwong et al., 2009; Trabal et al., 2012; Trabal Fernández et al., 2014; Yu et al., 2021; Lei et al., 2025). Это обусловлено тем, что Proteobacteria играют ключевую роль в циклах углерода, азота и серы, поддерживают выживание и рост устриц и продемонстрировали сильную устойчивость к экстремальным условиям окружающей среды (Spain et al., 2009; Asmani et al., 2016; Bernal et al., 2017; Delmont et al., 2018). Что касается уровня рода, Vibrio был наиболее распространённым и многочисленным родом, что также было обнаружено в других исследованиях (Lei et al., 2025). Абсолютная концентрация устриц из этого региона варьировала от 10⁷ ~ 10⁹ со средним значением 10⁸ копий/г (эквивалент CFU), что составляло более 90% от общего числа бактерий в определённых образцах устриц. Этот уровень бактериальной нагрузки был приблизительно эквивалентен общему количеству бактерий фекалий человека (10⁸ ~ 10¹¹ копий/г) и сопоставим с таковым в почве (10⁸ ~ 10⁹ копий/г) (Zhang et al., 2017; Tkacz et al., 2018), что свидетельствует об их высоком обилии в устрицах. Однако из-за ограниченного таксономического разрешения последовательности V3–V4 16S rRNA на уровне вида мы не могли различить, содержали ли эти устрицы патогенные виды Vibrio, такие как Vibrio cholerae, Vibrio parahaemolyticus и Vibrio vulnificus, которые вредны для человека. Тем не менее, повышенное внимание по-прежнему необходимо уделять пролиферации и передаче Vibrio, переносимых устрицами, как в районах устричного хозяйства, так и в человеческой популяции. Это особенно актуально в заливе Юэцин, который, как сообщается, является одним из регионов с наибольшим числом случаев инфекции Vibrio vulnificus (Zhongqiu Lu et al., 2003; Lu, 2025), а устрицы также идентифицированы как один из наиболее часто сообщаемых морских видов-носителей Vibrio (Daniels, 2011; Froelich et al., 2013; Baker-Austin et al., 2018).
Бактериом устриц из залива Юэцин продемонстрировал пространственно распределённую закономерность. Структура бактериома устриц различалась среди четырёх мест отбора проб залива Юэцин, что было поддержано их α-разнообразием (включая выравненность и богатство сообщества) и β-разнообразием. Такая пространственная вариация в распределении бактериома приписывается гетерогенности факторов окружающей среды, которая, в свою очередь, обусловлена географическим положением. Это наблюдение согласуется с предыдущими исследованиями (Wan et al., 2021; Li et al., 2025). Примечательно, что солёность оказалась наиболее влиятельным фактором, формирующим бактериальные сообщества устриц. Учитывая высокое обилие Vibrio в этих устрицах, влияние солёности на бактериальное сообщество, вероятно, опосредуется через её воздействие на Vibrio, как подтверждено положительной корреляцией между солёностью и Vibrio. Как известно, устриц обычно культивируют в оптимальных условиях солёности (Funo et al., 2015). Более того, большинство Vibrio являются галофильными бактериями, обитающими в водных средах. Путём фильтрации Vibrio переносятся из воды в устрицы, устанавливая связь между ними. Даже незначительные колебания солёности могут влиять как на самих устриц, так и на их связанных симбионтов Vibrio, тем самым изменяя состав бактериома устриц. Этот результат был подтверждён предыдущими исследованиями (Lei et al., 2025). Более того, сообщается, что оптимальная солёность для роста Vibrio составляет 20 промилле (Lei et al., 2025). Среди четырёх мест отбора проб D4 имел наиболее подходящую солёность для пролиферации Vibrio, что объясняет, почему Vibrio был идентифицирован как маркерный таксон в этом месте с помощью анализа LDA. В дополнение к солёности другие факторы окружающей среды также оказывали значительное воздействие на бактериальное сообщество, такие как TDS, DO, NO3−-N и NH4+-N. Их влияние, вероятно, связано с определёнными родами, такими как Pseudoalteromonas и Citrobacter. Эти роды, как известно, активно участвуют в биогеохимических циклах, таких как C, N и S, и способствуют выживанию и росту устриц (Dubilier et al., 2008; Fiore et al., 2010). Например, Pseudoalteromonas играет ключевую роль в деградации альгината, который является важным источником углерода для морских организмов (Xu et al., 2021). Кроме того, как солеустойчивые бактерии, эти бактерии также являются эффективными продуцентами протеаз, которые играют важные экологические роли в деградации азота (Chen et al., 2020). Примечательно, что место D5 продемонстрировало наименьшие NH4+-N и TN, которые были значительно коррелированы с обогащением Pseudoalteromonas в этом месте (подтверждено анализом LEfSe). Эти результаты свидетельствовали о том, что влияние факторов окружающей среды на конкретные роды определяется их функциональным потенциалом, который в конечном итоге формирует структуру бактериома устриц. В совокупности наше исследование обнаружило, что обусловленная географическим положением гетерогенность окружающей среды влияет на обилие конкретных бактериальных таксонов в устрицах, тем самым изменяя состав и структуру их бактериомов. Однако лежащие в основе механизмы, особенно специфическая реакция бактериальных видов на факторы окружающей среды, требуют дальнейшего исследования.
Стохастические процессы формируют бактериом, связанный с устрицами. Совместное воздействие детерминистических и стохастических процессов на формирование микробного сообщества широко признано в области микробной экологии, но их относительная важность варьирует в зависимости от окружающей среды (Caruso et al., 2011; Wan et al., 2021; Riddley et al., 2025). Например, в пресноводном озере детерминистические процессы определяют формирование бактериопланктона (Wan et al., 2021), в то время как в эстуарии стохастические процессы, по-видимому, гораздо более важны, чем детерминистические процессы (Li et al., 2025). В нашем исследовании мы обнаружили, что бактериом устриц определяется стохастическими процессами. Это указывало на то, что экологический дрейф оказывает сильное влияние на состав бактериального сообщества устриц. Потенциальное объяснение этого состоит в том, что бактериом в устрицах происходит от фильтрации воды в окружающей среде, где бактериальное рассеивание пассивно обусловлено гидродинамическими силами воды. Это интенсивное гидрологическое перемешивание может вызывать сильный экологический дрейф в микробных сообществах (Bai et al., 2020). Действительно, состав бактериома, связанного с устрицами, в высокой степени зависит от бактериальных сообществ в окружающей среде — закономерность, согласующаяся с предыдущими результатами о том, что среда обитания хозяина является ключевым определяющим фактором микробиома у рыб (Kim et al., 2021). Поэтому на бактериом, связанный с устрицами, сильно влиял стохастический процесс. Более того, повышенный экологический дрейф может привести к более высокой скорости оборота, которая, как предполагается, способствует более высокому разнообразию сообщества. Это согласуется с нашим наблюдением, что устрицы из места D5, где стохастический процесс продемонстрировал более сильное влияние, показывают высокое разнообразие (богатство сообщества). Устрицы в этом месте также продемонстрировали более высокое количество маркерных бактерий по сравнению с другими (рисунок 2, LEfSe). Кроме того, хотя мы идентифицировали, что пространственное различие определяло гетерогенность окружающей среды, влияющую на структуру бактериома устриц, географическое расстояние этих четырёх мест отбора проб всё ещё невелико (их разница по высоте находилась в пределах 0,0309° с.ш., а разница по долготе — в пределах 0,0122° в.д.). В долгосрочной перспективе, следовательно, незначительные колебания факторов окружающей среды могут таким образом воздействовать только на ограниченное подмножество бактериальных видов — закономерность, обусловленная внутренними различиями локальной микросреды и функциональной избыточностью бактериальных сообществ в реагировании на средовые возмущения. Например, мы обнаружили, что солёность значительно коррелирована с Pseudoalteromonas и Vibrio, в то время как эти роды содержат многочисленные виды, способные реагировать на изменения окружающей среды. Поэтому мы считаем, что, несмотря на то что факторы окружающей среды влияют на обилие конкретных бактерий, это может не изменять долгосрочные экологические процессы, где более высокое биоразнообразие обеспечивает компенсаторные реакции, при которых снижение численности одного вида из-за неблагоприятных условий компенсируется другим функционально сходным видом, что было описано ранее (Fuhrman et al., 2015; Firkowski et al., 2022). Кроме того, с точки зрения хозяина, стабильный бактериом критически важен для выживания устриц, и стохастический процесс может представлять эффективный способ поддержания этой стабильности. В частности, экологический дрейф вызывает случайные колебания обилия видов, тем самым позволяя бактериому действовать в качестве буферных пулов, которые генерируют существенное разнообразие сообщества и устойчивость к средовым возмущениям (Loreau et al., 2021; Firkowski et al., 2022; Li et al., 2025). Для подтверждения этих результатов дальнейшие исследования должны включать больше образцов из большого географического расстояния и измерять более широкий диапазон факторов окружающей среды, связанных с ростом бактерий.
5 Заключение
В итоге наше исследование обнаружило, что географическое положение определяет вариации факторов окружающей среды, которые, в свою очередь, определяют структуру бактериома устриц. Примечательно, что формирование бактериального сообщества устриц зависит от стохастических процессов. Эти результаты предоставляют фундаментальные сведения о пан-бактериоме устриц из типичных районов хозяйства в Юэцине, Китай, одновременно проясняя взаимосвязь между факторами окружающей среды и бактериальным сообществом устриц и процесс формирования бактериального сообщества. Такие сведения углубляют наше понимание того, как условия окружающей среды влияют на устричное хозяйство, не только поддерживая целевую оптимизацию производства устриц, но и закладывая основу для проактивного управления устрицами и общественным здоровьем. Например, регулируя уровень солёности, мы можем исследовать стратегии регулирования бактериома устриц для подавления пролиферации патогенных Vibrio и снижения связанных с ними рисков инфекции. Наконец, рекомендуется непрерывный мониторинг бактериома, связанного с устрицами, поскольку это помогло бы осветить реакции на изменения окружающей среды (например, изменение климата) и обеспечить ранние предупреждения о загрязнении окружающей среды.
Дополнительный материал
Дополнительный материал к данной статье можно найти онлайн по адресу: https://www.frontiersin.org/articles/10.3389/fmicb.2026.1752237/full#supplementary-material
Lin H, Li X, Chen L, Zhang T, Yang F and Luo Y (2026) Insights into community profiles, environmental influence, and assembly mechanisms of oyster-associated bacteriome from Yueqing Bay, China via absolute quantitation by metabarcoding. Front. Microbiol. 17:1752237. doi: 10.3389/fmicb.2026.1752237
Перевод статьи «Insights into community profiles, environmental influence, and assembly mechanisms of oyster-associated bacteriome from Yueqing Bay, China via absolute quantitation by metabarcoding» авторов Lin H, Li X, Chen L, Zhang T, Yang F and Luo Y, оригинал доступен по ссылке. Лицензия: CC BY. Изменения: переведено на русский язык
Фото: Designed by Freepik




Комментарии (0)