

Почему одного генома мало: структурные вариации и скрытая жизнь генов кукурузы
Долгое время семейство CYP450 изучали на одном геноме — и упускали внутривидовое разнообразие. Пангеномный анализ 27 геномов кукурузы показал: семейство в целом консервативно, но локальные расширения и структурные вариации создают основу для адаптации.
Аннотация
Долгое время семейство CYP450 изучали на одном геноме — и упускали внутривидовое разнообразие. Суперсемейство растительных цитохромов P450 (CYP450) играет ключевую роль в метаболическом разнообразии и адаптации к окружающей среде; однако систематические анализы его внутривидовых структурных вариаций, динамики числа копий и эволюционных механизмов остаются ограниченными. Используя 27 высококачественных референсных геномов кукурузы, мы провели пангеномный анализ семейства ZmCYP450, идентифицировав 282 ортогруппы (OG) и 7 282 гена. В целом семейство оказалось консервативным, с локальными расширениями и признаками открытого пангенома.
Анализы PAV и CNV выявили обширные делеции генов и колебания числа копий за пределами коровых OG, отражая существенное внутривидовое структурное разнообразие. Анализ типов дупликаций и локальной коллинеарности показал, что проксимальные и дисперсные дупликации являются основными факторами, движущими расширение семейства. Анализ Ka/Ks показал, что большинство OG находятся под очищающим отбором, тогда как для части из них имеются свидетельства положительного отбора. Дальнейшая интеграция данных о структурных вариациях и транскриптомных данных показала, что SV могут влиять на функцию генов через такие механизмы, как делеция гена, усечение белка и ремоделирование регуляторных элементов, что указывает на двойную роль потенциальной потери функции и модуляции экспрессии. Несмотря на относительно стабильное общее число копий, категории структурных вариантов («типичные», «атипичные» и «отсутствующие») широко распространены, и уровни экспрессии не всегда коррелируют с числом копий, что указывает на сложные регуляторные паттерны. Анализ тканевой специфичности выявил большое количество высокоспецифичных генов ZmCYP450, участвующих во вторичном метаболизме и ответах на воздействия окружающей среды, с различными профилями экспрессии в разных генетических фонах. Данное исследование обеспечивает комплексный пангеномный взгляд на структурные вариации, эволюционные паттерны и регуляцию экспрессии в семействе ZmCYP450, создавая основу для будущих функциональных исследований и улучшения признаков кукурузы.
1 Введение
Ферменты цитохрома P450 представляют собой суперсемейство гемовых белков с мультифункциональной оксидазной активностью, широко распространённых у животных, растений, микроорганизмов и грибов (Mao и др., 2013). Эти ферменты обычно локализованы в мембранных структурах, таких как эндоплазматический ретикулум, митохондрии, пластиды и аппарат Гольджи. Выступая в качестве терминальных оксидаз, они участвуют в различных биосинтетических реакциях, играют широкую роль во множестве метаболических процессов растений и демонстрируют значительное разнообразие в распознавании субстратов и каталитических функциях. Впервые эти ферменты были обнаружены у хлопка в 1969 году (Frear и др., 1969), и с тех пор было показано, что они играют ключевую роль во вторичном метаболизме, регуляции гормонов и ответах на воздействия окружающей среды.
В последние годы исследования показали, что семейство CYP450 претерпело значительную экспансию у растений. Хотя структура его белков высококонсервативна, разные члены демонстрируют огромные различия в функциях, широко участвуя в первичных и вторичных метаболических процессах растений. Исследования подтвердили, что растительный CYP450 играет ключевую роль в различных биологических процессах, включая синтез вторичных метаболитов (таких как фенилпропаноиды, терпеноиды и алкалоиды), метаболическую регуляцию растительных гормонов (таких как абсцизовая кислота, гиббереллин и брассинолид) и ответ на абиотические стрессы, такие как засуха, засоление и низкотемпературный стресс (Schuler и Werck-Reichhart, 2003). Поэтому его называют «универсальным катализатором» (Schuler и Werck-Reichhart, 2003). У Catharanthus roseus паттерн экспрессии CYP72A1 высоко согласован с экспрессией TDC и STR в пути синтеза индольных алкалоидов. Эксперименты по гетерологичной экспрессии подтвердили, что CYP72A1 может катализировать окислительное расщепление логанина с образованием силимарина, что стало важным узлом в регуляции вторичного метаболического синтеза (Irmler и др., 2000). Аналогично, сверхэкспрессия CYP78A5 может вызывать изгибание стебля и аномальное развитие цветков, что может быть связано с регуляцией биосинтеза лигнина через фенилпропаноидный путь, тем самым влияя на характеристики клеточной стенки и рост клеток (Zondlo и Irish, 1999). Кроме того, функциональное исследование подсемейства CYP709B показало, что CYP709B3 демонстрировал значительный ответ на солевой стресс и АБК, что свидетельствует о его ключевой роли в процессе адаптации к стрессу (Mao и др., 2013). Таким образом, семейство CYP450 играет важную роль в росте, развитии растений и адаптации к окружающей среде.
С развитием молекулярной биологии и омиксных технологий был достигнут значительный прогресс в систематической идентификации и функциональном изучении семейства CYP450 у различных растений. В исследованиях немодельных растений исследователи постепенно раскрыли центральную роль CYP450 в метаболических сетях путём интеграции геномных и метаболомных данных. TingYang и др. идентифицировали 180 членов SmCYP в геноме баклажана и подтвердили значительную тканевую специфичность экспрессии семейства с помощью qRT-PCR. В то же время в сочетании с метаболомными данными они подтвердили важную роль SmCYP73A1, SmCYP75A и SmCYP98A1 в синтезе флавоноидов (Yang и др., 2024). Аналогично, Chen и др. проанализировали транскриптом 248 генов CYP450 в геноме хризантемы. Результаты показали, что большинство членов проявляли специфическую экспрессию в листьях, стеблях и корнях, и подтвердили, что 36 генов, таких как CiCYP706–5 и CiCYP71–50, критичны в биосинтезе летучих органических соединений (Chen и др., 2025). На техническом уровне Xu и др. впервые использовали микрочиповую технологию для систематической оценки 273 членов семейства у резуховидки Таля (Arabidopsis thaliana (L.) Heynh.). Оптимизированный дизайн зондов снизил перекрёстные помехи между гомологичными генами и значительно повысил точность обнаружения экспрессии генов P450 (Xu и др., 2001). Кроме того, методы сравнительной геномики и системной биологии дополнительно раскрыли синергетическую регуляторную сеть CYP450: Li и др. построили сеть коэкспрессии генов (WGCNA) и обнаружили, что члены, коэкспрессирующиеся с липоксигеназой (LOX) и 12-оксофитодиеновой кислотой редуктазой (OPR), считаются участвующими в опосредованном жасмоновой кислотой (ЖК) стрессовом ответе; гены, коэкспрессирующиеся с такими ключевыми компонентами, как PAL, CCR и COMT, тесно связаны с процессом отложения лигнина (Li и Wei, 2020). Эти многомерные исследования не только описывают функциональную панораму семейства CYP450, но и предоставляют важную теоретическую основу для понимания функциональной дифференциации и механизмов метаболической эволюции семейства в долгосрочной эволюции растений.
Кукуруза (Zea mays L.) является не только важной зерновой культурой, но и модельным видом растений для генетических, цитологических, геномных и молекулярных исследований. Она обладает сложной геномной структурой и богатым генетическим разнообразием (Li и др., 2025). Хотя существующие исследования провели предварительную идентификацию и функциональное прогнозирование семейства ZmCYP450 (Chakraborty и др., 2023), они часто сосредоточены на транскриптомном анализе отдельных тканей или конкретных сортов и не имеют систематического сравнения между сортами, что в определённой степени ограничивает наше глубокое понимание эволюционных закономерностей семейства ZmCYP450 и его связи с фенотипической изменчивостью и экологической адаптивностью кукурузы. Особенно в контексте множественных генетических фонов различия в регуляции экспрессии и структуре генов CYP450 могут быть важным фактором, способствующим их функциональной дифференциации, но соответствующие исследования в этой области всё ещё относительно редки. Кроме того, как ключевая генетическая основа, влияющая на функцию и экспрессию генов, структурные вариации (SV) широко присутствуют в геноме кукурузы (Hufford и др., 2021), но их характеристики распределения и функциональное значение в семействе ZmCYP450 всё ещё недостаточно систематически проанализированы. Поэтому интеграция информации о геномной структуре и транскриптомной информации на основе множественных сортов посредством комплексного анализа семейства ZmCYP450 поможет раскрыть, как семейство поддерживает динамический баланс между функциональной консервацией и экспрессионным разнообразием в ходе эволюции, и дополнительно прояснить его потенциальный механизм в росте, развитии и стрессовом ответе кукурузы.
В этом контексте данное исследование будет отвечать на следующие вопросы: в сложных геномных контекстах и разнообразных генетических средах как семейство ZmCYP450 у кукурузы поддерживает стабильность своих основных функций, одновременно достигая разнообразия в структуре генов и паттернах экспрессии? Кроме того, раскрывают ли различия в экспрессии и структурные вариации генов ZmCYP450 среди различных сортов кукурузы потенциальные механизмы, лежащие в основе их адаптивной эволюции?
Соответственно, данное исследование опиралось на передовые парадигмы в области пангеномики растений (Zhao и др., 2026). На основе 27 высококачественных референсных геномов кукурузы мы систематически интегрировали исследовательские методы — включая идентификацию ортогрупп, анализ эволюционного и селективного давления, филогенетический анализ и масштабное сканирование структурных вариаций (SV) — на пангеномном уровне впервые, комплексно проясняя эволюционную динамику и характеристики функциональной дифференциации семейства ZmCYP450. На этой основе мы объединили данные экспрессии в нескольких тканях с различиями в экспрессии между сортами, чтобы систематически проанализировать экспрессионное разнообразие этого семейства и исследовать потенциальное влияние структурных вариаций на его функцию. Данное исследование не только предоставляет новую теоретическую основу для прояснения молекулярных механизмов роли семейства ZmCYP450 в метаболической регуляции и стрессовом ответе у кукурузы, но и предлагает ценные гены-кандидаты и молекулярные мишени для улучшения признаков кукурузы.
2 Материалы и методы
2.1 Получение геномных данных и идентификация генов ZmCYP450
Для систематической идентификации генов семейства ZmCYP450 по пангеному кукурузы были извлечены файлы общегеномных белковых последовательностей 27 репрезентативных инбредных линий кукурузы из базы данных MaizeGDB (https://maizegdb.org/) (Дополнительная таблица 1). Общегеномная идентификация была выполнена с использованием стратегии поиска на основе скрытой марковской модели (HMM) по характеристикам структурных доменов. Сначала из базы данных Pfam (https://www.ebi.ac.uk/interpro/entry/pfam/PF00067/) был загружен профиль HMM, соответствующий коровому домену цитохрома P450 (PF00067). Затем программа hmmsearch из пакета программного обеспечения HMMER (v3.3.2) была развёрнута в среде Ubuntu (v22.04.5) для масштабного скрининга против локальных белковых баз данных 27 сортов кукурузы со строгим порогом статистической E-величины, установленным на уровне 1×10⁻⁵. Учитывая распространённость множественных транскриптов, генерируемых альтернативным сплайсингом в геноме кукурузы, был реализован строгий рабочий процесс дедупликации для устранения избыточности в последующих анализах. Все последовательности-кандидаты были обратно сопоставлены с соответствующими геномными локусами (генный локус); для множественных изоформ, происходящих из одного локуса, сохранялась только самая длинная белковая последовательность (самая длинная изоформа) в качестве уникального представителя этого гена. Наконец, консервативная база данных доменов NCBI (https://www.ncbi.nlm.nih.gov/cdd/) была использована для оценки и проверки целостности доменов всех первично отобранных белков-кандидатов. Для комплексного сохранения всего спектра генетических эволюционных вариаций в пангеноме кукурузы — включая нестабильные фрагменты, подвергающиеся быстрой эволюции или псевдогенизации — на этом первичном этапе идентификации была принята инклюзивная стратегия сохранения. В частности, последовательности сохранялись при условии, что они проходили строгий статистический порог HMMER (E ≤ 1×10⁻⁵) и содержали характерные консервативные домены, связанные с цитохромом P450. В результате была определена и составлена комплексная пангеномная матрица генов-кандидатов ZmCYP450 по 27 сортам кукурузы (Дополнительная таблица 2).
2.2 Идентификация ортогрупп и пангеномная характеристика
Для изучения гомологичных связей между 27 сортами кукурузы и построения пангенома мы использовали OrthoFinder (v2.5.5) для анализа ортогрупп. В среде Ubuntu (v22.04.5) был вызван алгоритм DIAMOND для выполнения выравнивания всех против всех белковых последовательностей, и алгоритм MCL использовался для кластеризации генов в ортогруппы на основе сходства последовательностей. После завершения кластеризации из выходного файла извлекается матрица подсчёта генов для каждого сорта. Согласно частоте распределения каждой ортогруппы в 27 геномах, использовались критерии классификации Tong и др. (Tong и др., 2025). Эти 282 OG были разделены на четыре эволюционных компонента: Core OG (присутствуют во всех 27 геномах), Soft-core OG (присутствуют в ≥ 90% из 27 геномов), Dispensable OG (присутствуют в 2%–90% из 27 геномов) и Private OG (присутствуют только в одном из 27 геномов). Наконец, матрица числа копий преобразуется, и многомерная пузырьковая диаграмма визуализируется с использованием пакетов tidyverse и ggnewscale в R (v4.5.3).
2.3 Филогенетический анализ семейства генов ZmCYP450
Для филогенетического анализа использовался набор данных, включающий 282 репрезентативные белковые последовательности P450 кукурузы (по одной, извлечённой в качестве представителя из каждой из 282 ортогрупп) и 272 референсные последовательности Arabidopsis. Для определения репрезентативной последовательности каждой ортогруппы выбиралась последовательность с наибольшей структурной целостностью среди тех, что имели ≥95% целостности в консервативной коровой области. Множественное выравнивание объединённых последовательностей выполнялось с использованием MAFFT (v7.490) с последующей автоматической обрезкой с помощью TrimAl (v1.4.1) в режиме «-automated1» для удаления низкокачественных областей выравнивания и сохранения консервативных коровых колонок. Референсные последовательности белков P450 Arabidopsis были извлечены с домашней страницы цитохрома P450 (https://www.p450.kvl.dk/p450.shtml). Затем было построено филогенетическое дерево максимального правдоподобия с использованием IQ-TREE2 (v2.1.2) с автоматическим выбором наилучшей модели замены аминокислот встроенной программой ModelFinder. Поддержка ветвей оценивалась с использованием анализа ультрабыстрого бутстрэпа (UFBoot) с 1000 повторами.
Одновременно в среде Ubuntu (v22.04.5) выполнялся локальный поиск BLASTP (v2.16.0) с использованием набора данных белков P450 Arabidopsis в качестве референсной базы для запроса последовательностей-кандидатов кукурузы с порогом E-величины ≤ 1e-5. Затем необработанный вывод BLAST фильтровался и обрабатывался с использованием пакета Tidyverse в R (v4.5.3). Для каждого гена-запроса сохранялось только лучшее совпадение с Arabidopsis (выравнивание с наивысшим Bit-score). Соответствующая информация о семействе CYP и клане затем извлекалась из этих лучших совпадений для вспомогательной проверки функциональной аннотации и категоризации подсемейств.
2.4 Анализ вариации присутствия-отсутствия и вариации числа копий генов ZmCYP450
На основе матрицы числа копий генов (Дополнительная таблица 3), полученной путём кластеризации с использованием OrthoFinder (v2.5.5), мы использовали пакет ComplexHeatmap и его зависимый пакет Circlize в R (v4.5.3) для создания панорамных тепловых карт PAV и CNV для 282 OG семейства ZmCYP450. Тепловая карта PAV представляет статус присутствия/отсутствия через бинаризацию, тогда как тепловая карта CNV отображает вариации числа копий с использованием непрерывного цветового градиента, в конечном итоге визуализируя тепловые карты семейства ZmCYP450 по 27 сортам. Для проверки паттернов PAV и CNV, выведенных из занятости ортогрупп, были выбраны две репрезентативные PAV-ортогруппы и две репрезентативные CNV-ортогруппы. Для PAV-локусов использовались наборы данных структурных вариаций (SV), сгенерированные из общегеномных сравнений, для проверки того, перекрывали ли события делеции целевые генные области. Для CNV-локусов координаты генов и информация о соседних генах извлекались из файлов аннотации генома (GFF3), а локальные отношения микросинтении визуализировались в R (v4.5.3) с использованием пакетов ggplot2 и gggenes. Сходство последовательностей между дуплицированными копиями дополнительно оценивалось на основе попарной идентичности белков. Эти анализы использовались для определения того, соответствовали ли выведенные сигналы PAV и CNV подлинным геномным структурным вариациям, а не артефактам аннотации.
2.5 Репликация генов, коллинеарность и эволюционный анализ
В данном исследовании паттерны дупликации генов ZmCYP450 у 27 сортов кукурузы были систематически классифицированы. Используя B73RefGen_v5 в качестве референса, гомология идентифицировалась, а координаты GFF3 стандартизировались с помощью BLASTp (v2.16.0) с E-величиной ≤ 10-5 и идентичностью ≥ 80%. На основе их пространственного распределения 7282 гена были разделены на пять типов дупликации: WGD, TD, PD, TRD и DSD. Коллинеарность между сортами визуализировалась с использованием пакета ggplot2. Наконец, 282 ортогруппы семейства ZmCYP450 были категоризированы в три эволюционных класса на основе занятости: Core, Soft-core и Dispensable.
2.6 Расчёт Ka/Ks
Мы извлекли соответствующие белковые последовательности и кодирующие последовательности (CDS) из гомологичных геномов. Сначала мы выполнили множественное выравнивание белковых последовательностей с использованием MAFFT (v7.490), а затем сопоставили результаты выравнивания белков обратно с последовательностями CDS с использованием PAL2NAL (v14.1) для построения выравниваний нуклеотидов на уровне кодонов. Для каждого члена внутри OG мы построили все-против-всех попарные комбинации. На основе этого мы использовали модель YN00 в KaKs Calculator (v3.0) для расчёта скорости несинонимичных замен (Ka), скорости синонимичных замен (Ks) и их отношения (Ka/Ks) для каждой пары гомологичных генов. Для каждого OG значения Ka/Ks всех валидных пар гомологичных генов внутри группы агрегировались, и медиана использовалась в качестве репрезентативного показателя селективного давления для этой группы, чтобы смягчить влияние экстремальных соотношений Ka/Ks на результаты. Наконец, в среде R (v4.5.3) распределения Ka/Ks каждого OG визуализировались с использованием ggplot2 и ggridges, и генерировались гребневые диаграммы для иллюстрации различий в селективном давлении между различными группами.
2.7 Анализ структурных вариаций и корреляции экспрессии генов со структурой
С использованием MUMmer (v4.0.0beta2) геномы 26 инбредных линий кукурузы индивидуально выравнивались против референсного генома B73RefGen_v5 для выполнения общегеномных сравнений. Структурные варианты (SV) идентифицировались на основе областей, показывающих различия в выравнивании, и только вставки (INS) и делеции (DEL) длиной ≥50 п.н. сохранялись для последующих анализов с требованием, чтобы выровненные блоки имели идентичность ≥80%. С использованием геномных координат и файлов аннотации генов извлекались SV, перекрывающиеся с кодирующими последовательностями (CDS) или 2-т.п.н. вышележащими промоторными областями генов ZmCYP450. Для минимизации потенциальных ложноположительных результатов, возникающих из-за различий в сборке генома, сохранялись только SV, расположенные в аннотированных генных областях и чётко идентифицируемые из общегеномных выравниваний. Полученный набор данных SV впоследствии использовался для сравнения структуры генов, анализа экспрессии генов, оценки белковых последовательностей и анализа цис-регуляторных элементов. На уровне экспрессии, объединяя транскриптомные данные RNA-seq из пяти тканей, образцы были разделены на две группы на основе статуса SV: «С SV» и «Без SV». Здесь «С SV» относится к генам со структурными вариациями в целевой генной области, тогда как «Без SV» относится к генам, в которых соответствующие SV не были обнаружены. Уровни экспрессии TPM анализировались в среде R (v4.5.3), и для сравнения различий в уровне экспрессии между двумя группами использовался ранговый критерий Уилкоксона для оценки влияния структурных вариантов на экспрессию генов. На уровне белковой структуры белковые последовательности генов-кандидатов извлекались из B73 и соответствующих мутантных линий, и выполнялся анализ выравнивания последовательностей для оценки потенциального влияния структурных вариантов на целостность белка. На регуляторном уровне PlantCARE (https://bioinformatics.psb.ugent.be/webtools/plantcare/html/) использовался для прогнозирования цис-действующих элементов в промоторной области, анализа приобретения и потери регуляторных элементов до и после SV, и визуализации распределения и характеристик последовательностей регуляторных элементов с использованием ggplot2 и ggseqlogo в среде R (v4.5.3).
2.8 Идентификация и анализ корреляции экспрессии типичных и атипичных генов
Сначала белковые последовательности из 27 сортов кукурузы сканировались на консервативные мотивы CYP450 с использованием пользовательских скриптов, реализованных в R (v4.5.3). На основе длины белка и целостности характерных мотивов CYP450, особенно высококонсервативного гем-связывающего мотива, члены семейства ZmCYP450 были классифицированы на три категории. «Типичные» гены были определены как белки, сохраняющие полную архитектуру домена CYP450 и интактный гем-связывающий мотив. «Атипичные» гены были определены как белки, показывающие структурное усечение или потерю одного или нескольких ключевых мотивов/доменов CYP450, включая частичное нарушение гем-связывающей области. «Отсутствующие» гены представляли события потери гена, при которых соответствующий ортологичный член CYP450 отсутствовал в данном геноме и не могли быть обнаружены распознаваемые структурные признаки CYP450. Для оценки вклада структурной целостности генов в экспрессионное разнообразие на популяционном уровне были собраны матрицы экспрессии TPM из пяти репрезентативных тканей по 27 инбредным линиям кукурузы. Для каждого образца отдельно количественно определялось число типичных и атипичных генов, и выполнялся корреляционный анализ Пирсона для изучения связи между типичными генами и общим уровнем экспрессии соответствующего семейства ZmCYP450. Тканеспецифичные паттерны визуализировались с использованием функции фасетирования, реализованной в пакете ggplot2 в R (v4.5.3).
2.9 Анализ экспрессии RNA-seq
Необработанные данные RNA-seq были получены из EMBL-EBI (https://www.ebi.ac.uk) и из базы данных NCBI SRA (http://www.ncbi.nlm.nih.gov/sra). Номера доступа для каждого набора данных RNA-seq, использованного в данном исследовании, перечислены в Дополнительной таблице 4. В частности, мы проанализировали пять основных тканей (лист, побег, корень, метёлка и початок) по 27 сортам кукурузы. В данном исследовании мы сначала идентифицировали ортогруппы ZmCYP450 с обнаруживаемой экспрессией хотя бы в одной ткани из 27 сортов кукурузы. Матрицы экспрессии для всех тканей были стандартизированы и обработаны единообразно, сохраняя только OG ZmCYP450 с обнаруживаемой экспрессией (TPM > 0) хотя бы в одной ткани и исключая гены без экспрессии ни в одной ткани. Внутри каждой ортогруппы ген с наивысшим значением τ был выбран в качестве репрезентативного гена для этой OG, чтобы отразить тканеспецифичные характеристики экспрессии этого семейства генов. Формула расчёта следующая (Kryuchkova-Mostacci и Robinson-Rechavi, 2017):
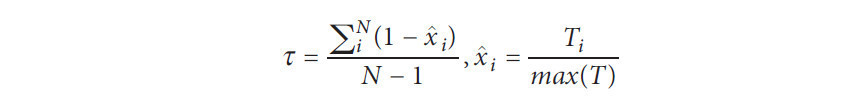
Где N — число тканей, Ti представляет уровень экспрессии (TPM) гена в ткани i, а max(T) — максимальное значение экспрессии этого гена по всем тканям. xi — нормализованное значение экспрессии ткани i, масштабированное в диапазон [0,1]. Основываясь на предыдущих исследованиях (Lüleci и Yılmaz, 2022), мы определяем пороги на основе общего распределения значений τ по генам и классифицируем их по квантилям на основе этого распределения. Для оценки экспрессионной пластичности генов из различных функциональных категорий внутри популяции мы рассчитали коэффициент вариации (CV = SD/Mean) экспрессии генов по 27 сортам внутри каждого класса τ, отсортировали гены по значению CV и выбрали топ-7 ортогрупп на основе CV их репрезентативного гена из каждого класса в качестве репрезентативных генов для иллюстрации их характеристик экспрессионной изменчивости на популяционном уровне. Кроме того, мы использовали скрипт R для специфической идентификации класса ортогрупп, содержащих множественные паралогичные локусы в пределах одного генома кукурузы. Для этих ортогрупп были извлечены и выровнены матрицы транскриптомной экспрессии из различных тканей и стадий развития для характеристики профилей экспрессии отдельных паралогичных генов в различных тканях.
3 Результаты
3.1 Состав и структурное разнообразие семейства ZmCYP450 с пангеномной точки зрения
3.1.1 Идентификация и композиционные характеристики семейства ZmCYP450 в пангеноме кукурузы
Для комплексного отражения обширного генетического разнообразия внутри кукурузы (Zea mays L.) в данном исследовании было проанализировано в общей сложности 27 высококачественных референсных геномов хромосомного уровня. Эти материалы представляют множественные измерения генетической изменчивости, охватывая основные субпопуляции, такие как stiff-stalk, non-stiff-stalk и различные тропические/умеренные линии, а также широкий спектр рыночных классов, включая жёлтую/белую зубовидную кукурузу, кремнистую кукурузу, попкорн и сахарную кукурузу. Примечательно, что эти материалы демонстрируют значительную изменчивость в толерантности к экологическим стрессам, устойчивости к болезням и ключевых агрономических признаках, таких как время цветения и архитектура растения. Хотя некоторые классические геномы широко используются в исследованиях кукурузы, для обеспечения высокой сопоставимости и точности общегеномных анализов мы предпочтительно выбрали 27 высококачественных геномов, выпущенных на MaizeGDB (https://maizegdb.org/), тем самым избегая ошибок, возникающих из-за различий в технической аннотации. Следовательно, эти 27 геномов как высокостандартизированный набор данных достаточны для точного представления генетического разнообразия и функциональной изменчивости внутри вида кукурузы (подробная классификация и информация об источниках представлены в Дополнительной таблице 1). Используя OrthoFinder (v2.5.5), мы затем идентифицировали ортогруппы (OG) семейства генов ZmCYP450 из общегеномных последовательностей этих 27 сортов для систематического анализа их общегеномных характеристик распределения, подсчитали число копий генов каждой OG в каждом сорте и в конечном итоге визуализировали в виде пузырьковой диаграммы (Рисунок 1A). В данном исследовании мы идентифицировали 282 OG и 7282 гена ZmCYP450 (Дополнительная таблица 2). Большинство OG были сосредоточены в диапазоне 1–5 копий у различных сортов, но проявляли значительную сортоспецифичную экспансию у таких сортов, как Ms71 и CML322, с более чем 5 или даже более чем 10 копиями. В целом OG семейства демонстрировали паттерн общей консервативности и локальной экспансии. Кривая накопления пангенома показала, что с увеличением числа геномов масштаб пангенома постепенно расширялся — от быстрого роста на ранней стадии до постепенного замедления темпов роста на поздней стадии — и не достиг полного насыщения. Напротив, число коровых OG постепенно уменьшалось с увеличением числа образцов (Рисунок 1B). Далее мы классифицировали 282 OG, из которых 145 были коровыми OG, составляя наивысшую долю в семействе ZmCYP450 (63,8% от общего числа генов), 61 были soft-core OG (22,4% от общего числа генов) и 76 были dispensable OG, составляя наименьшую долю в семействе (13,8% от общего числа генов). Private OG не были обнаружены. Все 27 сортов кукурузы содержали три типа OG ZmCYP450, и число генов, содержащихся в каждом сорте, составляло 260–282 (Рисунок 1C). Большинство генов в коровых OG, составляющих основную часть семейства, обладают транскрипционной активностью в 1–5 тканях, что отражает поддержание ими стабильности базального метаболизма (Thorrez и др., 2011). Гены, принадлежащие к dispensable OG, демонстрировали значительный тканеспецифичный паттерн экспрессии, и их экспрессия была ограничена определёнными органами или стадиями развития; soft-core OG находятся между ними, обладая определённой степенью консервативности (Рисунок 1D).
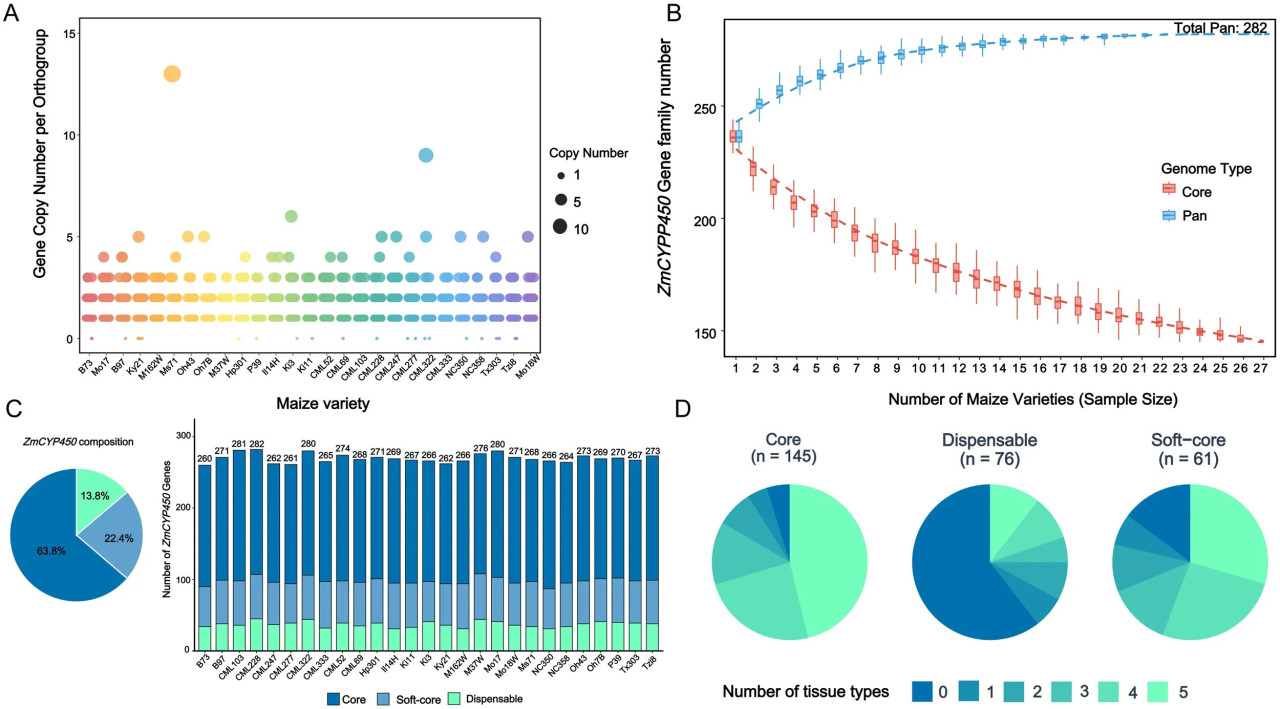
Рисунок 1 Пангеномная характеристика ортогрупп ZmCYP450. (A) Ландшафт экспансии семейства генов ZmCYP450 по пангеному кукурузы. Каждый пузырёк представляет ортогруппу, позиции упорядочены по сортам кукурузы. Размер пузырька соответствует числу копий гена; более крупные пузырьки указывают на более высокое число копий для данной OG у конкретного сорта. (B) Кривые накопления пангенома и корового генома. Синяя и красная кривые иллюстрируют тенденцию экспансии пангенома и изменения числа коровых OG соответственно по мере увеличения числа отобранных геномов. (C) Пропорциональное распределение коровых, soft-core и dispensable OG внутри семейства ZmCYP450 и их распределение по 27 сортам кукурузы; разные цвета представляют различные категории OG. (D) Тканеспецифичные профили экспрессии для каждой категории OG. Проанализированные 5 тканей включают початок, лист, корень, побег и метёлку.
3.1.2 Варианты присутствия-отсутствия и динамика числа копий в семействе ZmCYP450
Мы построили визуальную тепловую карту PAV (вариация присутствия/отсутствия) и CNV (вариация числа копий) на основе 282 OG 27 сортов кукурузы. Из тепловой карты PAV можно наблюдать, что, за исключением коровых OG, CML322, CML333 и M37W не проявляли делеции генов в soft-core OG, что отражает их высокую геномную целостность (Рисунок 2A). В dispensable OG наблюдается высокая доля делеций у всех сортов. Это значительное различие между сортами отражает изменчивость семейства генов ZmCYP450, и эти делеции могут приводить к различиям в содержании генома (Della Coletta и др., 2021).
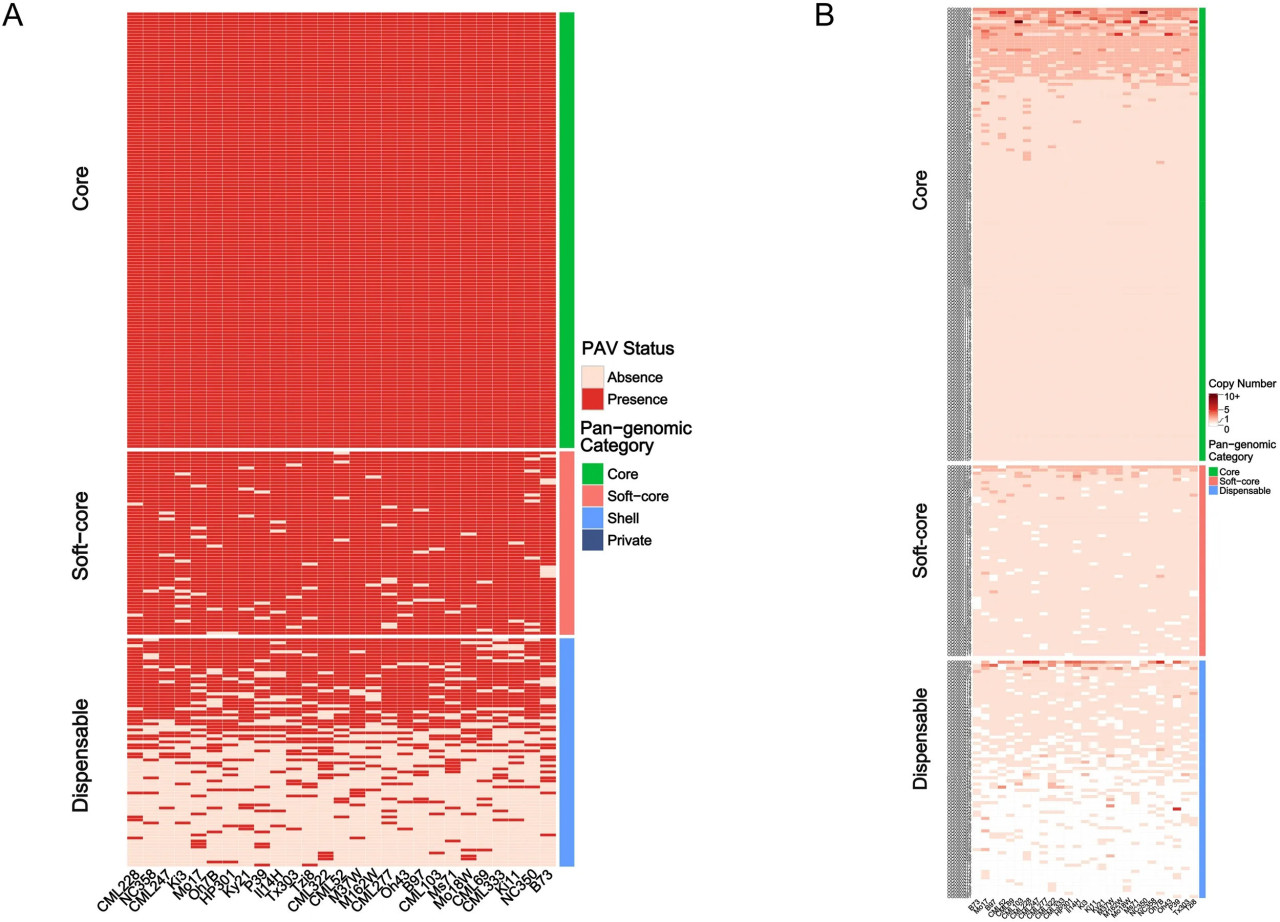
Рисунок 2 Анализ PAV и CNV ортогрупп ZmCYP450. (A) Тепловая карта показывает присутствие и отсутствие 282 ортогрупп ZmCYP450 по 27 сортам кукурузы. Это семейство было классифицировано на коровые OG, soft-core OG и dispensable OG. (B) Тепловая карта CNV ортогрупп ZmCYP450 в геноме кукурузы. Данный рисунок иллюстрирует паттерны вариации числа копий (CNV) OG ZmCYP450 по 27 сортам кукурузы; более тёмные области указывают на более высокое число копий, тогда как более светлые области указывают на более низкое число копий.
Анализ пангеномной матрицы показал, что гены-члены суперсемейства ZmCYP450 были распределены по 282 ортогруппам, при этом число занятых OG на геном колебалось от 260 до 282 (Рисунок 2B). С точки зрения совокупного физического числа копий генов общий размер репертуара ZmCYP450 продемонстрировал существенную изменчивость среди 27 линий. Сорт CML228 содержал наиболее расширенную линию с общим числом 282 копии генов, что указывает на значительную линия-специфичную экспансию. Напротив, референсная линия B73 обладала относительно сжатой геномной архитектурой, сохраняя только 260 физических копий генов, и разница в числе копий между ними составила около 8%. В сочетании с анализом цветового градиента большинство коровых OG сохраняли низкокопийное состояние у всех сортов, и их паттерны CNV также демонстрировали высокую степень согласованности. Конечно, есть также некоторые OG (например, OG0000000 ~ OG0000005), которые сохраняют высокое число копий у большинства или даже всех сортов. По сравнению со стабильным поведением коровых OG, dispensable OG демонстрировали наиболее выраженные колебания числа копий, например, масштабные делеции OG0000269, OG0000270, OG0000271 и других групп у большинства сортов, что отражает сильную сортоспецифичность. Напротив, такие группы, как OG0000003 и OG0000253, демонстрировали высококопийное состояние у конкретных сортов, таких как CML247, CML228 и P39. Однако soft-core OG как промежуточная переходная категория в целом не демонстрировали значительных колебаний числа копий, лишь небольшое число делеций.
Для проверки того, отражают ли наблюдаемые паттерны PAV и CNV подлинную геномную изменчивость, а не артефакты аннотации, мы выбрали две репрезентативные PAV-ортогруппы и две репрезентативные CNV-ортогруппы для валидации. Используя данные SV, мы точно картировали координаты целевых генов у репрезентативных сортов. Результаты показали, что для PAV-локусов масштабные делеции, охватывающие всю кодирующую область, присутствовали у образцов, где гены отсутствовали. В частности, OG0000266 (Zm00001eb402920) и OG0000254 (Zm00001eb052660) показывали делеции размером 4510 п.н. и 649 п.н. на хромосомах 9 и 1 соответственно у CML228, приводящие к отсутствию гена. Для CNV-ортогрупп (Рисунок 3A; Дополнительная таблица 5) OG0000005 (Zm00001eb402820) и OG0000027 (Zm00001eb159220) непосредственно продемонстрировали подлинную вариацию числа копий: OG0000005 показала значительную экспансию числа копий у CML228; тогда как B73 нёс только одну копию, CML228 содержал три тандемно расположенные гомологичные копии в пределах консервативного блока микросинтении, что свидетельствует о том, что эта экспансия произошла в результате локальной тандемной дупликации. OG0000027 показала умеренное увеличение числа копий: одна копия у B73 и две копии у CML228; обе копии были расположены в пределах консервативного блока микросинтении, и соседние гомологичные гены сохраняли консервативное расположение, что согласуется с недавним событием локальной дупликации (Рисунок 3B, Дополнительная таблица 6). В совокупности эти результаты указывают на то, что паттерны PAV и CNV, выведенные из занятости ортогрупп, непосредственно подтверждаются геномными структурными вариациями и отражают подлинное генетическое разнообразие в пангеноме кукурузы, а не вызваны различиями в аннотации. Эти валидационные анализы обеспечивают надёжную основу для последующих функциональных исследований структурных вариаций и предоставляют прочные доказательства для понимания экспансии и разнообразия семейства генов ZmCYP450.
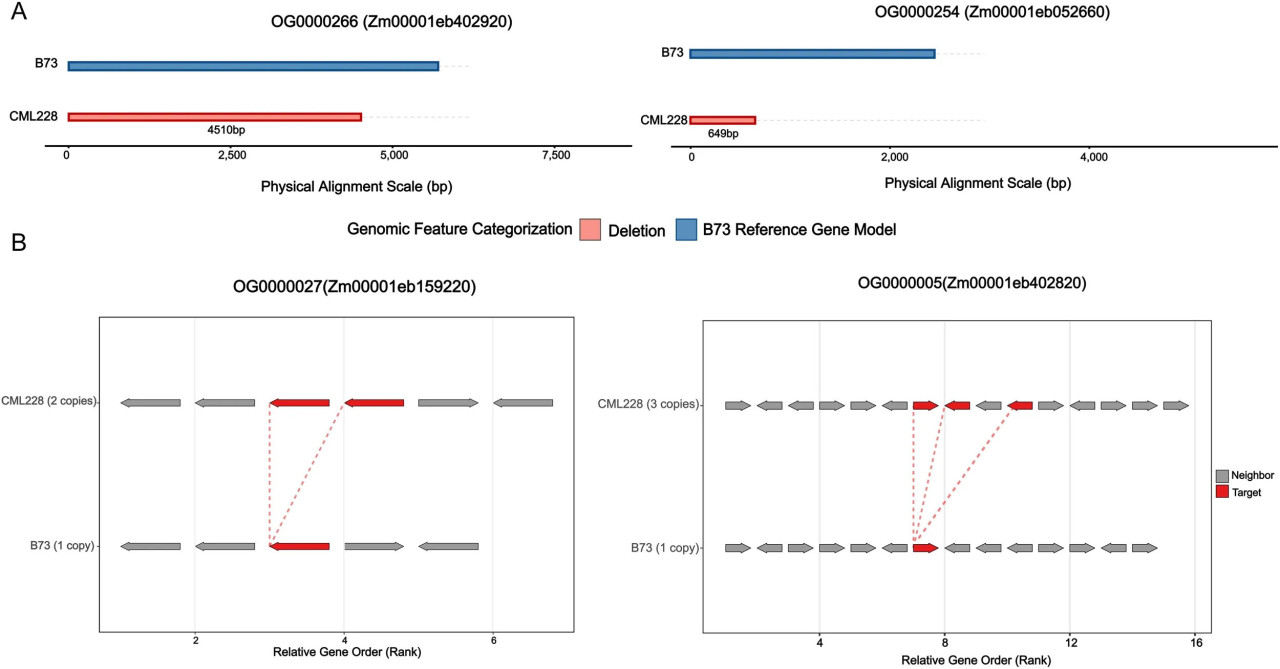
Рисунок 3 Структурная валидация вариаций присутствия-отсутствия (PAV) и вариаций числа копий (CNV) для целевых ортогрупп между B73 и CML228. (A) Профили физического выравнивания PAV-опосредованных нарушений генов в OG0000266 и OG0000254. Синие полосы представляют референсные генные модели B73, а красные полосы указывают интервалы геномных делеций, идентифицированные у CML228, с соответствующими размерами делеций (4510 п.н. и 649 п.н.), нанесёнными на шкалу физического выравнивания (п.н.). (B) Анализ микросинтении и геномного окружения, подтверждающий экспансию числа копий генов в OG0000027 и OG0000005. Ось x указывает относительный порядок генов (ранг). Красные и серые стрелки представляют целевые гены и соседние гены соответственно. Пунктирные линии прослеживают ортологичные связи, иллюстрируя переходы дозы генов от одной копии у B73 к множественным копиям (2 копии и 3 копии соответственно) у CML228.
3.2 Эволюционные механизмы, лежащие в основе экспансии и диверсификации семейства генов ZmCYP450
3.2.1 Паттерны экспансии и характеристики коллинеарности семейства ZmCYP450, обусловленные различными типами дупликации
События полиплоидии обеспечивают важное генетическое сырьё для биологической эволюции, способствуют перестройке генома растений и увеличивают структурную изменчивость, тем самым играя ключевую роль в эволюции растений (Wang и др., 2024). Анализируя происхождение дупликации генов ZmCYP450, мы классифицировали их на различные типы дупликации, включая тандемную дупликацию (TD), проксимальную дупликацию (PD), общегеномную дупликацию (WGD), дисперсную дупликацию (DSD) и транспозонную дупликацию (TRD) (Рисунок 4). Результаты показывают, что по всему геному PD составляет наивысшую долю (44,4%), за ней следуют DSD (28,6%), WGD (18,3%) и TD (7,9%), тогда как TRD составляет наименьшую долю (0,8%) (Рисунок 5B). Объединяя эти результаты с общегеномной точечной диаграммой коллинеарности, мы наблюдали, что TD и PD в основном сосредоточены вблизи диагонали, показывая локализованные кластеры высокой плотности. Напротив, WGD и DSD демонстрируют более дисперсный паттерн распределения, охватывающий множество хромосомных областей. Кроме того, сигналы TRD в основном распределены вдали от диагонали, показывая точечное распределение по хромосомам или на большие расстояния. Объединение различных точечных диаграмм выявляет отдельные длинные сегменты коллинеарности, которые могут происходить из исторических событий общегеномной дупликации и были сохранены (Tang и др., 2008). Примечательно, что в сравнениях B73 против Mo17 и B73 против Oh7B мы наблюдали сверхдлинные сегменты коллинеарности WGD и DSD, отличные от таковых в других комбинациях; эти сегменты показывают более высокую непрерывность и целостность.
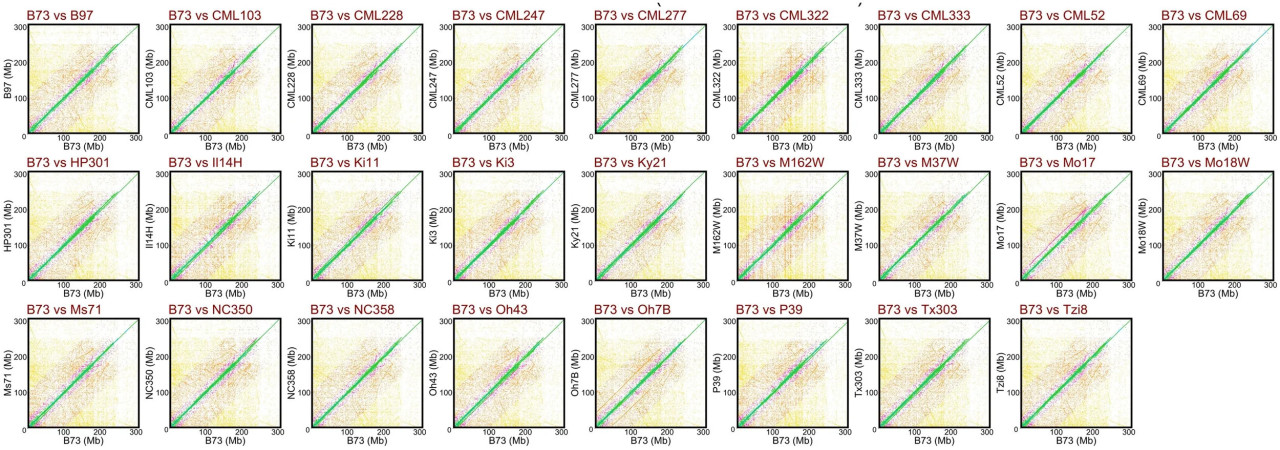
Рисунок 4 Коллинеарность и паттерны дупликации генов ZmCYP450 у 27 сортов кукурузы. Определение типа повтора гена ZmCYP450 на основе решётки коллинеарности. Данный рисунок иллюстрирует общегеномную матрицу синтении между B73 и 26 сортами кукурузы. WGD отмечена пурпурным, TRD — золотым, TD — голубым, PD — зелёным, DSD — оранжевым; каждая точка представляет дуплицированный ген, раскрывая паттерн экспансии семейства генов ZmCYP450 у кукурузы.
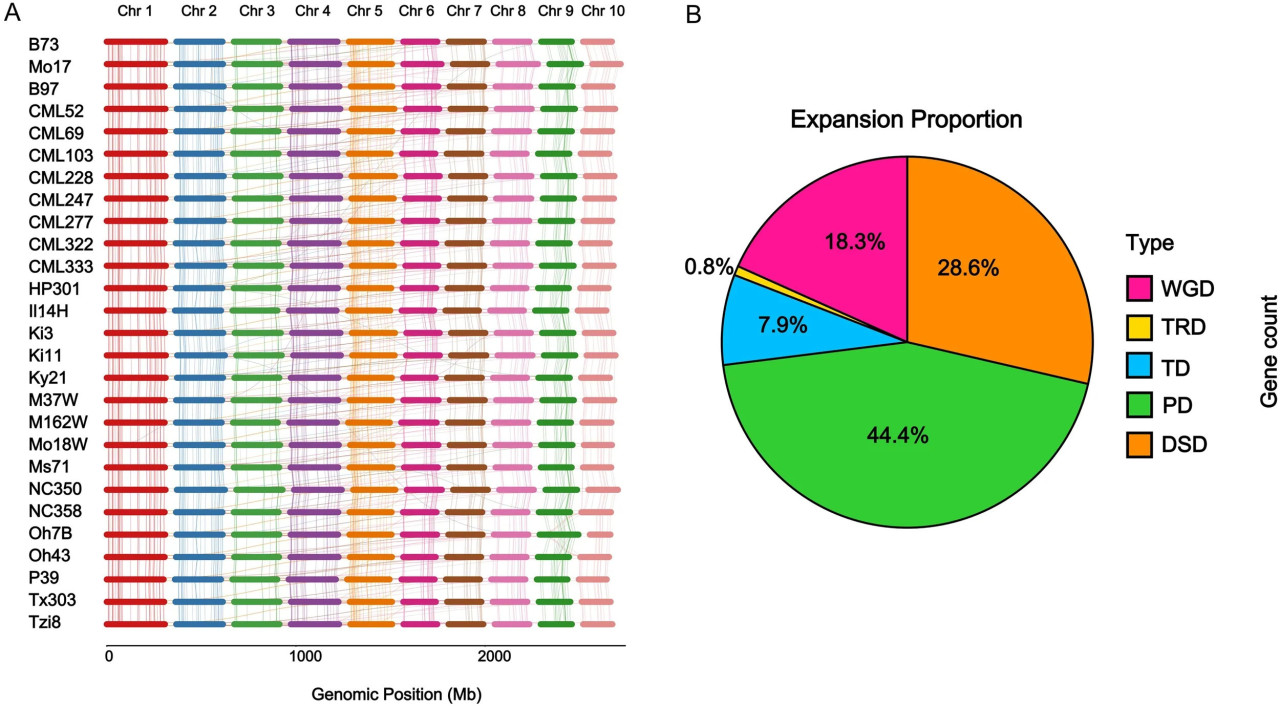
Рисунок 5 (A) Геномное распределение и гомология семейства генов ZmCYP450 у 27 инбредных линий кукурузы. Хромосомы представлены горизонтальными капсуловидными полосами, каждая разного цвета, с их относительными физическими длинами, нанесёнными на ось x в Мб. Эти 27 геномов кукурузы расположены вертикально, с референсной линией B73 вверху. Цветные линии (кривые Безье) представляют гомологичные пары генов, идентифицированные между референсной линией и другими сортами. (B) Круговая диаграмма типов дупликации генов ZmCYP450 по категориям.
В сочетании с анализом коллинеарности можно обнаружить, что большинство генов ZmCYP450 сохраняют высокую степень согласованности хромосомных позиций между различными сортами, образуя очевидные горизонтальные блоки коллинеарности, особенно на таких хромосомах, как chr1 и chr2. Коллинеарность линий демонстрирует высокий параллелизм (Рисунок 5A). Хотя общая структура коллинеарности остаётся стабильной, порядок генов в определённых областях показывает незначительные отклонения. Косые связи через хромосомы наблюдались на хромосоме 2 у KI11, B97 и CML333, а также на хромосоме 9 у B73 и Mo18W. Эти паттерны, вероятно, отражают незначительные локальные отклонения в порядке генов между сортами, обогащая внутривидовую геномную изменчивость кукурузы. Напротив, chr5 демонстрирует наиболее очевидные характеристики косых связей, и коллинеарные отношения наиболее сложны.
3.2.2 Характеристики дивергентного селективного давления среди различных ортогрупп
Мы рассчитали значение Ka/Ks для каждой OG ZmCYP450 на основе общегеномной последовательности 27 сортов кукурузы (Рисунок 6; Дополнительная таблица 7). В целом значения Ka/Ks большинства OG значительно сосредоточены ниже 1, в основном распределены в диапазоне 0–0,5, и их пики плотности расположены в областях низких значений, что указывает на то, что семейство генов ZmCYP450 сильно ограничено очищающим отбором в ходе эволюции, показывая высокую функциональную консервативность (Hurst, 2002). Тем не менее значения Ka/Ks между различными OG всё же демонстрируют значительные различия. Например, кривые распределения OG, представленных OG0000078, OG0000077, OG0000076 и OG0000075, относительно узкие и сосредоточенные, почти полностью расположены в диапазоне Ka/Ks < 1; напротив, OG, представленные OG0000003, OG0000008, OG0000029 и OG0000068, exhibited более дисперсное распределение, и их значения Ka/Ks могли простираться до 1 или 2 или даже более 3, и образовывали длинный хвост или субпик на правой стороне порога нейтрального отбора (Ka/Ks = 1), что свидетельствует о том, что эти гены подверглись положительному отбору и exhibited более благоприятные мутации. Среди 282 OG только 73 OG имели значение Ka/Ks более 1, из которых только 7 OG превышали 3, что указывает на то, что это явление не распространено в семействе ZmCYP450.
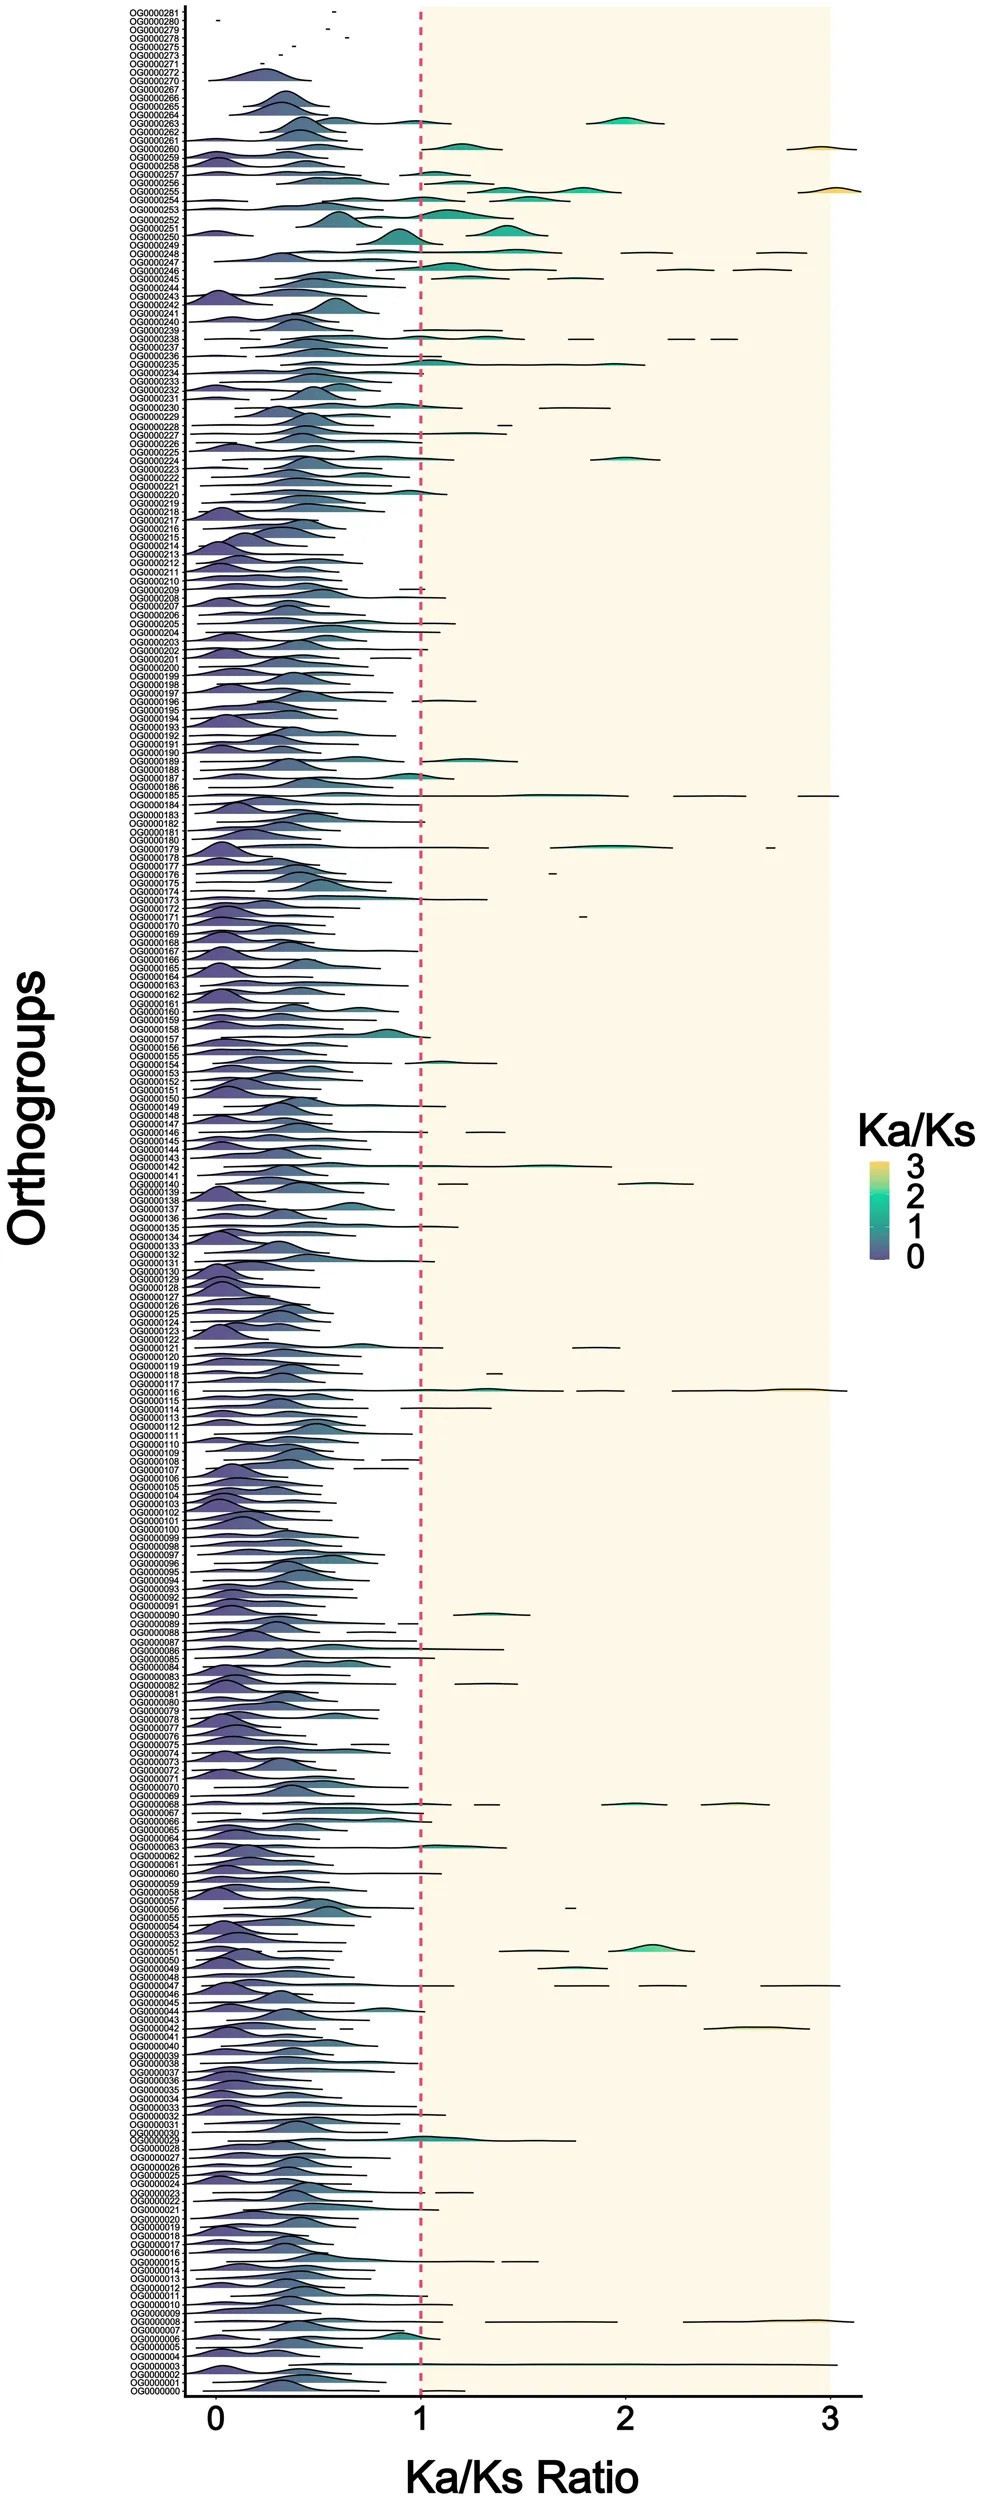
Рисунок 6 График ядерной плотности. График ядерной плотности иллюстрирует распределение соотношений Ka/Ks внутри каждой OG. Ось x представляет соотношение Ka/Ks, а ось y перечисляет отдельные OG. Красная пунктирная линия при Ka/Ks = 1,0 отмечает порог между очищающим отбором (Ka/Ks < 1,0) и положительным отбором (Ka/Ks > 1,0). Жёлтая затенённая область выделяет OG, показывающие свидетельства положительного отбора.
3.3 Филогенетические отношения и диверсификация подсемейств семейства ZmCYP450
Для дальнейшего изучения классификации и эволюционных отношений семейства генов ZmCYP450 мы построили филогенетическое дерево на основе 282 репрезентативных белковых последовательностей кукурузы, используя 272 последовательности CYP450 Arabidopsis thaliana в качестве референса (Рисунок 7, Дополнительная таблица 8). В соответствии с предыдущими исследованиями мы чётко классифицировали гены CYP450 на 10 кланов, причём клан CYP71 является наибольшей ветвью, включающей 319 генов и представляющей наиболее многочисленную группу у кукурузы. Эта ветвь в основном включает множество семейств, таких как CYP71, CYP81, CYP82, CYP83, CYP75 и CYP89, составляя основную часть филогенетического дерева. Помимо клана CYP71, остальные гены ZmCYP450 в основном распределены по нескольким консервативным кланам. Среди них клан CYP85 включает такие семейства, как CYP85, CYP90, CYP88 и CYP724, составляя вторую по величине группу; клан CYP72 охватывает такие семейства, как CYP72, CYP734, CYP735, CYP714 и CYP709, образуя ещё одну значительную ветвь. Остальные гены CYP450 кукурузы распределены по нескольким меньшим кланам, включая CYP710, CYP86, CYP704, CYP74, CYP711, CYP97 и CYP51. Число генов кукурузы в этих ветвях относительно невелико, и они обычно образуют отношения кластеризации один-к-одному или маломасштабной кластеризации со своими гомологами Arabidopsis. Среди них клан CYP711 является наименьшим, содержащим только пять генов. Примечательно, что в отличие от концентрированных паттернов экспансии, наблюдаемых в других кланах, кланы CYP86 и CYP85 показывают более дисперсный паттерн экспансии.
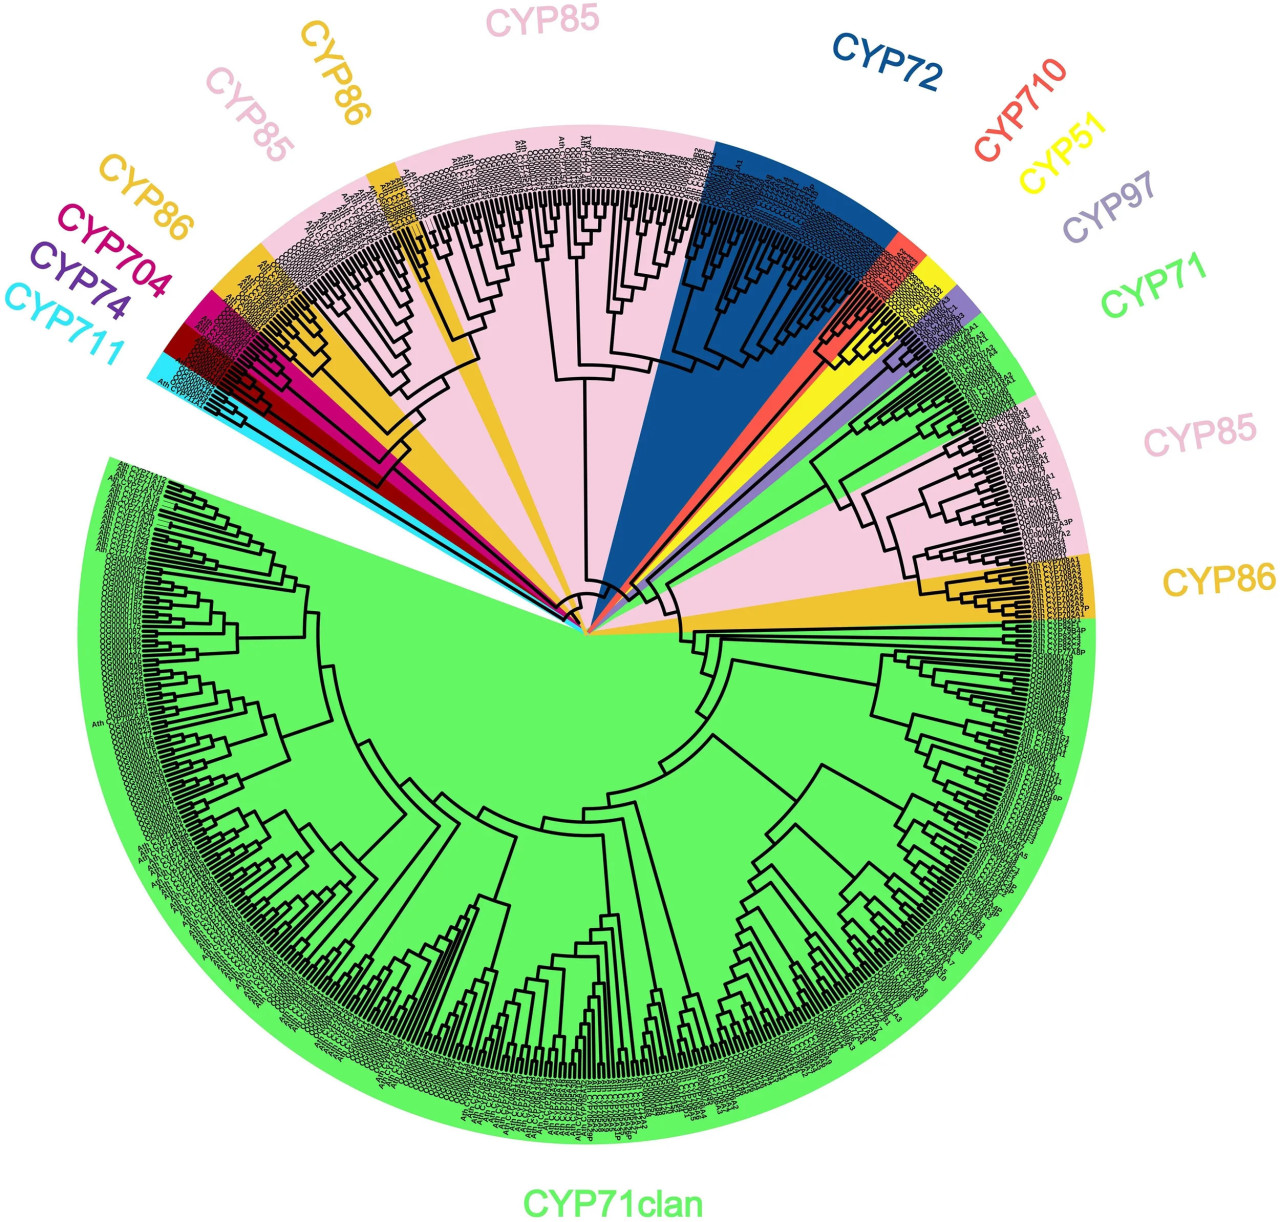
Рисунок 7 Филогенетическое дерево репрезентативных белковых последовательностей CYP450 из каждой ортогруппы. Дерево построено с использованием IQ-TREE2 (v2.1.2) с 1000 повторами бутстрэпа на основе последовательностей кукурузы и Arabidopsis. Филогенетическое дерево разделено на 10 кланов, включая CYP71, CYP86, CYP85, CYP97, CYP51, CYP710, CYP72, CYP704, CYP74 и CYP711.
Перекрёстный анализ, интегрирующий профили селективного давления (Рисунок 6) с филогенетической структурой (Рисунок 7), показал, что распределение этих 73 ортогрупп, подвергающихся положительному отбору, по различным кланам не было случайным, а показывало выраженную тенденцию. Эти OG, показывающие выраженную экспрессионную и последовательностную дивергенцию (что свидетельствует о потенциальной функциональной дивергенции), были преимущественно сосредоточены в наиболее массово расширенном клане CYP71, а также в кланах CYP85 и CYP72, тесно связанных с метаболизмом фитогормонов. Учитывая, что клан CYP71 широко участвует в биосинтезе специализированных (вторичных) метаболитов у кукурузы, тогда как кланы CYP85 и CYP72 в основном управляют гомеостазом фитогормонов и регуляцией развития, эта эволюционная предпочтительность к конкретным функциональным категориям может иметь важные биологические последствия. Примечательно, что значительная доля OG, подвергающихся положительному отбору, была представлена последовательностями из геномов B73 и Mo17 в филогенетическом дереве. С одной стороны, это явление можно объяснить исключительно высоким качеством аннотации и целостностью последовательностей таких геномов, как B73 и Mo17, что делает их идеальными референсными шаблонами для точного расчёта эволюционных давлений (Sun и др., 2018). С другой стороны, это глубоко отражает то, что быстрая эволюция этих конкретных OG ZmCYP450, вероятно, является прямым следствием интенсивного искусственного селекционного давления в ходе современной сельскохозяйственной селекции, направленного на оптимизацию элитных агрономических признаков, таких как высокая урожайность и множественная устойчивость (Fontes-Puebla и др., 2021).
3.4 Механизмы функциональной диверсификации гена ZmCYP450, обусловленные структурными вариациями
3.4.1 Опосредованная структурными вариациями потеря генов и изменение целостности генов
Для исследования потенциального влияния структурных вариаций (SV) на функцию генов ZmCYP450 мы использовали иерархическую стратегию скрининга. Сначала на основе профилей SV 27 образцов кукурузы мы идентифицировали гены-кандидаты, содержащие SV в их кодирующих или промоторных областях. Для приоритизации репрезентативных мишеней для углублённого функционального анализа из семейства генов мы использовали MUMmer (v4.0.0beta2) для идентификации SV размером более 50 п.н., перекрывающихся с критическими экзонами или коровыми промоторными областями. Вслед за этим пять генов ZmCYP450 (Zm00001eb018030, Zm00001eb159000, Zm00001eb056850, Zm00001eb003230 и Zm00001eb058100) были идентифицированы как значительно затронутые SV. Для визуализации различных паттернов вариации мы выполнили структурные сравнения для каждого гена, выбрав образцы, показывающие максимальную и минимальную степень SV (сорта Max-SV и Min-SV соответственно) (Рисунок 8; Дополнительная таблица 8). Результаты показали, что по сравнению с референсным геномом B73 основными типами структурных вариаций в этих пяти локусах были делеции различного размера. Среди них Zm00001eb018030 (принадлежащий к soft-core группе OG0000031) показал наибольшее событие делеции среди проанализированных локусов: масштабная делеция размером примерно 25 228 п.н. присутствовала у Tx303, при этом весь промотор и коровая кодирующая область были потеряны; делеция размером 10 356 п.н. также была обнаружена у Tzi8, что указывает на значительные структурные различия в этом локусе среди различных сортов. В фланкирующих или потенциальных регуляторных областях Zm00001eb056850 (принадлежащий к коровой группе OG0000042) и Zm00001eb058100 (принадлежащий к коровой группе OG0000079) также показали масштабные делеции; например, первый был делетирован на 8769 п.н. и 6983 п.н. у CML52 и Ky21 соответственно, тогда как последний показал значительно большую делецию у P39 (6084 п.н.) по сравнению с M162W (2216 п.н.), что свидетельствует о том, что крупные события делеции в регуляторных областях могут влиять на транскрипцию генов. Кроме того, Zm00001eb003230 (принадлежащий к коровой группе OG0000059) и Zm00001eb159000 (принадлежащий к коровой группе OG0000038) дополнительно раскрывают прямое влияние SV на кодирующие области. В Zm00001eb003230 делеция размером 3702 п.н., произошедшая у CML52, полностью охватывала промотор и всю кодирующую область, что указывает на более серьёзное структурное нарушение по сравнению с Mo18W (1663 п.н.). В Zm00001eb159000 делеции в кодирующей области показали полиморфизм; например, CML277 содержал множественные делеционные фрагменты, тогда как Ms71 имел только маломасштабную делецию и сохранял высокую степень консервативности. Эти результаты указывают на то, что SV могут непосредственно нарушать структуру генов, тем самым влияя на функцию генов.
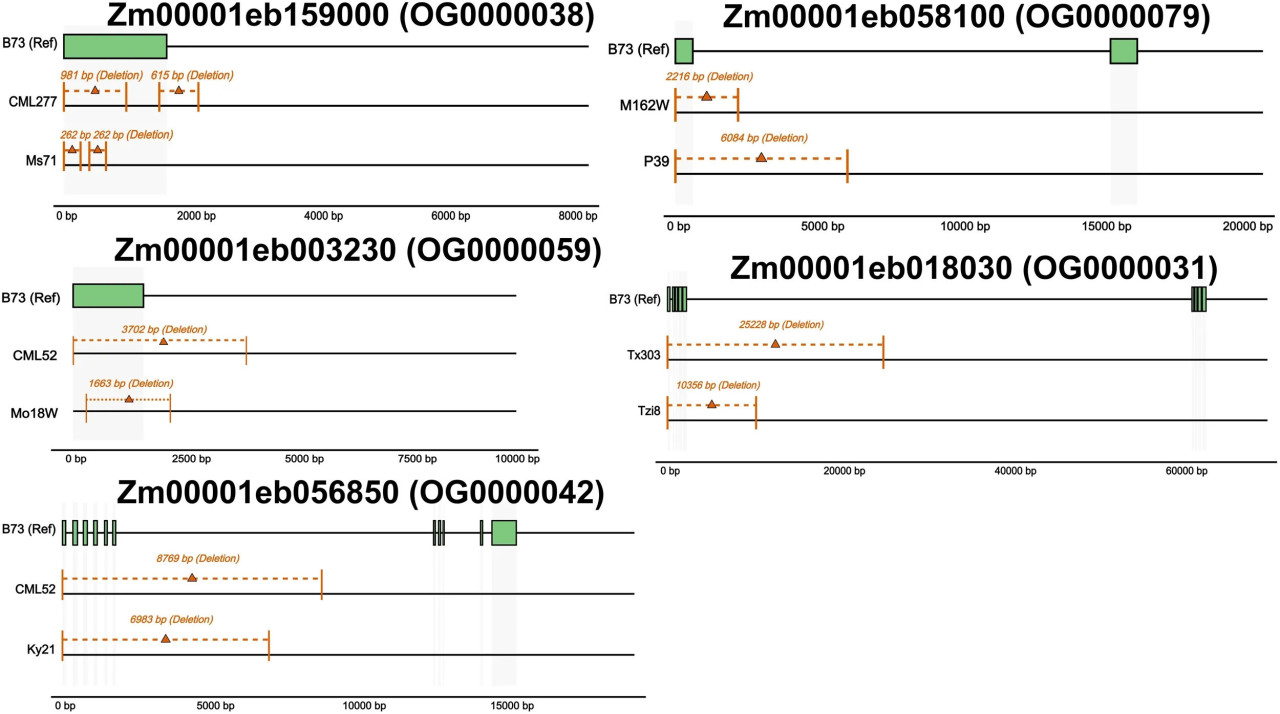
Рисунок 8 Репрезентативные структурные вариации генов в семействе ZmCYP450. Данный рисунок иллюстрирует структурные вариации в отобранных генах в геноме кукурузы, которые проявляются в виде масштабных делеций. По сравнению с референсной линией B73 множество сортов показывает значительные делеции в кодирующей области гена ZmCYP450 или в пределах 2-т.п.н. области выше или ниже него (указаны оранжевыми пунктирными линиями).
3.4.2 Усечение белков и потеря функциональных доменов, вызванные структурными вариантами
После определения паттернов структурных вариаций (SV) этих пяти репрезентативных генов мы дополнительно интегрировали транскриптомные данные из нескольких тканей для оценки того, приводят ли эти перестройки на уровне ДНК к фактическим изменениям на транскрипционном уровне. Мы проанализировали экспрессионную дивергенцию между образцами с SV и без SV, перекрывающими эти гены. Результаты показали, что среди пяти генов-кандидатов только Zm00001eb003230 и Zm00001eb056850 показали высокозначимые различия экспрессии (Padj < 0,001) (Рисунок 9). В частности, эти два гена показали значительно сниженную или почти необнаруживаемую экспрессию у образцов, содержащих SV, тогда как у образцов без SV сохранялись относительно высокие уровни транскриптов, что свидетельствует о том, что эти масштабные SV оказывают сильное ингибирующее действие на их транскрипционную активность. Учитывая, что функциональное изменение гена требует существенных изменений в транскрипции и трансляции, наш последующий углублённый механистический анализ — сосредоточенный на целостности коровых доменов белка и реорганизации цис-регуляторных элементов — будет строго сосредоточен на этих двух генах с подтверждёнными изменениями экспрессии. После подтверждения того, что структурные варианты (SV) значительно подавляют транскрипционную экспрессию Zm00001eb003230 и Zm00001eb056850, мы дополнительно оценили их потенциальное влияние на функцию генов на уровне белковой структуры. Путём сравнения белковых последовательностей и анализа аннотации доменов между референсным сортом B73 и репрезентативными мутантными сортами результаты показали, что в Zm00001eb056850 длина белка между B73 и CML52 оставалась в целом согласованной (Рисунок 10A), и типичные консервативные домены CYP450 (такие как I-спираль, K-спираль и гем-связывающая область) были полностью сохранены, что указывает на то, что этот ген не подвергся структурному нарушению в ходе эволюции. Однако локальное выравнивание последовательностей (WebLogo) выявило множественные сайты несинонимичных замен у CML52 по сравнению с B73 в областях 240–250 а.о. и 470–485 а.о. Хотя эти изменения не нарушили общую структуру белка, они могут влиять на стабильность белка; такие незначительные мутации могут изменять биохимическую функцию и стимулировать дальнейшую эволюцию (Bloom и др., 2006). Напротив, Zm00001eb003230 показал совершенно иной паттерн вариации (Рисунок 10B). У CML52 ген показал преждевременную терминацию примерно на 145 а.о., что приводит к значительно укороченной длине белка, сохраняющего только N-концевую область. Кроме того, усечённый белок сохраняет только A-проп-область, тогда как критические каталитические домены, такие как I-спираль, K-спираль, мотив PERF и гем-связывающие области, полностью отсутствуют. Соответствующие результаты выравнивания последовательностей также показывают, что все функциональные области ниже сайта усечения полностью потеряны, что представлено на рисунке как непрерывный «LOST/GAP», что предсказывает, что этот тип усечения, вероятно, приводит к полной инактивации белка.
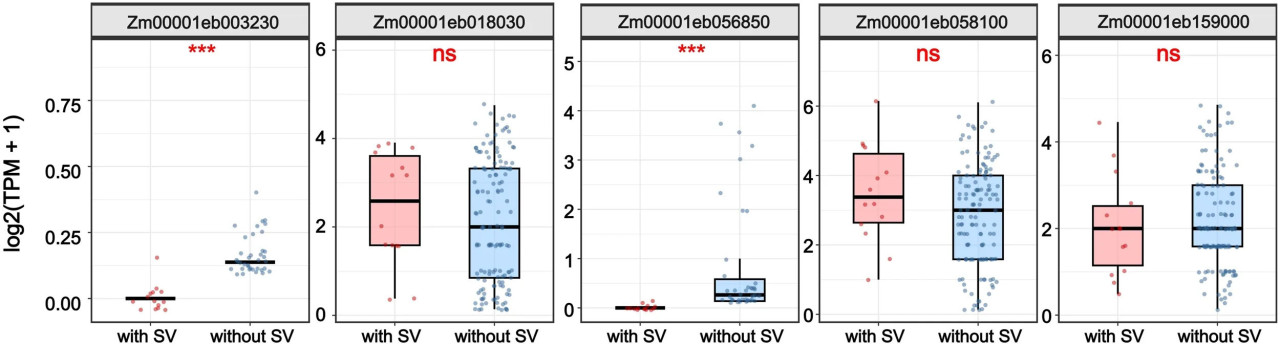
Рисунок 9 Влияние структурных вариаций (SV) на уровни экспрессии пяти генов-кандидатов ZmCYP450. Показаны профили экспрессии по пяти коровым тканям (лист, побег, корень, метёлка и початок). Для обеспечения высокого качества данных и статистической надёжности транскриптома сорта, показывающие нулевые или необнаруживаемые уровни экспрессии транскриптов для конкретного гена по контролируемым тканям, были строго отфильтрованы перед статистической оценкой. Для стандартизированной сравнительной основы репрезентативный базовый размер выборки по локусам-кандидатам обозначен как n = 2 против 20 независимых сортов кукурузы (с SV против без SV соответственно), где статистической единицей определена отдельная линия кукурузы. Для полного учёта всех точек данных, нанесённых на дрожащее распределение, размер выборки дополнительно указан как n = 10 против 100 объединённых тканевых наблюдений (представляющих 2 линии × 5 тканей для SV-положительной группы против 20 линий × 5 тканей для контрольной группы). Значимые различия между группами оценивались с помощью непараметрического рангового критерия Уилкоксона, и полученные P-значения корректировались на множественное тестирование с использованием метода Бенджамини-Хохберга (BH). Точные скорректированные P-значения для каждой панели: Zm00001eb003230 (Padj= 5,54×10⁻⁵), Zm00001eb018030 (Padj=0,752), Zm00001eb056850 (Padj= 3,09×10⁻⁷), Zm00001eb058100 (Padj=0,752) и Zm00001eb159000 (Padj=0,901). Статистическая значимость обозначена *** (Padj< 0,001), а ns означает незначимо.
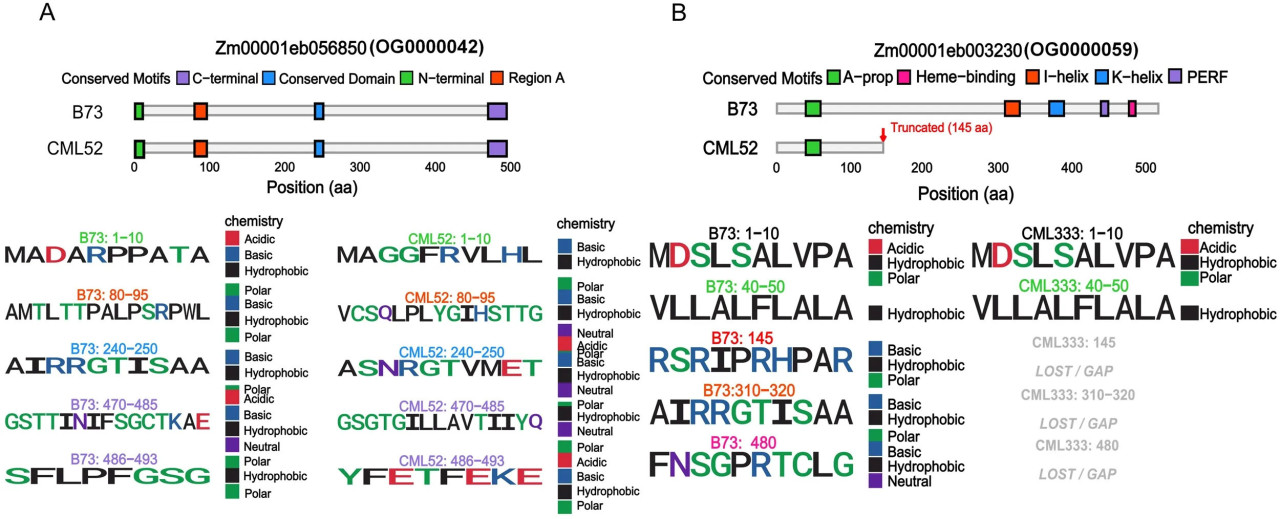
Рисунок 10 Влияние структурных вариаций (SV) на структуру белка. (A) Верхняя часть рисунка показывает распределение консервативных мотивов в Zm00001eb056850 (OG0000042); нижняя часть с использованием WebLogo выделяет значительные изменения физико-химических свойств аминокислот в определённых сайтах. (B) Верхняя часть рисунка показывает пять ключевых консервативных мотивов Zm00001eb003230 (OG0000059). Красная стрелка указывает на то, что ген подвергается преждевременной терминации примерно на 145 аминокислотах и лишён четырёх из пяти консервативных мотивов. Нижняя часть рисунка отображает выравнивание WebLogo этого гена по различным штаммам. Все функциональные мотивы ниже позиции 145 полностью отсутствуют у CML52 (отмечено как «LOST/GAP»).
3.4.3 Реорганизация цис-регуляторных элементов, обусловленная структурными вариациями промотора
Дальнейший анализ промотора показал, что промоторы обоих генотипов содержат различные классические регуляторные элементы, включая светочувствительные элементы (G-box), гормон-чувствительные элементы (ABRE), стресс-чувствительные элементы (MBS, LTR) и сайты связывания транскрипционных факторов (MYB, MYC). В Zm00001eb003230 SV вызвали значительное нарушение структуры промотора CML52, в частности потерю коровых промоторных элементов (Рисунок 11A). Напротив, промоторная область Zm00001eb056850 не показала масштабных делеций последовательности; вместо этого распределение цис-действующих элементов было тонко настроено посредством изменения расстояния между элементами (Рисунок 11B). По сравнению с B73 CML52 не показал значительных изменений в числе гормон-чувствительных (ABRE, ERE) и стресс-чувствительных (LTR, MBS) элементов, а также в числе светочувствительных (G-box) элементов. В целом структурные вариации регулируют транскрипционную активность генов либо через прямую потерю коровых цис-регуляторных элементов, либо через перестройку их пространственного распределения (Qi и др., 2025).
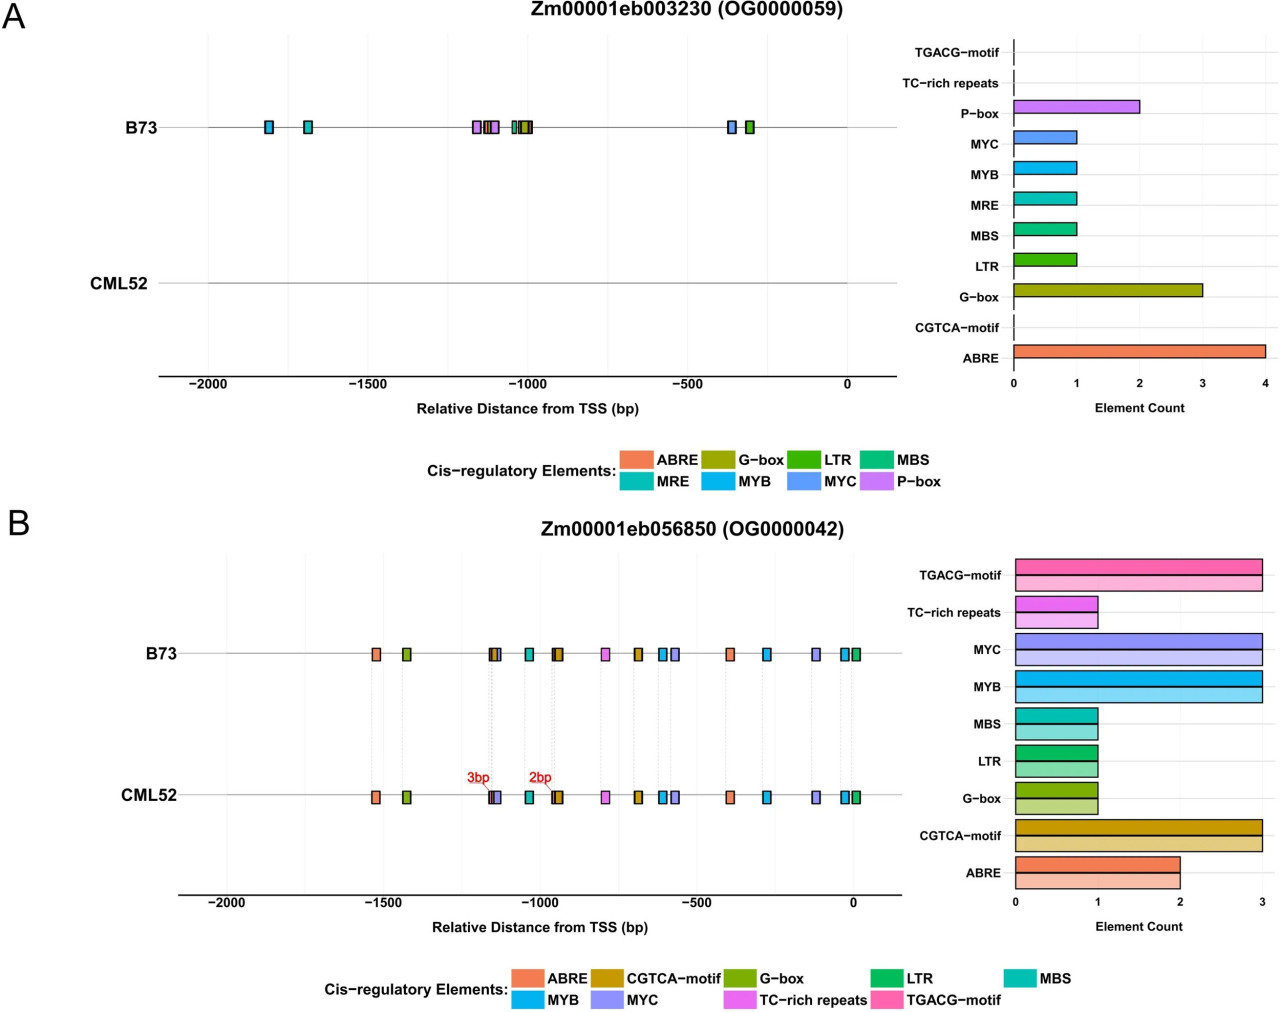
Рисунок 11 Влияние структурных вариаций (SV) на промоторные области. Рисунок слева показывает пространственное распределение цис-регуляторных элементов в пределах 2000 п.н. области выше сайта начала транскрипции (TSS); столбчатая диаграмма окрашена в соответствии с функциональными категориями, определёнными в легенде внизу. (A) В Zm00001eb003230 регуляторные элементы полностью отсутствуют у CML52 по сравнению с референсом B73. (B) В Zm00001eb056850 структура промотора между B73 и CML52 относительно консервативна и содержит различные стресс-связанные и гормон-чувствительные элементы (такие как ABRE, мотив CGTCA и MYC).
3.5 Геномное распределение и транскрипционная активность типичных и атипичных генов
Для исследования влияния структурной целостности на функцию генов ZmCYP450 мы классифицировали членов ZmCYP450 на структурно интактные типичные гены (Typical, красный), мутированные и усечённые атипичные гены (Atypical, синий) и события полной потери гена (Missing, белый) (Рисунок 12). Результаты показывают, что подавляющее большинство генов ZmCYP450 принадлежат к структурно интактным типичным членам, и все сорта кукурузы сохраняют коровый каталитический домен P450. Внутри многочисленных ортогрупп мы наблюдали отчётливый паттерн распределения, характеризующийся чередующейся мозаикой типичных, атипичных и отсутствующих генов. Высокая частота атипичных состояний и событий полной потери может быть приписана усечению последовательности или потере локуса, вызванным масштабными структурными вариациями (SV). Для валидации влияния типичных и атипичных генов на биологические функции семейства ZmCYP450 данное исследование дополнительно интегрировало геномные структурные данные с транскриптомными данными из пяти репрезентативных тканей (лист, побег, корень, метёлка и початок) для проведения систематического анализа паттернов экспрессии семейства ZmCYP450 по 27 сортам кукурузы (Рисунок 13). На геномном уровне число членов семейства ZmCYP450 показывало относительную консервативность по 27 сортам, при этом каждый сорт сохранял более 250 генов-членов. Среди них структурно интактные типичные гены составляют основу коровой функции семейства, тогда как атипичные гены, затронутые структурными вариациями, сохраняли стабильную долю примерно от 40 до 60 копий по сортам. В резком контрасте с этой геномной стабильностью общие уровни экспрессии семейства ZmCYP450 показали драматические динамические колебания по сортам и тканям. Например, такие сорта, как B73, Ki3 и Ki11, показали чрезвычайно высокую транскрипционную активность, тогда как сорта, включая II14H, Mo17 и Oh7B, показали чрезвычайно низкие уровни экспрессии во многих тканях, приближающиеся к нулю. Хотя геномные числа копий атипичных генов были значительно ниже, чем у типичных генов, во всех исследованных тканях они вносили незначительную долю в общие значения TPM. Стоит отметить, что в тканях метёлки доля экспрессии атипичных генов у таких сортов, как Ki11, Ki3 и CML247, была значительно повышена. Этот результат убедительно демонстрирует, что усечение последовательности, вызванное структурными вариациями, не приводит к полному транскрипционному заглушению генов ZmCYP450.
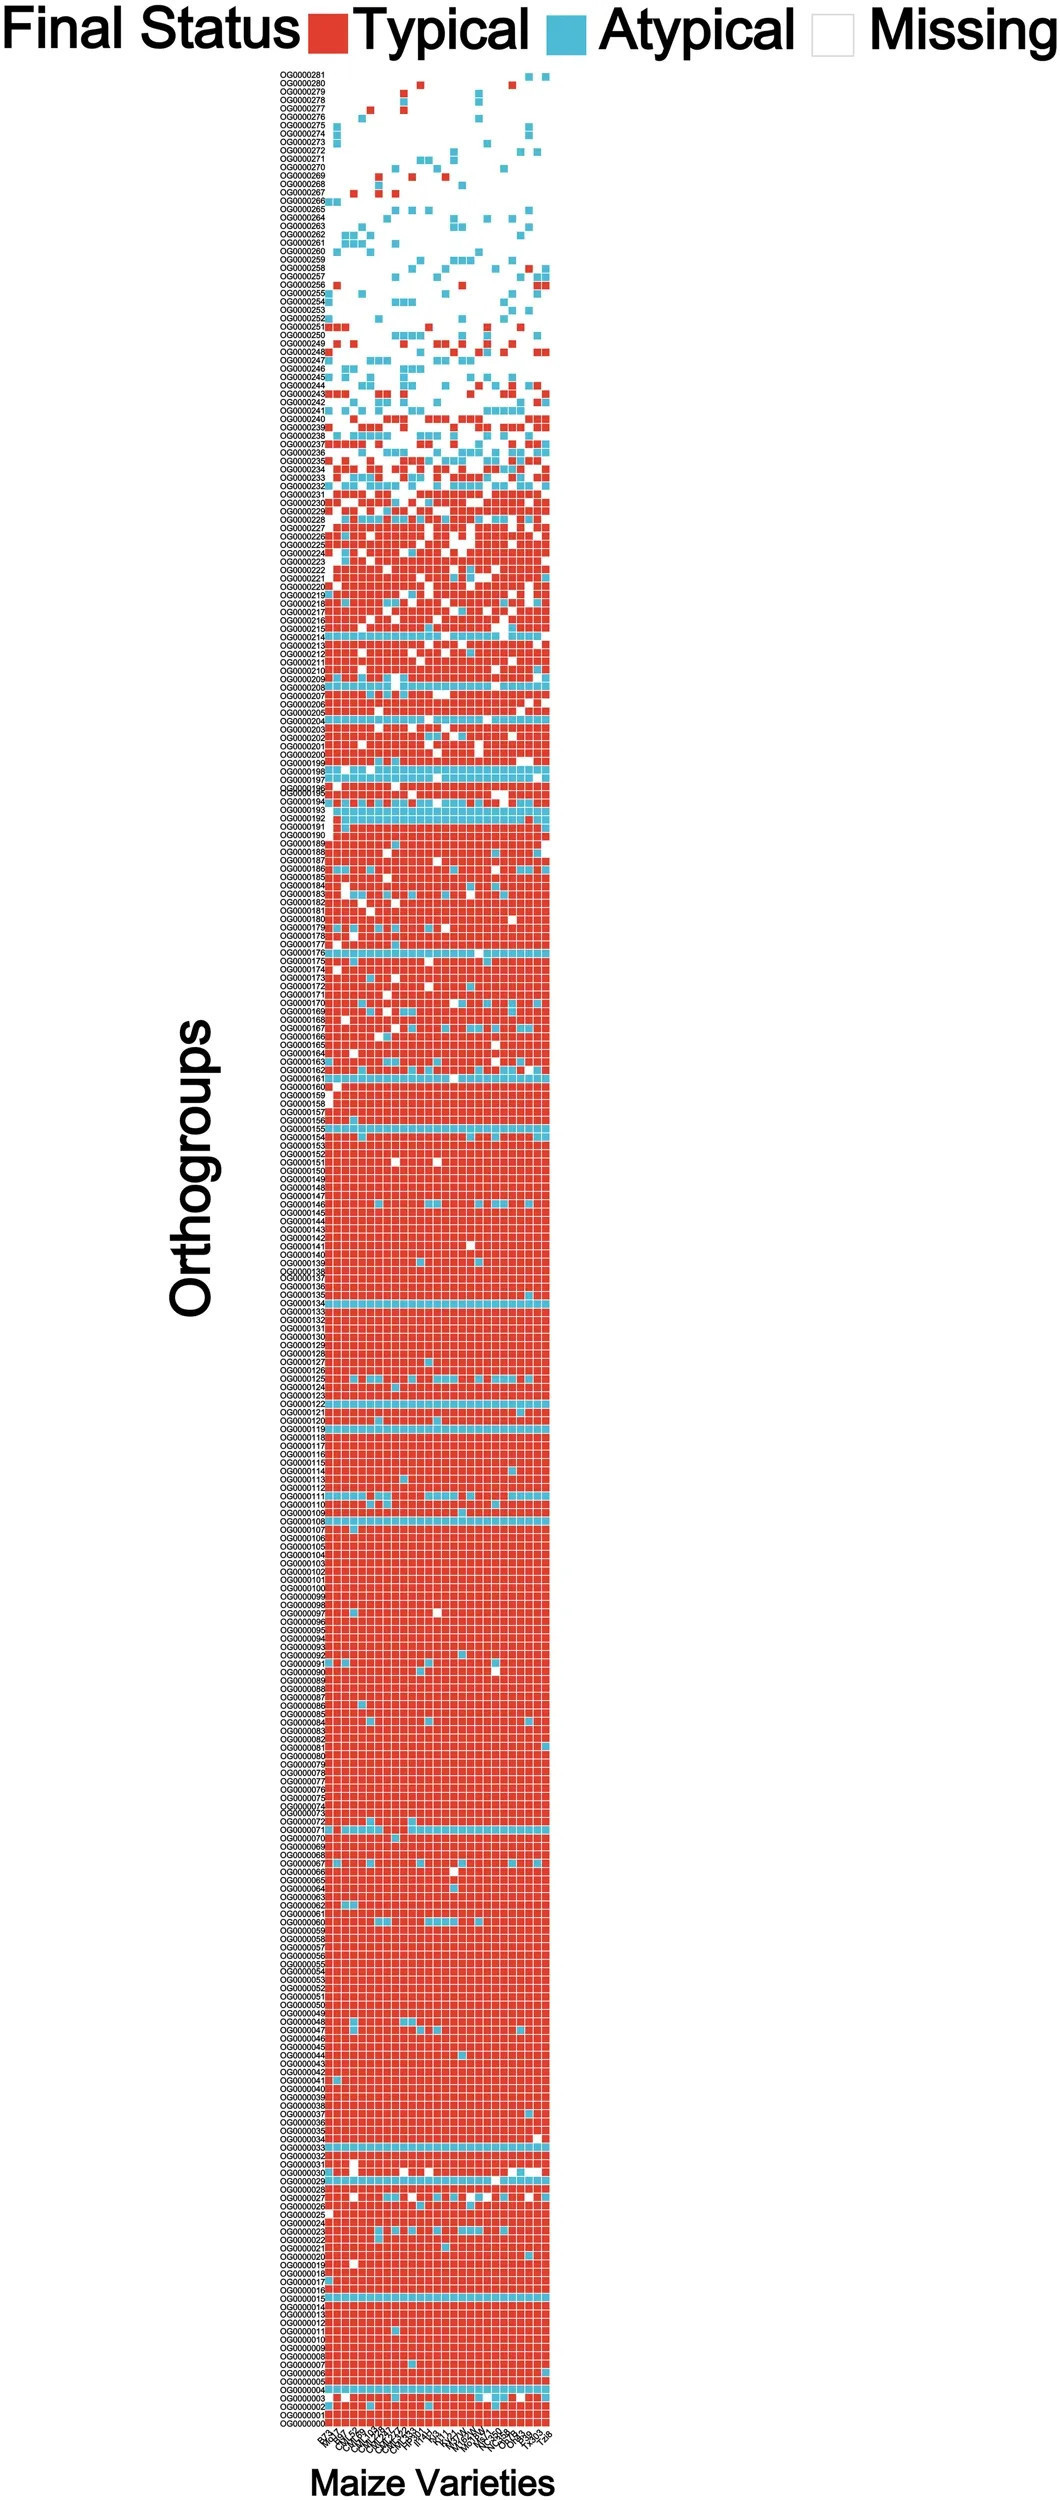
Рисунок 12 Широко распространённая экспрессия типичных и атипичных генов ZmCYP450 у кукурузы. Тепловая карта показывает классификацию каждого гена ZmCYP450 по различным сортам кукурузы как «типичного» гена, «атипичного» гена или «отсутствующего».
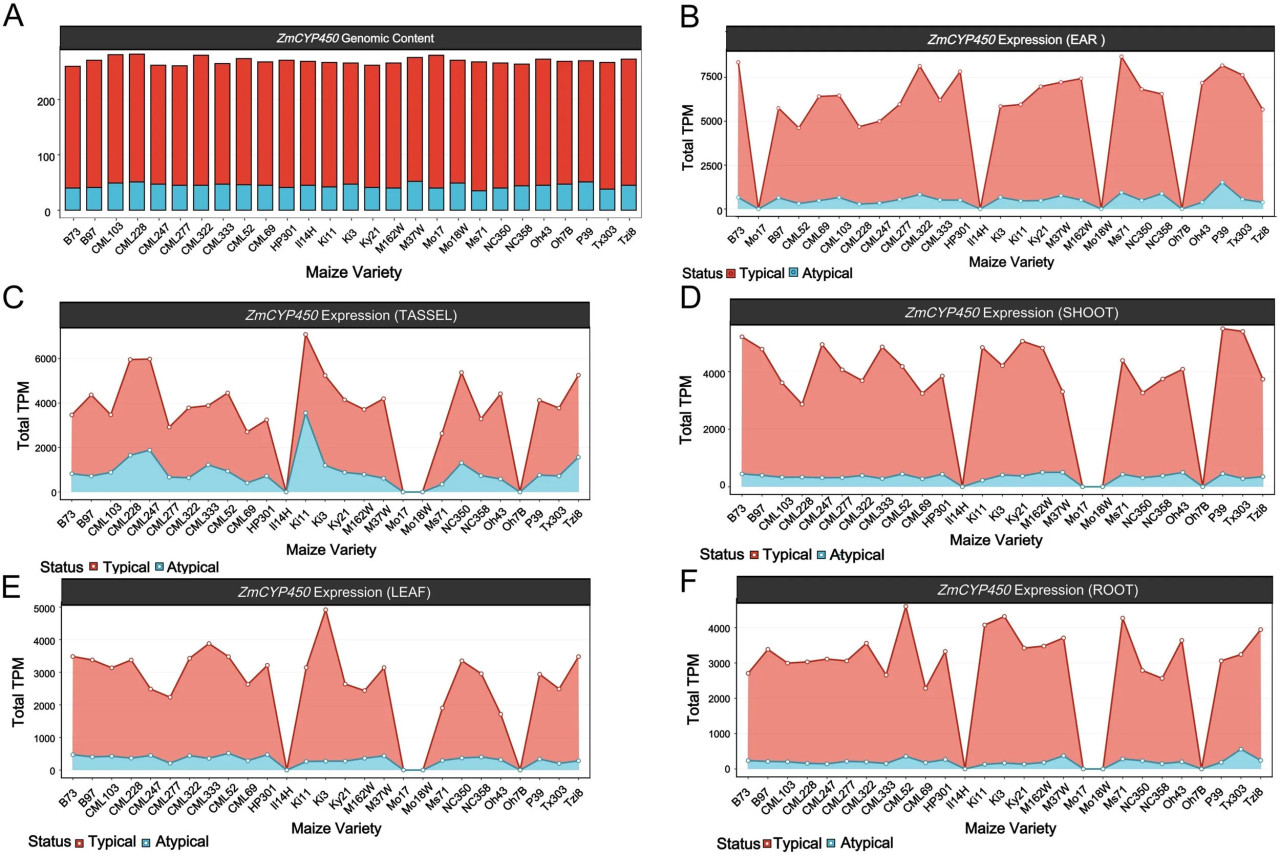
Рисунок 13 (A) Изображение показывает число типичных и атипичных генов в каждом сорте кукурузы. (B–F) Изображение отображает уровни экспрессии типичных и атипичных генов по пяти тканям (лист, побег, корень, метёлка и початок) у различных инбредных линий кукурузы.
Для дальнейшего изучения связи между структурной целостностью генов и уровнем экспрессии данное исследование исследовало корреляцию между числом типичных генов у различных сортов кукурузы и общим уровнем экспрессии семейства генов (Рисунок 14). В надземных тканях побега (R = –0,44, Padj = 0,043), листа (R = –0,077, Padj = 0,73) и метёлки (R = –0,13, Padj = 0,56) число типичных генов показало слабую отрицательную корреляцию с общим уровнем экспрессии, при этом средние значения TPM все превышали 8,5. Напротив, початок (R = 0,14, Padj = 0,51) и корень (R = 0,00067, Padj = 1) показали слабую положительную тенденцию, что свидетельствует о том, что увеличение числа типичных генов в этих тканях может в определённой степени повышать тканеспецифичные уровни экспрессии. Примечательно, что значительная отрицательная корреляция была обнаружена только в ткани побега (R = –0,44, Padj = 0,043), что указывает на то, что увеличение числа типичных генов в этой ткани значительно связано со снижением общего уровня экспрессии.
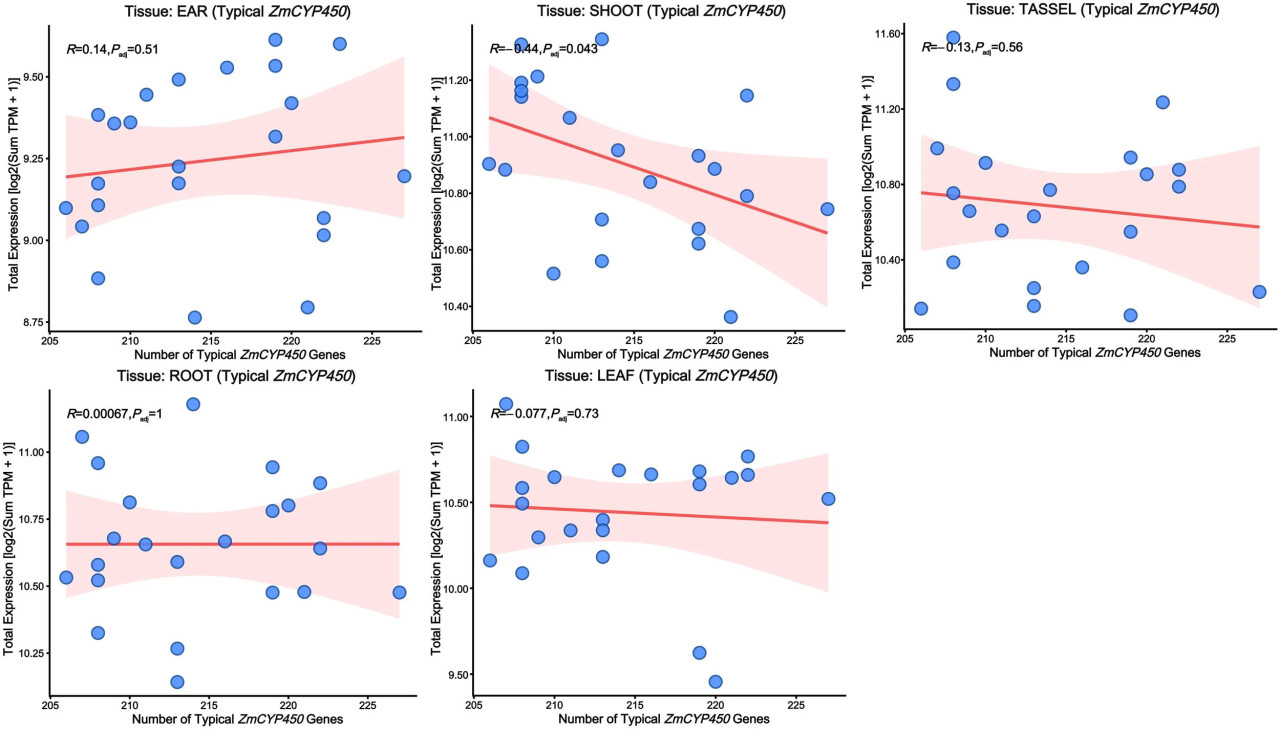
Рисунок 14 Анализ корреляции между числом генов ZmCYP450 и общим уровнем экспрессии по тканям. Анализы линейной регрессии между числом структурно полных генов ZmCYP450 и общим уровнем экспрессии семейства по пяти основным тканям кукурузы. Для обеспечения качества данных и избежания потенциальных технических артефактов сорта кукурузы с нулевой или необнаруживаемой общей представленностью транскриптов в данной ткани были исключены перед статистическим анализом. Полученные анализы показаны отдельно для початка (n = 23 линии), метёлки (n = 22 линии), листа (n = 22 линии), корня (n = 22 линии) и побега (n = 22 линии). Ось x представляет число структурно полных генов ZmCYP450 в каждом геноме, а ось y представляет логарифмически преобразованный общий уровень экспрессии семейства ZmCYP450 [log2(Sum TPM + 1)] в соответствующей ткани. Красная сплошная линия указывает подобранную линейную регрессию, а затенённая область обозначает 95% доверительный интервал. Коэффициенты корреляции Пирсона (R) и скорректированные по Бенджамини-Хохбергу P-значения (Padj) показаны на каждой панели. Необработанные P-значения корректировались на множественное тестирование с использованием процедуры контроля доли ложных открытий (FDR) Бенджамини-Хохберга. Статистическая значимость определялась как Padj< 0,05.
3.6 Ландшафты экспрессии и тканеспецифичные паттерны генов ZmCYP450
3.6.1 Ландшафты экспрессии генов ZmCYP450 по тканям и сортам кукурузы
Для характеристики экспрессионной специфичности все гены ZmCYP450 были классифицированы с использованием индекса тканевой специфичности (τ) и стратегии порогов на основе процентилей, управляемой данными (Рисунок 15). Распределение значений τ было заметно правосторонним, со средним значением 0,71 (Дополнительная таблица 9), что указывает на то, что тканеспецифичная экспрессия является распространённой особенностью семейства ZmCYP450. На основе квартильного распределения значений τ гены были классифицированы на пять категорий: Housekeeping (τ ≤ 0,54), Intermediate (0,54< τ ≤ 0,71), Tissue-biased (0,71< τ ≤ 0,89), Highly specific (0,89< τ ≤ 0,98) и Ultra-specific (τ > 0,98).
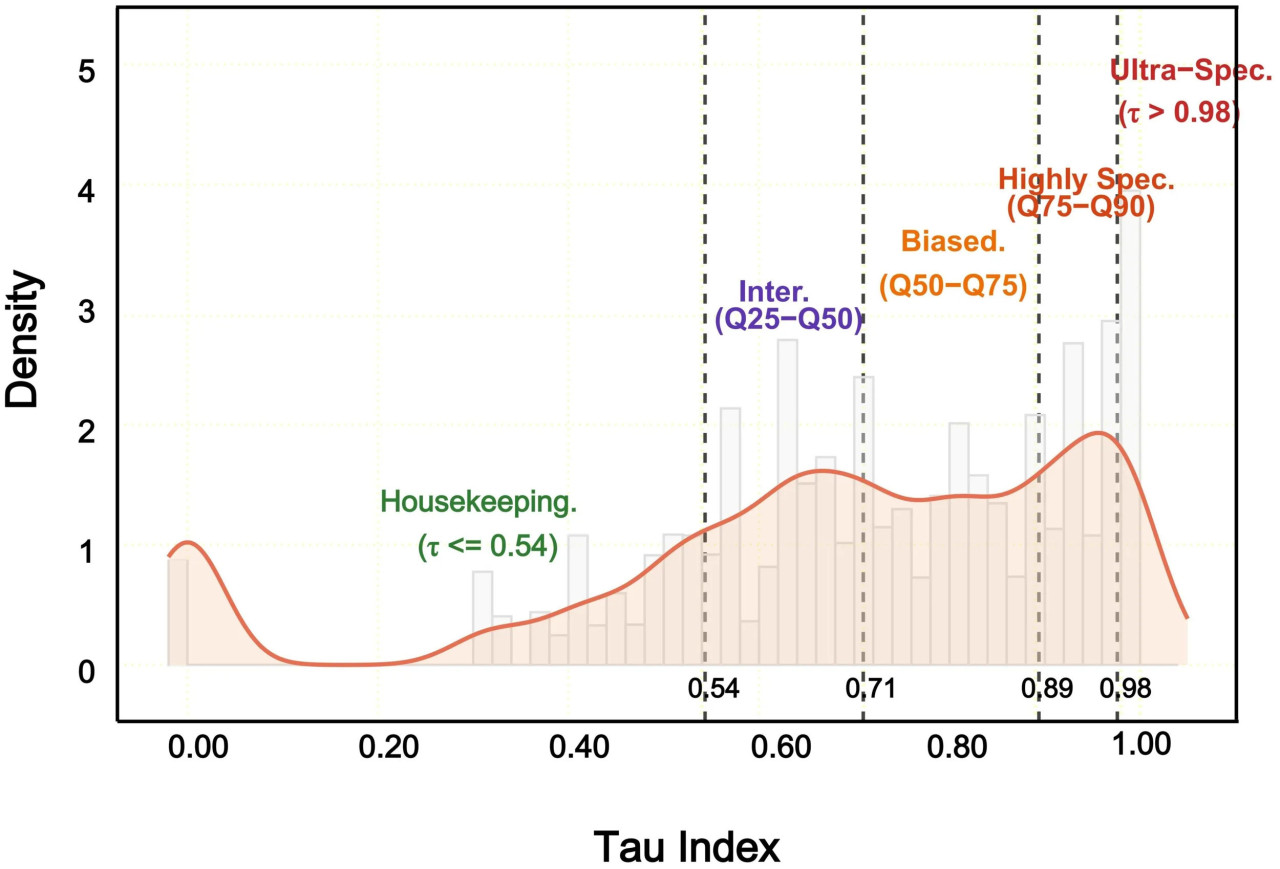
Рисунок 15 Классификация генов ZmCYP450 на основе индекса тканевой специфичности (τ). Данный рисунок показывает распределение значений τ для членов анализируемого семейства генов. Красная пунктирная линия указывает порог, использованный для классификации генов на группы housekeeping, intermediate, tissue-biased, highly specific и ultra-specific. Ось x представляет индекс тканевой специфичности (τ), а ось y представляет плотность генов внутри каждого интервала; пики распределения смещены вправо.
Впоследствии был проведён систематический анализ экспрессионной стратификации для 282 ортогрупп (OG) ZmCYP450 на основе их представленности транскриптов (TPM) по пяти основным тканям и индекса тканевой специфичности (τ) (Дополнительный рисунок 1A). В целом наблюдались отчётливые экспрессионные градиенты среди различных категорий τ. Housekeeping OG (τ ≤ 0,54) обычно показывали широкие паттерны экспрессии, с транскриптами, распределёнными по тканям листа, побега, корня, метёлки и початка без явно доминирующего сайта экспрессии. Например, OG0000008 сохраняла относительно высокие уровни экспрессии во всех пяти тканях, представляя типичный широко экспрессируемый паттерн. По мере увеличения значений τ Intermediate OG постепенно показывали большую экспрессионную дивергенцию между тканями, хотя всё ещё сохраняли характеристики многотаневой экспрессии. В категории Tissue-biased (0,71< τ ≤ 0,89) тканевое предпочтение становилось более выраженным. Некоторые OG были преимущественно экспрессированы в корнях, такие как OG0000131 и OG0000204, тогда как другие показывали заметно повышенную экспрессию в початках. Например, OG0000225 показала существенно более высокую экспрессию в початке, чем в других тканях. Тем временем несколько OG оставались преимущественно экспрессированными в листьях, что указывает на чёткую тенденцию экспрессионной дивергенции внутри семейства ZmCYP450. При дальнейшем увеличении значений τ Highly specific и Ultra-specific OG показывали всё более ограниченные паттерны экспрессии, с накоплением транскриптов, сосредоточенным в ограниченном числе тканей или даже в одной ткани, что отражает сильную тканевую специфичность. Эти OG обычно сохраняли очень низкие уровни экспрессии в большинстве тканей, но показывали выраженные пики экспрессии в определённых тканях. Например, OG0000101, OG0000103 и OG0000104 были преимущественно экспрессированы в побеге, тогда как OG0000060 была почти исключительно обогащена в метёлке и показывала минимальную экспрессию в остальных тканях. В целом ландшафт экспрессии семейства ZmCYP450 показывал постепенный переход от широкой экспрессии к высокотканеспецифичной экспрессии, отражая прогрессивную экспрессионную специализацию и потенциальную функциональную дифференциацию по различным тканям кукурузы.
Для дальнейшего исследования стабильности экспрессии и паттернов изменчивости генов из различных функциональных категорий на популяционном уровне данное исследование выбрало репрезентативные гены с наивысшими коэффициентами вариации (CV) из каждой категории на основе результатов классификации, показанных на Дополнительном рисунке 1B, для детального анализа (Дополнительный рисунок 1B). Результаты показали, что гены в категории Housekeeping (например, гены из ортогрупп OG0000019, OG0000007 и OG0000013) показывали высокостабильную экспрессию по инбредным линиям кукурузы, с минимальными колебаниями между тканями и обычно низкими значениями CV (<1,5). Гены в категории Tissue-biased показывали выраженные экспрессионные предпочтения в определённых тканях; например, OG0000168 показывала относительно высокую экспрессию у таких инбредных линий, как B73 и II14H, тогда как экспрессия была заметно снижена у Mo17. По мере увеличения индекса тканевой специфичности (τ) экспрессионная дивергенция на популяционном уровне становилась более выраженной, при этом Highly specific и Ultra-specific гены показывали наиболее сильную дифференциацию. Например, в ткани побега OG0000210 была высоко экспрессирована у таких инбредных линий, как Tzi8 и P39, но была почти необнаруживаемой у NC350. Аналогично, OG0000060 показывала повышенную экспрессию у Tzi8 и NC350 в ткани метёлки, но была существенно снижена у Ms71. В целом возрастающая экспрессионная дивергенция среди инбредных линий сопровождалась более сильной тканевой специфичностью.
3.6.2 Паттерны экспрессии паралогичных генов внутри многокопийных ортогрупп
Вышеупомянутые анализы выявили значительные различия в экспрессии генов ZmCYP450 по различным тканям и сортам кукурузы, но согласованность экспрессии среди паралогичных генов внутри одного генома оставалась неясной. Для решения этого вопроса, используя B73 в качестве представителя, мы систематически проанализировали паттерны экспрессии многокопийных ортогрупп ZmCYP450 на уровне отдельных ортогрупп. Результаты показали широко распространённую экспрессионную дивергенцию внутри одной ортогруппы (Дополнительная таблица 10). Взяв OG0000000 в качестве примера, эта ортогруппа содержит три гена ZmCYP450. Среди них Zm00001eb339130 и Zm00001eb339150 преимущественно экспрессированы в вегетативных тканях, таких как лист и корень, но их уровни экспрессии в корне и метёлке уже показывают заметные различия. Напротив, Zm00001eb339170 показывает сильную тканевую специфичность, будучи высоко экспрессированным только в метёлке (TPM = 51) и оставаясь почти необнаруживаемым в листе, корне и побеге. OG0000007 демонстрирует аналогичный паттерн: Zm00001eb097920 в основном экспрессирован в листе (TPM = 9), тогда как Zm00001eb100210 значительно обогащён в корне и побеге (TPM = 54 и 31 соответственно), а Zm00001eb100200 преимущественно экспрессирован в побеге (TPM = 21). В целом паралогичные гены внутри подмножества многокопийных ортогрупп показывают чёткие характеристики тканевой экспрессионной дифференциации.
4 Обсуждение
Суперсемейство цитохрома P450 является крупнейшим семейством ферментов, играющим ключевую роль в эволюционной метаболической диверсификации растений (Nelson и Werck‐Reichhart, 2011). Члены этого семейства играют каталитическую роль в различных биохимических реакциях, и они могут производить различные вторичные метаболиты, включая флавоноиды, антоцианы, изофлавоны и терпеноиды. По мере обнаружения всё большего числа общегеномных последовательностей члены суперсемейства генов CYP450 были систематически идентифицированы и проанализированы у различных растений, таких как чай, батат, пшеница и так далее. В предыдущих исследованиях нередко проводился общегеномный анализ семейства CYP450 для одного референсного генома (Zhang и др., 2023c; Sha и др., 2026). Однако такие исследования часто основаны на конкретных генетических фонах, и трудно полностью раскрыть структурные вариации и эволюционную динамику суперсемейства на внутривидовом уровне. Отсутствует систематический анализ экспансии генов, делеции и функциональной дифференциации. Как важная злаковая культура (Jiang и Liu, 2023), кукуруза имеет сложный генетический фон и значительные различия между сортами. Она является идеальным материалом для изучения метаболического разнообразия растений и эволюции семейств генов. В последние годы развитие пангеномики предоставило новую перспективу для анализа внутривидовой генетической изменчивости. Однако всё ещё отсутствуют систематические пангеномные исследования суперсемейства ZmCYP450. Поэтому систематическое сравнение между сортами кукурузы с использованием пангеномного анализа помогает лучше понять эволюционную динамику и функциональное разнообразие семейства генов ZmCYP450.
4.1 Геномная динамика и адаптация семейства ZmCYP450 с пангеномной точки зрения
В данном исследовании мы идентифицировали в общей сложности 282 OG ZmCYP450, при этом большинство ортогрупп сохраняли 1–5 копий по различным сортам, что указывает на то, что общее число копий генов этого семейства относительно стабильно (Рисунок 1A). Однако кривые накопления пангенома указывают на то, что по мере увеличения числа включённых сортов кумулятивное число обнаруженных OG продолжает расти, показывая типичную тенденцию открытого пангенома (Tettelin и др., 2005); одновременно число коровых OG постепенно уменьшается с увеличением числа сортов, отражая обширную изменчивость геномного содержания среди индивидуумов внутри одного вида (Hirsch и др., 2014) (Рисунок 1B). Учитывая критическую роль ферментов CYP450 в синтезе гормонов и вторичном метаболизме, эта тенденция, вероятно, связана с адаптацией кукурузы к различным средам (Gao и др., 2019); то есть различные сорта в определённой степени регулируют свою метаболическую способность путём сохранения или потери определённых коровых OG для противостояния разнообразным условиям роста. Поэтому опора только на коровые OG недостаточна для полного прояснения внутривидовой генетической изменчивости; необходимо также сосредоточиться на геномных областях, показывающих специфическое распределение среди различных индивидуумов (Li и др., 2014). Внутри семейства ZmCYP450 коровые OG составляют 63,8%, что указывает на то, что большинство ортогрупп ZmCYP450 выполняют базовые метаболические функции и стабильно сохраняются по различным сортам, тем самым поддерживая стабильность фундаментальных физиологических процессов. Примечательно, что private OG не были обнаружены ни у одного из 27 сортов, а soft-core OG и dispensable OG составили оставшуюся долю (Рисунок 1C). Это свидетельствует о том, что в ходе длительного процесса одомашнивания и селекции кукурузы произошёл обширный поток генов среди различных популяций внутри семейства ZmCYP450 (Hufford и др., 2013), в результате чего ни один ген не эволюционировал изолированно, а скорее опирался на варианты присутствия/отсутствия (PAV) и вариации числа копий (CNV) по различным сортам (Swanson-Wagner и др., 2010). Предыдущие исследования сообщали, что значительная доля генов показывает заметные различия в экспрессии между различными родителями и тканями и проявляет определённые тканеспецифичные паттерны экспрессии (Zhuang и Adams, 2007), что согласуется с находками в данном исследовании о том, что транскрипты генов из dispensable OG были обнаружены только в ограниченном числе тканей (Рисунок 1D).
Анализ вариации присутствия-отсутствия (PAV) и вариантов числа копий (CNV) дополнительно выявил значительные различия между сортами. В отличие от консервативности коровых компонентов, dispensable OG показывали обширные делеции генов у большинства сортов; этот сложный геномный состав подтверждает наличие существенной структурной изменчивости в семействе ZmCYP450 в геноме кукурузы (Lu и др., 2015). Это явление свидетельствует о том, что специфичность семейства ZmCYP450 происходит в первую очередь из динамических изменений числа генов, а не из изменений общей геномной структуры. Конечно, такие широко распространённые делеции генов не означают снижения геномной функции, а скорее являются результатом геномной перестройки, произошедшей в ходе долгосрочного одомашнивания и расселения кукурузы (Hufford и др., 2012). Как показано на рисунке, мы обнаружили, что такие линии, как CML322, CML333 и M37W, не показывали делеций в большинстве soft-core OG, что раскрывает, что определённые регуляторные гены у этих сортов были сильно консервативны в ходе одомашнивания (Рисунок 2A); эти гены могут рассматриваться как потенциальные мишени для генетического улучшения растений (Zhang и др., 2023b). Дальнейший анализ CNV указывает на то, что примерно 8% различий в числе копий по сортам свидетельствуют о том, что эти области подвергались различным селективным давлениям (Рисунок 2B). Примечательно, что внутри коровых OG мы наблюдали два различных паттерна CNV: большинство коровых OG строго поддерживаются на низком числе копий по сортам, тогда как меньшинство ортогрупп показывали дифференциальные вариации числа копий. Гены внутри этих высоковариабельных OG, показывающие дивергентные вариации числа копий, обогащены функциями, связанными с сортоспецифичными признаками (Mei и др., 2020), что окажет глубокое влияние на фенотипы, признаки кукурузы и эволюционную траекторию вида (Dang и др., 2025). Поэтому структурная динамика семейства ZmCYP450, охватывающая как вариацию числа копий генов, так и локализованные экспансии, представляет собой ключевую функциональную адаптивность и функциональную адаптивность у кукурузы (Tan и др., 2017). Безусловно, дальнейшая валидация репрезентативных локусов PAV и CNV показала, что паттерны вариации, выведенные из занятости ортогрупп, действительно отражают подлинные геномные структурные различия. Масштабные делеции в локусах PAV подтвердили потерю генов у конкретных сортов (Рисунок 3A), тогда как дополнительные копии в локусах CNV были подтверждены локальной микросинтенией (Рисунок 3B), что свидетельствует об их происхождении из подлинных событий дупликации. Эти результаты независимо подтвердили, что наблюдаемые сигналы PAV и CNV являются аутентичными и не могут быть приписаны артефактам аннотации или сборки (Springer и др., 2009).
4.2 Дупликация, структурная вариация и селективное давление совместно формируют эволюционные механизмы семейства ZmCYP450
Кукуруза претерпела относительно недавнее событие WGD в своей эволюционной истории (примерно 5–12 миллионов лет назад), которое предоставило обильный генетический материал для экспансии семейств генов (Schnable и др., 2011). Длинные области синтении, наблюдаемые на нашей точечной диаграмме синтении, можно рассматривать как важное доказательство этого древнего события полиплоидизации (Рисунок 4). Результаты указывают на то, что экспансия копий генов ZmCYP450 была в первую очередь обусловлена проксимальной дупликацией, за которой следуют DSD, WGD и TD, тогда как TRD составила наименьшую долю (Рисунок 5B). Этот паттерн распределения согласуется с общими принципами дупликации генома у растений, а именно, что дупликация генов возникает в первую очередь из синергетических эффектов событий WGD и событий локальной дупликации (Panchy и др., 2016). После WGD неравная экспрессия между геномами растений приводит к преимущественной потере определённых генов из одного родительского субгенома (Freeling и др., 2012). В этом процессе многие гомологичные пары генов, генерированные WGD, подвергаются внутрихромосомной рекомбинации из-за потери повторяющихся последовательностей по обе стороны гена или обширной инсерции транспозонов; этот процесс называется фракционацией, и такая неканоническая рекомбинация является первичным механизмом, движущим фракционацию. Следует отметить, что этот механизм не является вредным; хотя гены теряют определённые сегменты, они также перестраиваются в новые регуляторные паттерны, делая функцию генов более гибкой (Woodhouse и др., 2010). На карте коллинеарности события тандемной дупликации и проксимальной дупликации в основном распределены вблизи диагонали и показывают локализованные кластеры высокой плотности, что указывает на то, что экспансия семейства генов имеет тенденцию происходить в определённых областях хромосомы (Рисунок 5A). Эти локализованные события дупликации не случайны, а являются результатом высокой эволюционной активности в этих областях (Cannon и др., 2004). Напротив, гомологичные гены, генерированные общегеномной дупликацией (WGD) и рассеянной дупликацией, показывают более дисперсное распределение. Путём сравнения хромосом B73 против Mo17 и B73 против Oh7B мы наблюдали более длинные коллинеарные сегменты, тогда как другие сорта показывали более фрагментированную структуру коллинеарности. Это может быть связано с тем, что по сравнению с B73 эти два сорта претерпели более недавние геномные структурные вариации. В частности, сравнение геномов B73 и Mo17, проведённое Sun и др., показало, что примерно 10% генов между ними являются неколлинеарными, и более 20% генов содержат мутации с большим эффектом или структурные вариации (Sun и др., 2018). Эти определённые сегменты возникают независимо в несвязанных позициях в геноме и впоследствии сохраняются (Eichten и др., 2011); поэтому мы предполагаем, что ситуация с Oh7B аналогична. Это подразумевает, что специфичность и разнообразие между сортами в значительной степени генерируются, теряются или сохраняются независимо по различным сортам через этот неколлинеарный, дисперсный механизм. Сравнительный анализ коллинеарности дополнительно указывает на то, что позиции большинства генов ZmCYP450 высококонсервативны по различным сортам; однако незначительные вариации в порядке генов всё ещё наблюдаются в определённых геномных областях. Хромосома 5 особенно примечательна, где были обнаружены межхромосомные косые связи (Burnham и др., 1972). Эти паттерны, вероятно, отражают незначительные локальные отклонения в порядке генов, а не масштабные структурные перестройки, способствуя внутривидовой геномной изменчивости кукурузы. Такие незначительные вариации могут тонко влиять на регуляцию генов и фенотипическое разнообразие, хотя большинство эффектов не легко наблюдаемы на макроскопическом уровне (Crow и др., 2020).
Анализ соотношений Ka/Ks указывает на то, что эволюция семейства ZmCYP450 показывает высокую общую консервативность (Рисунок 6); среднее значение Ka/Ks ниже 0,5 является типичным сигналом сильного очищающего отбора (Mallikarjuna и др., 2024). Это свидетельствует о том, что очищающий отбор, действующий на семейство генов ZmCYP450 в целом, является широко распространённым явлением, а не исключением в геноме кукурузы (Yan и др., 2024), и этот сильный очищающий отбор может оказывать значительное влияние на эволюцию ZmCYP450 (Zhang и др., 2023a). Однако мы также идентифицировали определённые ортогруппы, показывающие признаки интенсивного положительного отбора (Ka/Ks > 1), наиболее заметно OG0000003 и OG0000008, которые дали значения Ka/Ks, превышающие 3. OG0000003 соответствует семейству CYP85 (например, Zm00020ab072260 и Zm00021ab290340), которое включает несколько быстро эволюционирующих членов. Аналогично, OG0000008 в первую очередь связана с семейством CYP72, охватывающим дивергентные локусы, такие как Zm00026ab160340 и Zm00042ab164570. Учитывая, что сайты положительного отбора часто обогащены в субстрат-связывающих областях и активных сайтах, это интенсивное селективное давление, вероятно, модифицировало структуры белков, тем самым придавая этим определённым генам новые каталитические функции (Almeida и др., 2016). Мы предполагаем, что эти быстро эволюционирующие подсемейства CYP85 и CYP72 служат ключевыми движущими силами видеспецифичных ответов кукурузы на экологические вызовы. В совокупности эти результаты раскрывают, что, хотя семейство ZmCYP450 сохраняет базовую метаболическую стабильность, оно одновременно расширяет потенциальное функциональное разнообразие через быструю эволюцию определённых генных подсемейств для удовлетворения различных потребностей развития и окружающей среды.
4.3 Эволюционные стратегии и функциональная диверсификация в семействе CYP450: баланс между консервацией и экспансией
Филогенетический анализ указывает на то, что CYP51, CYP710 и CYP711 являются одними из наиболее консервативных семейств CYP450 у растений; члены этих семейств в основном встречаются в виде единичных копий или в очень низком числе копий, принадлежа к односемейным кланам CYP (Рисунок 7). Поскольку они кодируют фундаментальные и высококонсервативные ферменты и подвергались очищающему отбору на протяжении длительной эволюции, это свидетельствует о том, что такие гены служат «коровыми якорями» для поддержания базовых жизненных функций. Подвергаясь сильному очищающему отбору, они обеспечивают стабильность определённых критических фундаментальных биологических процессов, таких как биосинтез стеринов (Nelson и Werck‐Reichhart, 2011). С другой стороны, клан CYP71, типичный представитель A-типа, претерпел значительную экспансию (Wang и др., 2025). Огромное число генов, генерированных быстрой экспансией этой ветви, не только составляет основную часть филогенетического дерева, но и отражает метаболическую защитную систему, которую кукуруза построила в ходе своей долгосрочной эволюции для противостояния сложным биотическим стрессам. Например, многие члены семейства CYP71, как было показано, участвуют в биосинтезе монотерпенов, включая CYP71A1 — первый идентифицированный ген в семействе CYP450 — который участвует в гидроксилировании монотерпенов нерола и гераниола (Hallahan и др., 1992). Примечательно, что кланы CYP86 и CYP85, участвующие в окислении липидов и метаболизме гормонов, показывают дисперсный паттерн экспансии. Это независимое событие дупликации по подсемействам резко контрастирует с концентрированной экспансией клана CYP71. Это связано с тем, что эти два клана уже существовали до дивергенции голосеменных и покрытосеменных (Troitsky и др., 1991); их древнее происхождение и дисперсные паттерны экспансии привели к распределению их членов по различным геномным локациям, отражая более дисперсный и независимый паттерн накопления копий (Wang и др., 2023). Мы предполагаем, что этот паттерн распределения облегчает модуляцию функции по различным эволюционным линиям, позволяя этим генам реагировать на АБК и абиотический стресс и, следовательно, показывать разнообразные профили экспрессии в различных тканях (Wang и др., 2023), тем самым достигая точной регуляции процессов развития и передачи сигналов. Семейство генов ZmCYP450 в полной мере использует эту уникальную эволюционную архитектуру для обеспечения ограниченной экспансии при одновременном стабильном поддержании целостности своих коровых функций, тем самым составляя стабильную основу для метаболической сети растения.
4.4 Двойные эффекты структурной вариации на эволюцию семейства ZmCYP450: потенциальная потеря канонической функции и модуляция экспрессии
Традиционные исследования были в первую очередь сосредоточены на тонкой настройке функции генов однонуклеотидными полиморфизмами (SNP) (Gan и др., 2024), тогда как результаты данного исследования свидетельствуют о том, что структурные варианты (SV) могут служить ключевым макроуровневым механизмом, движущим эволюцию определённых линий внутри семейства ZmCYP450. Мы идентифицировали пять генов-кандидатов с наиболее выраженной вариацией (Рисунок 8). По сравнению с референсным геномом B73 эти гены показывают масштабные делеции различной степени у других сортов. Такие масштабные геномные делеции хорошо документированы и обычно сохраняются в пангеномах, поскольку функционально избыточные гены могут потенциально компенсировать потерю, однако делеция часто приводит к потенциальной локальной потере функции самого гена (Liu и др., 2012). Для исследования потенциального влияния структурных вариантов на функцию генов мы приоритизировали два гена, наиболее значительно затронутых SV, для углублённого анализа (Рисунок 7). У CML52 Zm00001eb003230 претерпел делецию размером 3702 п.н., охватывающую предсказанный промотор и кодирующие области (Рисунок 8), что серьёзно нарушило структуру гена. Такие крупные события делеции могут нарушать промоторные области и удалять цис-регуляторные последовательности (Рисунок 11A), тем самым снижая транскрипционную активность. Учитывая, что почти половина SV, пересекающихся с кодирующими последовательностями у кукурузы, значительно связаны с транскриптомной дисперсией, эти варианты часто приводят к серьёзному снижению или полной потере экспрессии, потенциально делая локус нефункциональным аллелем у затронутых образцов (Alonge и др., 2020). Соответственно, на белковом уровне его предсказанные ключевые каталитические домены (I-спираль, K-спираль, PERF и гем-связывающий сайт) были полностью отсутствуют. Поскольку нарушение этих коровых каталитических мотивов широко признано серьёзно нарушающим ферментативную активность (Schuler и Rupasinghe, 2011), весьма вероятно, что этот ген потерял свою каноническую функцию у CML52 (Рисунок 10B). Напротив, Zm00001eb056850 показывает совершенно иной эволюционный паттерн: его предсказанная длина белка в основном согласуется с таковой у референсного сорта, и типичные домены CYP450 остаются интактными (Рисунок 10A). Эта консервативность свидетельствует о том, что функциональные ограничения могли поддерживать целостность коровых доменов CYP450 в ходе эволюции, ограничивая его коровую белковую структуру для обеспечения поддержания основных физиологических процессов (Liu и др., 2015). Хотя несинонимичные замены наблюдались в таких областях, как 240–250 а.о., коровые домены CYP450 оставались интактными, что свидетельствует о том, что общая белковая архитектура в значительной степени сохранялась; эта пластичность позволяет определённым членам потенциально адаптироваться к новым субстратам без нарушения общей складчатой структуры и базальной каталитической способности (Jung и др., 2011). Кроме того, SV-ассоциированные изменения последовательности в промоторной области изменили распределение нескольких цис-регуляторных элементов по сравнению с референсным генотипом (Рисунок 11B). Такие структурные модификации обычно считаются мягкими и часто недостаточны для полного заглушения гена (Shen и др., 2022), что свидетельствует о том, что структурные варианты в этом локусе проявляются как эволюционная модуляция экспрессии, а не как функциональное нарушение. В целом представленные здесь тематические исследования демонстрируют, что структурные варианты могут играть двойную роль в эволюции семейства ZmCYP450: масштабные делеции могут приводить к потере функции генов в определённых локусах, тогда как умеренные SV-ассоциированные изменения последовательности могут способствовать экспрессионной дивергенции, тем самым облегчая потенциальную функциональную диверсификацию этого семейства по различным генетическим фонам.
4.5 Механизм ремоделирования экспрессии ZmCYP450, обусловленный структурным полиморфизмом и нелинейным дозовым ответом
Хотя общее число копий этого семейства остаётся относительно стабильным по 27 сортам, полиморфные состояния, такие как «типичные», «атипичные» и «отсутствующие», широко присутствуют в нём и показывают отчётливый паттерн распределения (Рисунок 12). Присутствие и отсутствие этой генной структуры распространены у индивидуумов кукурузы (Lian и др., 2024), вероятно, в результате продолжающейся геномной перестройки в ходе процесса одомашнивания, тем самым отражая параллельный паттерн приобретения и потери генов (Gui и др., 2022). Это явление предоставляет возможность для изучения несовместимости генетических взаимодействий (Li и Lee, 2023). Анализ экспрессии показал, что транскрипционные уровни семейства ZmCYP450 показывают высокодинамичные колебания по различным сортам и тканям (Рисунок 13). Нет простой положительной корреляции между общими транскрипционными уровнями и числами копий генов, поскольку разные гены значительно различаются по реакции на изменения числа копий; некоторые показывают паттерны, согласующиеся с «дозовой компенсацией», тогда как другие являются «дозочувствительными» (Zuo и др., 2016), тем самым обеспечивая модуляцию экспрессионной сети (Рисунок 14). Примечательно, что, хотя атипичные гены относительно немногочисленны, они сохраняют обнаруживаемую транскрипционную активность во многих тканях, с особенно повышенным уровнем экспрессии в метёлке. Это подтверждает, что физическая делеция генов не обязательно приводит к постоянному заглушению во всех тканях; скорее, такие гены могут быть реактивированы в определённых тканевых комбинациях (Li и др., 2021). В корреляционном анализе мы обнаружили, что базальные метаболические ткани побега, листа и метёлки — которые, как ожидается, будут обогащены экспрессией генов — показывают отрицательную корреляцию с экспрессией генов. Это может быть связано с геномным дисбалансом; такая обратная корреляция приводит к снижению уровней экспрессии многих генов при увеличении дозы определённых хромосомных областей, тем самым восстанавливая баланс всей сети экспрессии генов (Birchler и Yang, 2025).
4.6 Экспрессионная диверсификация генов ZmCYP450 и её значение для функциональной адаптации
Исследования показали, что значение τ является чрезвычайно эффективным методом для обеспечения точных результатов по различным наборам данных путём количественной оценки тканеспецифичной экспрессии генов (Kryuchkova-Mostacci и Robinson-Rechavi, 2017). Поэтому мы решили включить значение τ для проведения более комплексного анализа тканевой экспрессии. Внутри семейства ZmCYP450 значения τ показывают в целом правостороннее распределение со средним значением 0,71 (Рисунок 15). Эта высокая степень специфичности свидетельствует о том, что разнообразие семейства ZmCYP450 специально предназначено для выполнения тканеспецифичных функций (Das и др., 2023), что означает, что семейство содержит большое число тканеспецифичных генов, чтобы позволить различным тканям осуществлять более тонкие биохимические реакции. Гены, классифицированные как «Ultra-specific» (τ > 0,98), дополнительно поддерживают вышеуказанное наблюдение: экспрессия этого класса генов строго тканеограничена, значительно повышена в определённых тканях и в значительной степени неактивна в других (Дополнительный рисунок 1A). Например, репрезентативные гены ортогрупп OG0000060, OG0000104 и OG0000103, принадлежащих к семействам CYP704 и CYP71, показывают сильную тканевую специфичность. Репрезентативный ген OG0000060 Zm00001eb005300 преимущественно экспрессирован в метёлке, тогда как Zm00001eb165620 (OG0000104) и Zm00001eb165580 (OG0000103) высоко экспрессированы в побеге. Эта пространственная экспрессионная дивергенция свидетельствует о том, что эти гены участвуют в специализированных вторичных метаболических путях и выполняют высокоспециализированные биологические функции (Wang и др., 2021; Lüleci и Yılmaz, 2022). Помимо тканеспецифичных различий в экспрессии, наше исследование выявило существенную экспрессионную изменчивость генов ZmCYP450 по различным генетическим фонам (Дополнительный рисунок 1B). Примечательно, что две ортогруппы, OG0000210 и OG0000060, показывают выраженную экспрессионную дивергенцию среди инбредных линий кукурузы. Гены Zm00001eb404780 (OG0000210) и Zm00001eb005300 (OG0000060) показали поразительные различия в уровнях экспрессии по различным генетическим фонам и тканям. Это явление свидетельствует о том, что помимо тканеспецифичной регуляции генетический фон также может представлять важный фактор, формирующий паттерны экспрессии генов ZmCYP450, что согласуется с предыдущими находками, сообщёнными в исследованиях CYP450 кукурузы (Xian и Zhang, 2018). Примечательно, что эти две ортогруппы принадлежат к категориям Highly specific и Ultra-specific соответственно, и их экспрессионная дивергенция была в значительной степени ограничена ограниченным числом определённых тканей, а не происходила равномерно по всем тканям. Предыдущие исследования продемонстрировали, что один и тот же ген может подвергаться функциональной дифференциации по различным генетическим фонам путём модуляции собственного уровня экспрессии, тем самым изменяя экспрессию нижележащих ответных путей и в конечном итоге влияя на фенотипы растений (Sun и др., 2024). Поэтому выраженная экспрессионная дивергенция, наблюдаемая у этих высокотканеспецифичных генов, может отражать важный механизм, лежащий в основе функциональной диверсификации внутри популяции кукурузы. Основываясь на этих находках, будущие исследования, интегрирующие редактирование генома с помощью CRISPR/Cas9 с феномическими подходами, позволят глубже понять биологические функции этих высокотканеспецифичных генов, в частности их роль в биосинтезе и накоплении вторичных метаболитов, а также их вклад в биотические и абиотические стрессовые ответы.
Помимо различий в экспрессии между сортами, экспрессионная дивергенция внутригеномных паралогичных генов ZmCYP450 демонстрирует, что гены внутри одного генома могут устанавливать различные паттерны экспрессии по различным тканям. Например, в OG0000000 (Zm00001eb339130, Zm00001eb339150, Zm00001eb339170) и OG0000007 (Zm00001eb097920, Zm00001eb100200, Zm00001eb100210) тканевые экспрессионные предпочтения отдельных членов дополняют друг друга, позволяя генам из одной ортогруппы дифференцироваться и выполнять свои собственные уникальные физиологические функции. Эти события экспрессионной дивергенции могут обеспечить потенциальную основу для предполагаемой неофункционализации среди членов семейства ZmCYP450, тем самым облегчая точную регуляцию метаболических ответов в различных органах кукурузы (Hughes и др., 2014).
5 Заключение
Данное исследование провело систематический анализ семейства ZmCYP450 на пангеномном уровне, раскрывая обширную структурную вариацию и внутривидовое разнообразие, несмотря на общий консервативный фон. Результаты указывают на то, что это семейство показывает как стабильность, так и пластичность в ходе эволюции, поддерживая коровые функции при одновременном непрерывном генерировании нового функционального потенциала через генетическую изменчивость. Основываясь на этих находках, данное исследование установило аналитическую структуру, интегрирующую структурную вариацию, эволюционные паттерны и профили экспрессии, тем самым углубляя наше понимание функциональной дифференциации и эволюционной диверсификации семейства ZmCYP450. Эти результаты не только обогащают наше понимание эволюционных механизмов семейства ZmCYP450, но и предоставляют ценные идеи для молекулярной селекции кукурузы и связанных функциональных исследований.
Дополнительные материалы
Дополнительные материалы к данной статье можно найти онлайн по адресу: https://www.frontiersin.org/articles/10.3389/fpls.2026.1874015/full#supplementary-material
Qi W, Wang J, Chang J, Bu H, Xiao J, Zhang N and Ren Z (2026) Pan-genome analysis reveals structural variation- associated expression and evolutionary diversity of the ZmCYP450 gene family in maize. Front. Plant Sci. 17:1874015. doi: 10.3389/fpls.2026.1874015
Перевод статьи «Pan-genome analysis reveals structural variation- associated expression and evolutionary diversity of the ZmCYP450 gene family in maize» авторов Qi W, Wang J, Chang J, Bu H, Xiao J, Zhang N and Ren Z, оригинал доступен по ссылке. Лицензия: CC BY. Изменения: переведено на русский язык
Фото: Designed by Freepik




Комментарии (0)