
Как глубина посева и глюкозинолаты спасают всходы рапса от засухи и переувлажнения
Определение оптимальной глубины посева, подходящей для различных водных условий, является ключевым агрономическим фактором для укоренения культуры и потенциальной урожайности. Целью данного исследования было определить оптимальную глубину посева рапса, обеспечивающую максимальную жизнеспособность проростков в различных водных условиях.
Аннотация
Методы: Оценивали всхожесть проростков и рост растений в четырёх водных условиях (переменное увлажнение, засуха, нормальное увлажнение и переувлажнение) при различных глубинах посева (1–5 см). Кроме того, была проверена гипотеза о том, что жизнеспособность проростков при глубоком посеве может быть улучшена путём экзогенного применения глюкозинолатов (ГС).
Результаты: Результаты показали, что наибольший процент всхожести проростков (ВП) наблюдался при глубине 3 см, что представляет собой увеличение на 123,2% (переменное увлажнение), 100% (засуха) и 11,1% (нормальное увлажнение) по сравнению с 1 см. В условиях стресса переувлажнения ВП проростков не показал значительных различий между 1 и 3 см у 50% из 16 сортов. Более того, ВП проростков значительно улучшился при 3 см после обработки семян ГС по сравнению с 1 см, с увеличением на 46,4% (засуха) и 63,0% (переувлажнение), тогда как при нормальных водных условиях значительных различий не наблюдалось. Кроме того, показатели фенотипической продуктивности растений были выше при 3 см с обработкой ГС, чем при 1 см, во всех водных условиях.
Обсуждение: В совокупности глубина посева 3 см в сочетании с экзогенным применением ГС не только способствовала всхожести проростков, но и благоприятно влияла на последующий рост растений при прямом посеве рапса. Эти результаты дают практические рекомендации для обеспечения надёжного укоренения проростков рапса.
1 Введение
Рапс/канола (Brassica napus L.) — важная масличная культура, выращиваемая в севооборотах умеренного пояса с зерновыми культурами, с мировой площадью производства около 37,1 × 10⁶ га. Из них 7 × 10⁶ га возделывается в Китае (FAO, 2020). Баланс почвенной влаги и доступность воды играют решающую роль в росте культур (Forcella и др., 2000; Yi и др., 2022). Как избыток, так и дефицит воды приводят к трудностям с всхожестью проростков, плохой выравненности проростков и большим колебаниям густоты растений, что препятствует оптимальному формированию полога и приводит к недостаточным уборочным урожаям. Однако дефицит почвенной влаги увеличивается в основных регионах производства рапса умеренного пояса из-за изменений растительности и глобального потепления (Chai и др., 2025). Действительно, за последние 20 лет длительная засуха стала полупостоянным климатом в Европе (Christidis and Stott, 2021; Ionita и др., 2022). Бассейн реки Янцзы (БРЯ) занимает около 90% площади рапса в Китае, 80% которой приходится на прямое сеяние полузимнего типа. Метеорологические данные за последние 10 лет из Национального метеорологического информационного центра (Китайское метеорологическое управление) также показывают частый стресс от засухи в период посева (сентябрь–октябрь). В течение следующих 30 лет во многих регионах Китая прогнозируется более частые, суровые и продолжительные засухи (Zeng и др., 2021). Семена рапса мелкие и имеют надземные семядоли, с рекомендациями по подходящей глубине посева в поле около 1 см (Harker и др., 2012). Однако содержание влаги в верхнем слое почвы подвержено значительным колебаниям, которые усиливают стресс от засухи и ухудшают всхожесть проростков. Поэтому достижение высокой и равномерной всхожести проростков после посева является первым ключевым шагом к оптимизации урожайности.
С увеличением глубины почвы скорость испарения воды снижается, а стабильность относительного содержания почвенной влаги (СПВ) возрастает. По мере уменьшения влияния колебаний почвенной влаги на семена происходит соответствующее увеличение жизнеспособности проростков, накопления сухого вещества и распределения его в проросток (Proctor and Sullivan, 2013; Gesch и др., 2017; Ali and Bubaker, 2019). Умеренно глубокий посев в условиях дефицита воды therefore может не только улучшить энергию всхожести проростков, но и способствовать росту взрослых растений и потенциальной урожайности (Yagmur and Kaydan, 2009; Cheng и др., 2016; Zuo и др., 2017). Однако в БРЯ в некоторые годы наблюдается непрерывное увеличение осадков после посева рапса, что приводит к переувлажнению почвы (Национальный метеорологический информационный центр, Китайское метеорологическое управление). Это приводит к усилению стресса во время прорастания семян с увеличением глубины посева (Kanno и др., 2025). Кроме того, когда глубина посева слишком велика, время, необходимое для прорастания семян и появления проростков, удлиняется, а трудность появления проростков возрастает, вместе с большей уязвимостью к атаке патогенов (Zuo и др., 2017; Lamichhane and Soltani, 2020), плохой аэрацией почвы и накоплением токсичных веществ, все из которых подавляют прорастание семян и снижают выравненность проростков (Dozet и др., 2020). Более того, разные генотипы проявляют значительные различия в толерантности к глубокому посеву (Sohail и др., 2025). Поэтому определение оптимальной глубины посева, подходящей для различных водных условий, является ключевым агрономическим фактором для укоренения культуры и потенциальной урожайности.
Глюкозинолаты (ГС) — это класс вторичных метаболитов, преимущественно встречающихся в Brassicaceae и играющих ключевую роль в реакциях растений как на биотические, так и на абиотические стрессы (Jahangir и др., 2009; Xu и др., 2018; Chowdhury, 2022; Luo и др., 2022). Обширные исследования продемонстрировали, что ГС является центральным компонентом сложной системы защиты у Brassicaceae (Sharma и др., 2025). При гидролизе мирозиназой ГС образует биологически активные соединения, такие как изотиоцианаты и нитрилы, которые не только проявляют сильную антимикробную и инсектицидную активность, но и снижают поедаемость травоядными (Kumar и др., 2010; Sotelo и др., 2015). Помимо своих защитных функций против патогенов и травоядных, ГС и их продукты гидролиза также модулируют ферментативную активность, действуют как антиоксиданты и повышают толерантность к абиотическим стрессам, таким как засуха и засоление, через осмотическую регуляцию и регуляцию транспорта воды (Martínez-Ballesta и др., 2015; Gantait и др., 2024). Критически важно, что ГС могут активировать ключевые сигнальные пути защиты, включая те, что опосредованы жасмоновой кислотой (ЖК) и салициловой кислотой (СК), тем самым служа интегративными центрами, координирующими реакции растений на комбинированные биотические и абиотические вызовы (Yan and Chen, 2007).
Однако в современных программах селекции рапса низкое содержание ГС в семенах и низкое содержание эруковой кислоты стали стандартными критериями отбора для улучшения питательного и кормового качества, что привело к преобладанию двунулевых сортов в зерновых севооборотах (Beszterda and Nogala-Kałucka, 2019). К сожалению, это сопровождалось постепенным снижением устойчивости семян к стрессам, связанным с пониженным содержанием ГС (Ai и др., 2024). Несмотря на их признанную важность, конкретные роли отдельных соединений ГС и их продуктов гидролиза в опосредовании реакций на абиотические стрессы остаются плохо изученными. Критически важно, что неизвестно, может ли экзогенное применение ГС компенсировать сниженное эндогенное содержание ГС в современных сортах и синергировать с оптимизированной глубиной посева для улучшения всхожести проростков в условиях ограниченной влаги или глубокого посева. Насколько нам известно, это первое исследование, объединяющее скрининг оптимальной глубины посева с экзогенным применением ГС у рапса. Мы предположили, что повышение уровня ГС может улучшить всхожесть проростков при глубоком посеве и водном стрессе. Соответственно, мы оценили всхожесть проростков и ранний рост при различных глубинах посева (1–5 см) в четырёх водных режимах (переменное увлажнение, засуха, нормальное увлажнение и переувлажнение) и проверили, смягчает ли экзогенное применение ГС неблагоприятные эффекты глубокого посева. Целью данного исследования является определение агрономически оптимальных практик посева и валидация опосредованной ГС биохимической праймизации как стратегии улучшения укоренения проростков в сложных полевых условиях.
2 Материалы и методы
2.1 Материалы
В данном исследовании сравнивали продуктивность 16 ведущих сортов рапса из Китая, включая 13 гибридных и три традиционных сорта (Дополнительная таблица 1).
2.2 Экспериментальный дизайн
2.2.1 Определение оптимальной глубины посева в поле
Глубина посева влияет на доступность почвенной влаги, прорастание семян и раннее укоренение проростков (Proctor and Sullivan, 2013; Gesch и др., 2017; Ali and Bubaker, 2019). Однако оптимальная глубина посева модулируется такими факторами, как генотип и содержание почвенной влаги (Rebetzke и др., 2007; Kanno и др., 2025). Исходя из этого, мы разработали следующий эксперимент:
Полевые испытания проводились в течение 2019–2020 и 2020–2021 годов (вегетационные сезоны: сентябрь–май) в Хуанганской академии сельскохозяйственных наук (ХГ) и Сянъянской академии сельскохозяйственных наук (СЯ) в провинции Хубэй. Три сорта рапса — Huayouza62 (H), Zhongshuang11 (Z) и Huayou2101 (Y) — высевались в условиях переменного увлажнения (СПВ 30%–100%) с тремя вариантами глубины посева (Г1: 1 см, Г3: 3 см, Г5: 5 см).
Те же три сорта (H, Z, Y) были отобраны для полевых испытаний в Хуачжунском сельскохозяйственном университете в Ухане, провинция Хубэй, в течение 2021–2022 и 2023–2024 годов. Три водных условия (засуха: СПВ 30%–60%, нормальное увлажнение: СПВ 60%–90%, переувлажнение: СПВ 90%–100%) создавались с использованием дождевых укрытий. Экспериментальный дизайн включал те же три варианта глубины посева (Г1, Г3 и Г5) при каждом водном условии.
Все варианты имели две технические повторности и три биологические повторности, каждая из которых состояла из 50 семян. Количество проростков, появившихся из почвы, регистрировали через 14 дней после посева (при 21 дне в условиях стресса от засухи) для расчёта процента всхожести (ПВ) (Таблица 1), а морфологические характеристики растений измеряли через 2 месяца после посева. Азотные (N), фосфорные (P), калийные (K) и борные удобрения вносили перед посевом в дозах 9 × 10⁻³ кг/м2, 9 × 10⁻³ кг/м2, 9 × 10⁻³ кг/м2 и 1,5 × 10⁻³ кг/м2 соответственно. Применялся прямой посев с междурядьем 25 см. Физические свойства почвы перечислены в Дополнительной таблице 2.
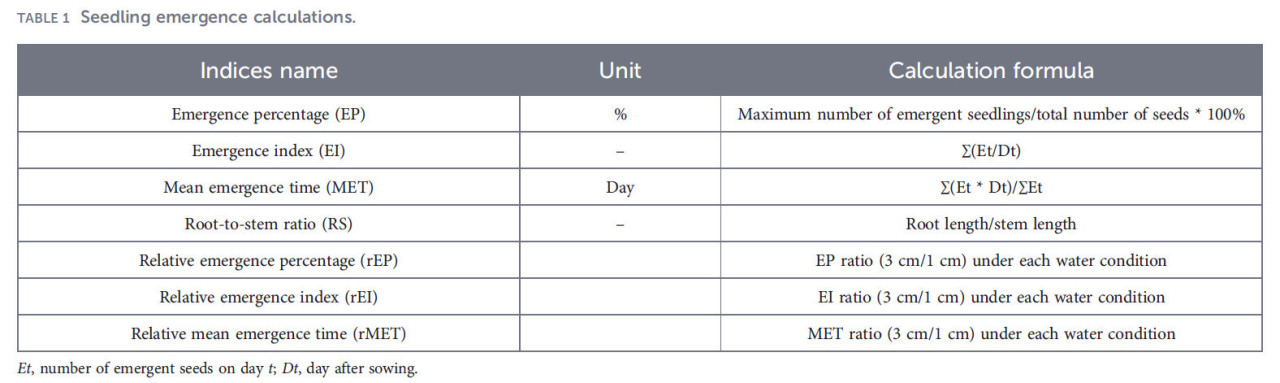
Таблица 1 Расчёт всхожести проростков.
2.2.2 Определение оптимальной глубины посева в горшках
Для точного определения интерактивных эффектов глубины посева и содержания почвенной влаги на появление семян (Kanno и др., 2025) был проведён тепличный эксперимент с использованием 16 современных сортов рапса при трёх водных условиях (засуха: СПВ 40% ± 5%; нормальное увлажнение: СПВ 70% ± 5%; переувлажнение: СПВ 100% ± 5%), с пятью вариантами глубины посева (Г1: 1 см, Г2: 2 см, Г3: 3 см, Г4: 4 см, Г5: 5 см). Дизайн включал три биологические повторности на вариант, каждая из которых состояла из 20 семян. Количество появившихся проростков подсчитывали ежедневно до 14 дней (21 дня) после посева. Рассчитывали ПВ проростков, индекс всхожести (ИВ), среднее время всхожести (СВВ), относительный процент всхожести (оПВ), относительный индекс всхожести (оИВ) и относительное среднее время всхожести (оСВВ). Длину корня и длину стебля проростков регистрировали на 14 день (21 день) для расчёта соотношения корень/стебель (КС) (Таблица 1). Все тепличные эксперименты проводились при температурном режиме 25°C/20°C, влажности воздуха 75%/70% и освещённости 13 000/0 лк в режиме 16 ч света/8 ч темноты.
2.2.3 Экзогенное применение глюкозинолата при различных водных условиях с умеренно глубоким посевом
При выбранной оптимальной глубине посева (3 см) мы стремились валидировать эффекты ГС на всхожесть и ранний рост рапса при различных условиях почвенной влаги (Martínez-Ballesta и др., 2015; Gantait и др., 2024). Тестировались три условия — засуха (СПВ 40% ± 5%), нормальное увлажнение (СПВ 70% ± 5%) и переувлажнение (СПВ 100% ± 5%) — с двумя глубинами посева (Г1 и Г3). Применялись три варианта обработки (ZS11: необработанные семена, H2O: дважды дистиллированная вода, ГС: 40 мг/л глюкозинолатов) для праймизации семян.
Количество появившихся проростков подсчитывали ежедневно до 14 дней (21 дня) после посева для расчёта ПВ (Таблица 1). Морфологические характеристики растений измеряли на стадии восьми листьев. Все агрономические практики были идентичны описанным в разделе 2.2.1.
2.2.3.1 Процедура праймизации семян
Для тепличного эксперимента использовался Zhongshuang11 (ZS11). Каждый вариант включал три биологические повторности, по 20 семян на повторность. Семена замачивали при 25°C и 120 об/мин с использованием термошейкера (HYG-A, Цзянсу, Китай) в течение 10 ч и высушивали при 25°C около 12 ч (Ai и др., 2024).
2.3 Содержание почвенной влаги
Образцы почвы (0–10 см) отбирали с контрольного участка без семян, и содержание почвенной влаги определяли методом высушивания в печи в течение около 1 дня при 105°C (Chang и др., 2005).
2.4 Определение фенотипа растений
Три растения отбирали на стадии восьми листьев для каждой биологической повторности для анализа фенотипических признаков. Длину корня и побега определяли, используя узел семядолей в качестве границы, диаметр корневой шейки измеряли штангенциркулем на узле семядолей, а общую площадь листьев измеряли с помощью LI-3100C AREA METER (LI-COR Inc., Линкольн, NE, США). Сухое вещество определяли путём разделения растений на побег и корень с последующей сушкой в печи при 105°C в течение 30 мин, затем при 80°C в течение 3–5 дней до достижения постоянной массы (Bai и др., 2024; Wang и др., 2024).
2.5 Анализ данных
Для оценки различий между вариантами данные по каждой переменной подвергали дисперсионному анализу с использованием программного обеспечения SPSS 25.0 (SPSS Inc., Чикаго, IL, США). Тесты Левена и Колмогорова–Смирнова применяли для оценки нормальности и однородности дисперсии. t-тест Стьюдента и множественный ранговый тест Дункана использовали для анализа значимых различий между вариантами. Данные полевых и горшечных экспериментов анализировали с использованием многомерного дисперсионного анализа. В полевом эксперименте год, местоположение и водные условия рассматривались как случайные эффекты для учёта неконтролируемой экологической изменчивости и поддержки более широких выводов. Фиксированные эффекты включали сорт и глубину посева. В горшечном эксперименте рассматривались только фиксированные эффекты (сорт, глубина посева и водные условия) из-за контролируемых экологических условий. Коэффициент корреляции Пирсона использовали для корреляционного анализа.
Для оценки вариации глубины посева 1–5 см в условиях засухи рассчитывали средний ПВ проростков 16 сортов. Уравнение регрессии строилось с использованием гауссова фитинга в SPSS. Регулярные остатки и F-тест использовали для обеспечения валидности и надёжности уравнения.
Данные анализировали с использованием программного обеспечения Microsoft Excel 2016 (Microsoft, Редмонд, WA, США), а графические представления генерировали с использованием программного обеспечения Origin 9.0 (OriginLab Corporation, Нортгемптон, MA, США).
3 Результаты
3.1 Всхожесть проростков и рост растений в условиях переменного увлажнения при различных глубинах посева
Содержание почвенной влаги является важным фактором, влияющим на всхожесть проростков при различных глубинах посева. В данном исследовании всхожесть проростков и рост растений изучали при трёх глубинах посева (Г1, Г3 и Г5) в условиях переменного увлажнения в ХГ и СЯ. СПВ варьировало от 30% до 100% во время всхожести проростков (Рисунки 1a, b). Более того, ПВ проростков достигал максимума при Г3 в Хуангане, при этом средний ПВ трёх сортов за оба года увеличился на 145,8% по сравнению с Г1. Однако в Сянъяне ПВ проростков увеличивался с глубиной посева в течение первого года, и ПВ трёх сортов при Г3 увеличился на 200,9% по сравнению с Г1. Напротив, значимых различий (p ≥ 0,762) между тремя глубинами посева не наблюдалось в течение второго года (Рисунки 1c, d).
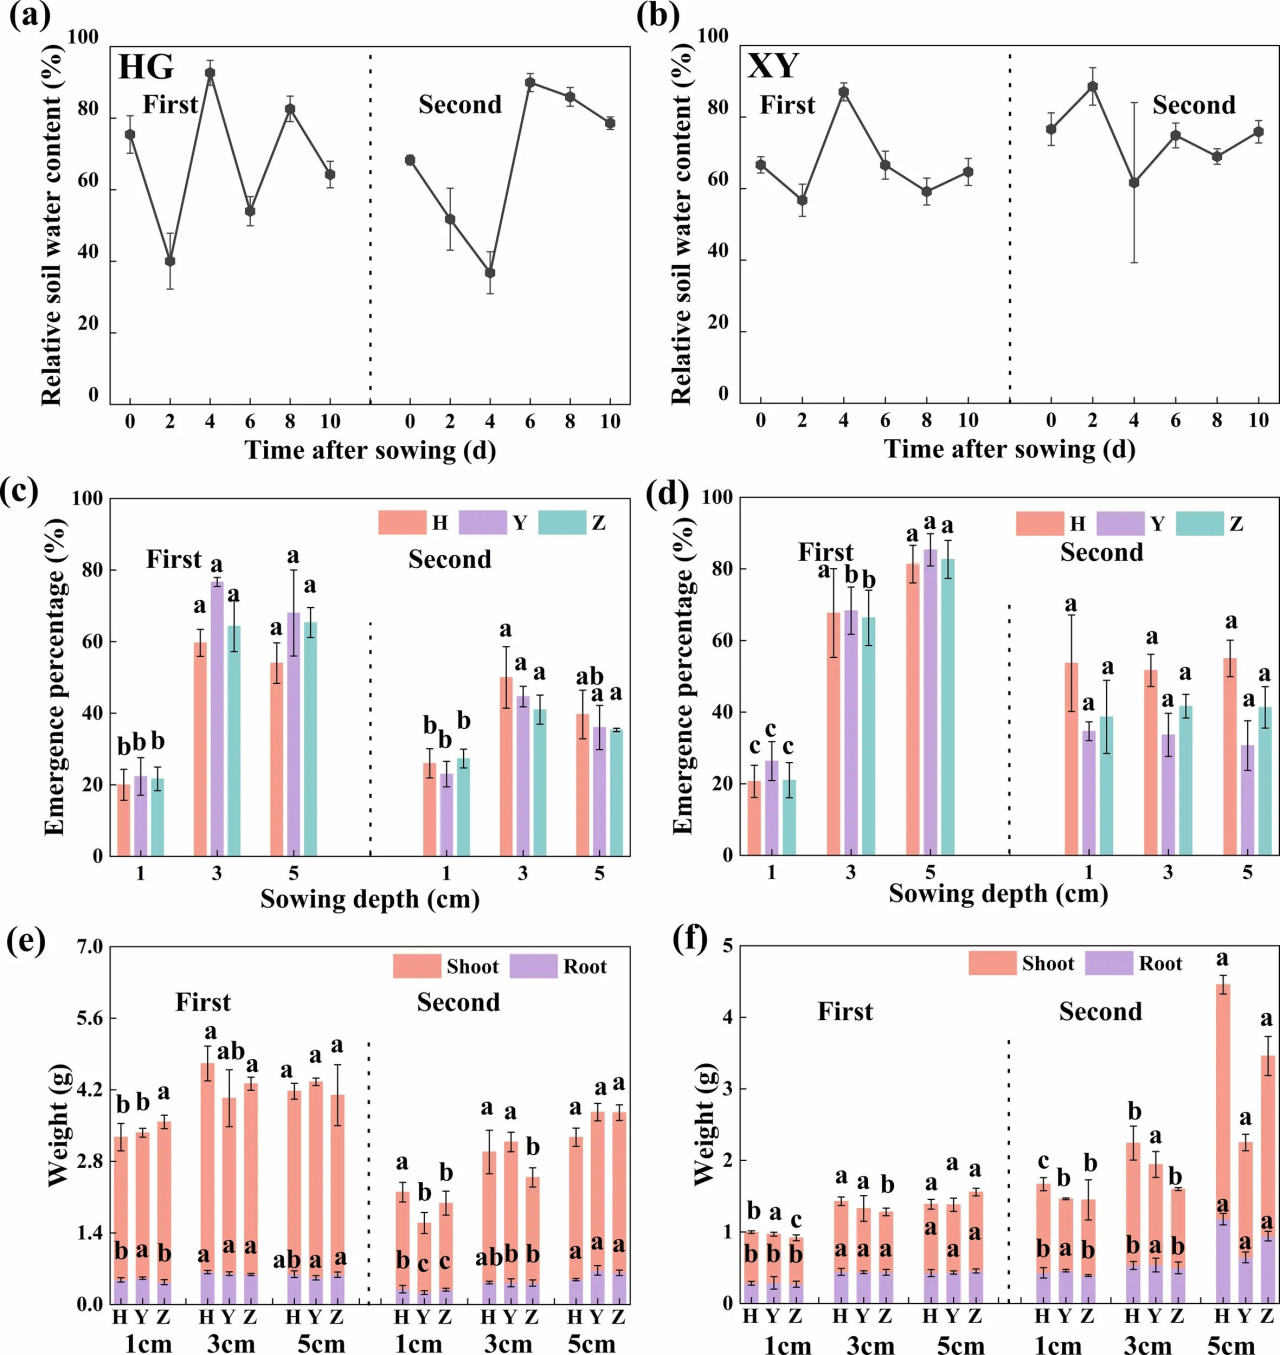
Рисунок 1 Относительное содержание почвенной влаги, всхожесть проростков и рост при различных глубинах посева в Хуангане и Сянъяне. (a, b) Относительное содержание почвенной влаги 0–10 см; (c, d) процент всхожести проростков; и (e, f) сухая масса корней и побегов в Хуангане и Сянъяне при трёх глубинах посева (1, 3 и 5 см) соответственно. Столбцы представляют ± стандартное отклонение повторностей. Малые буквы обозначают значимые различия на уровне p < 0,05 согласно тесту множественных сравнений Дункана. HG — Хуанган; XY — Сянъян; H — Huayouza62; Y — Huayou2101; Z — Zhongshuang11.
На стадии проростков значимых различий (p = 0,084) по длине корня не обнаружено между Г1, Г3 и Г5 ни в ХГ, ни в СЯ, тогда как все остальные показатели были значительно улучшены (p ≤ 0,003) при Г3 и Г5 по сравнению с Г1. Для среднего значения трёх сортов за оба года и места испытаний средняя длина корня увеличилась на 8,6% при Г3 по сравнению с Г1, как и диаметр корневой шейки (19,8%), сухая масса корней (40,8%), высота растений (18,3%), площадь листьев (21,3%) и сухая масса побегов (35,5%) (Рисунки 1e, f; Дополнительный рисунок 1).
3.2 Всхожесть проростков и рост растений в условиях нормального увлажнения при различных глубинах посева
В поле были созданы три водных условия — засуха, нормальное увлажнение и переувлажнение — для изучения влияния глубины посева (Г1, Г3 и Г5) на всхожесть проростков рапса и последующий рост растений при различных уровнях почвенной влаги.
В условиях нормального увлажнения в полевом эксперименте содержание почвенной влаги и её стабильность увеличивались с глубиной почвы во время всхожести проростков (Рисунок 2a). ПВ проростков сначала увеличивался, а затем снижался с увеличением глубины посева, достигая максимума при Г3. При этой глубине средний ПВ трёх сортов увеличился на 11,1% по сравнению с Г1 в оба года (Рисунок 2b).
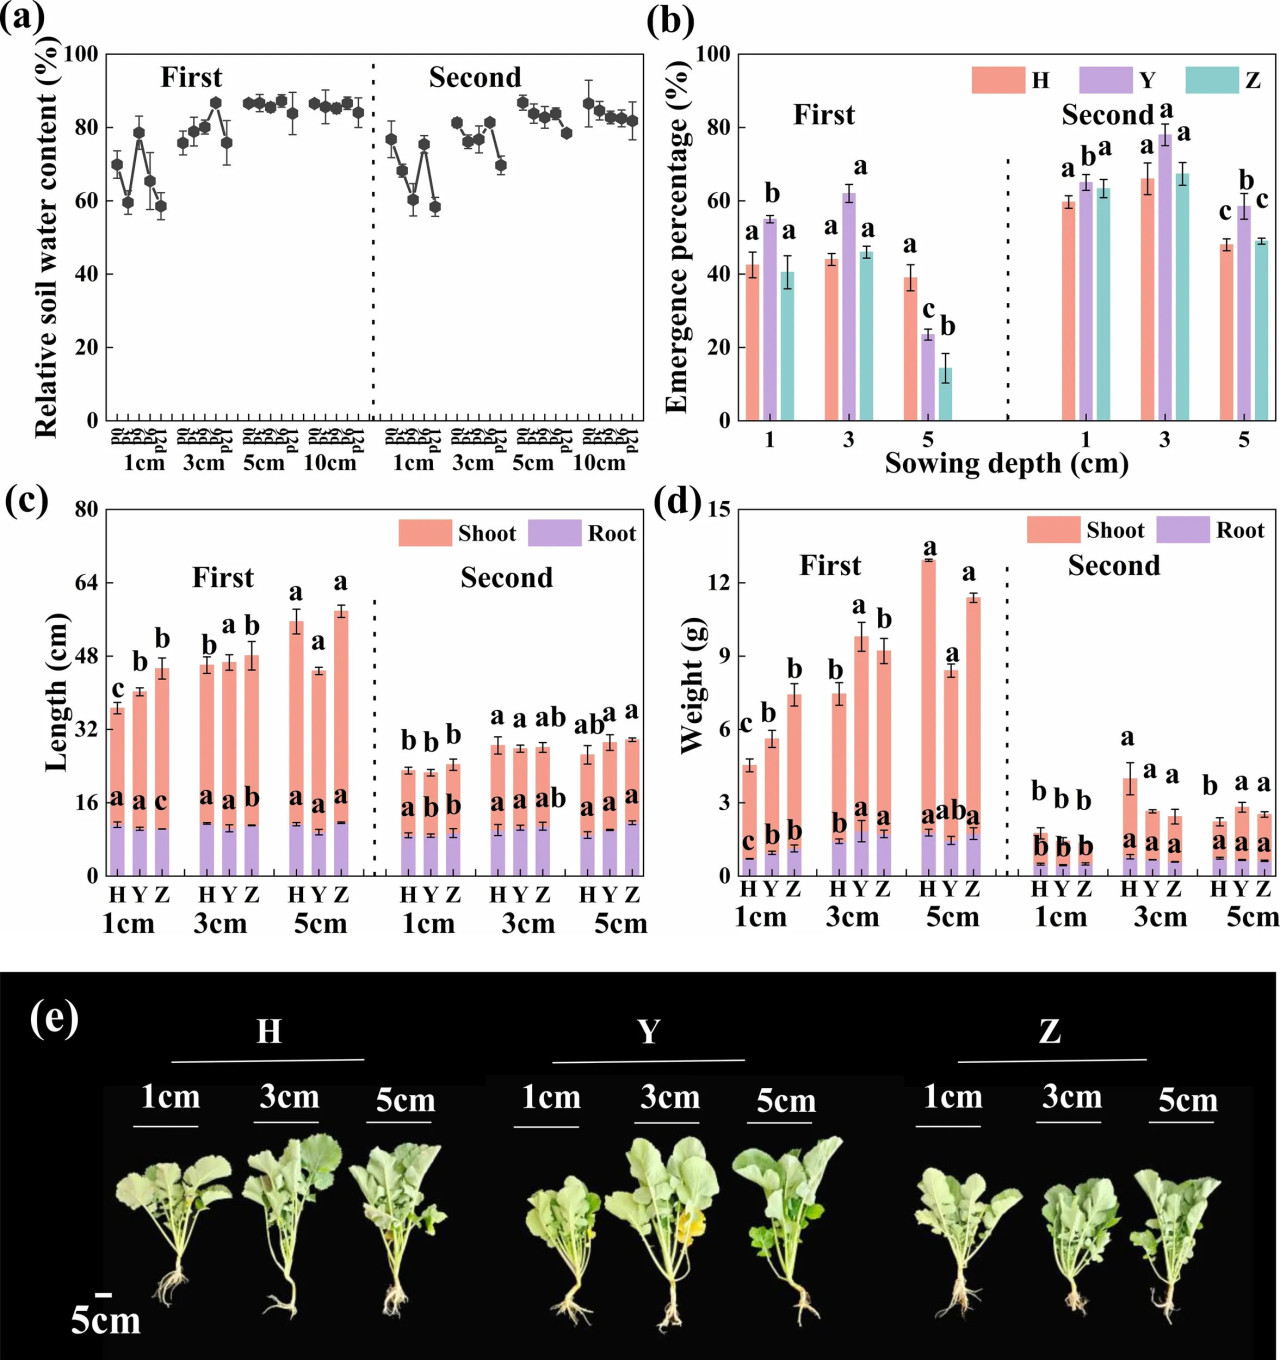
Рисунок 2 Содержание почвенной влаги, всхожесть проростков и рост при различных глубинах посева в условиях нормального увлажнения. (a) Относительное содержание почвенной влаги 0–10 см; (b) процент всхожести проростков; (c) длина корней и побегов; (d) сухая масса корней и побегов; и (e) рост растений при трёх глубинах посева (1, 3 и 5 см) соответственно. Столбцы представляют ± стандартное отклонение повторностей. Малые буквы обозначают значимые различия на уровне p < 0,05 согласно тесту множественных сравнений Дункана. H — Huayouza62; Y — Huayou2101; Z — Zhongshuang11.
На стадии проростков значимых различий (p ≥ 0,105) по длине корня или диаметру корневой шейки не наблюдалось между Г1, Г3 и Г5, тогда как все остальные показатели были значительно выше (p ≤ 0,012) при Г3 и Г5 по сравнению с Г1. Более того, длина корня увеличилась на 9,9% у трёх сортов за оба года при Г3 по сравнению с Г1, как и диаметр корневой шейки (22,1%), сухая масса корней (62,7%), высота растений (22,4%), площадь листьев (53,8%) и сухая масса побегов (86,1%) (Рисунки 2c–e; Дополнительный рисунок 2a, b).
3.3 Всхожесть проростков и рост растений в условиях стресса от засухи при различных глубинах посева
В условиях стресса от засухи в полевом эксперименте содержание почвенной влаги и её стабильность увеличивались с глубиной почвы, при этом наиболее выраженные колебания наблюдались на 1 см во время всхожести проростков (Рисунок 3a). С увеличением глубины посева ПВ проростков демонстрировал первоначальное увеличение с последующим снижением, при этом наибольшее значение наблюдалось при Г3. Средний ПВ трёх сортов увеличился на 100% при Г3 по сравнению с Г1 в оба года испытаний (Рисунок 3b).
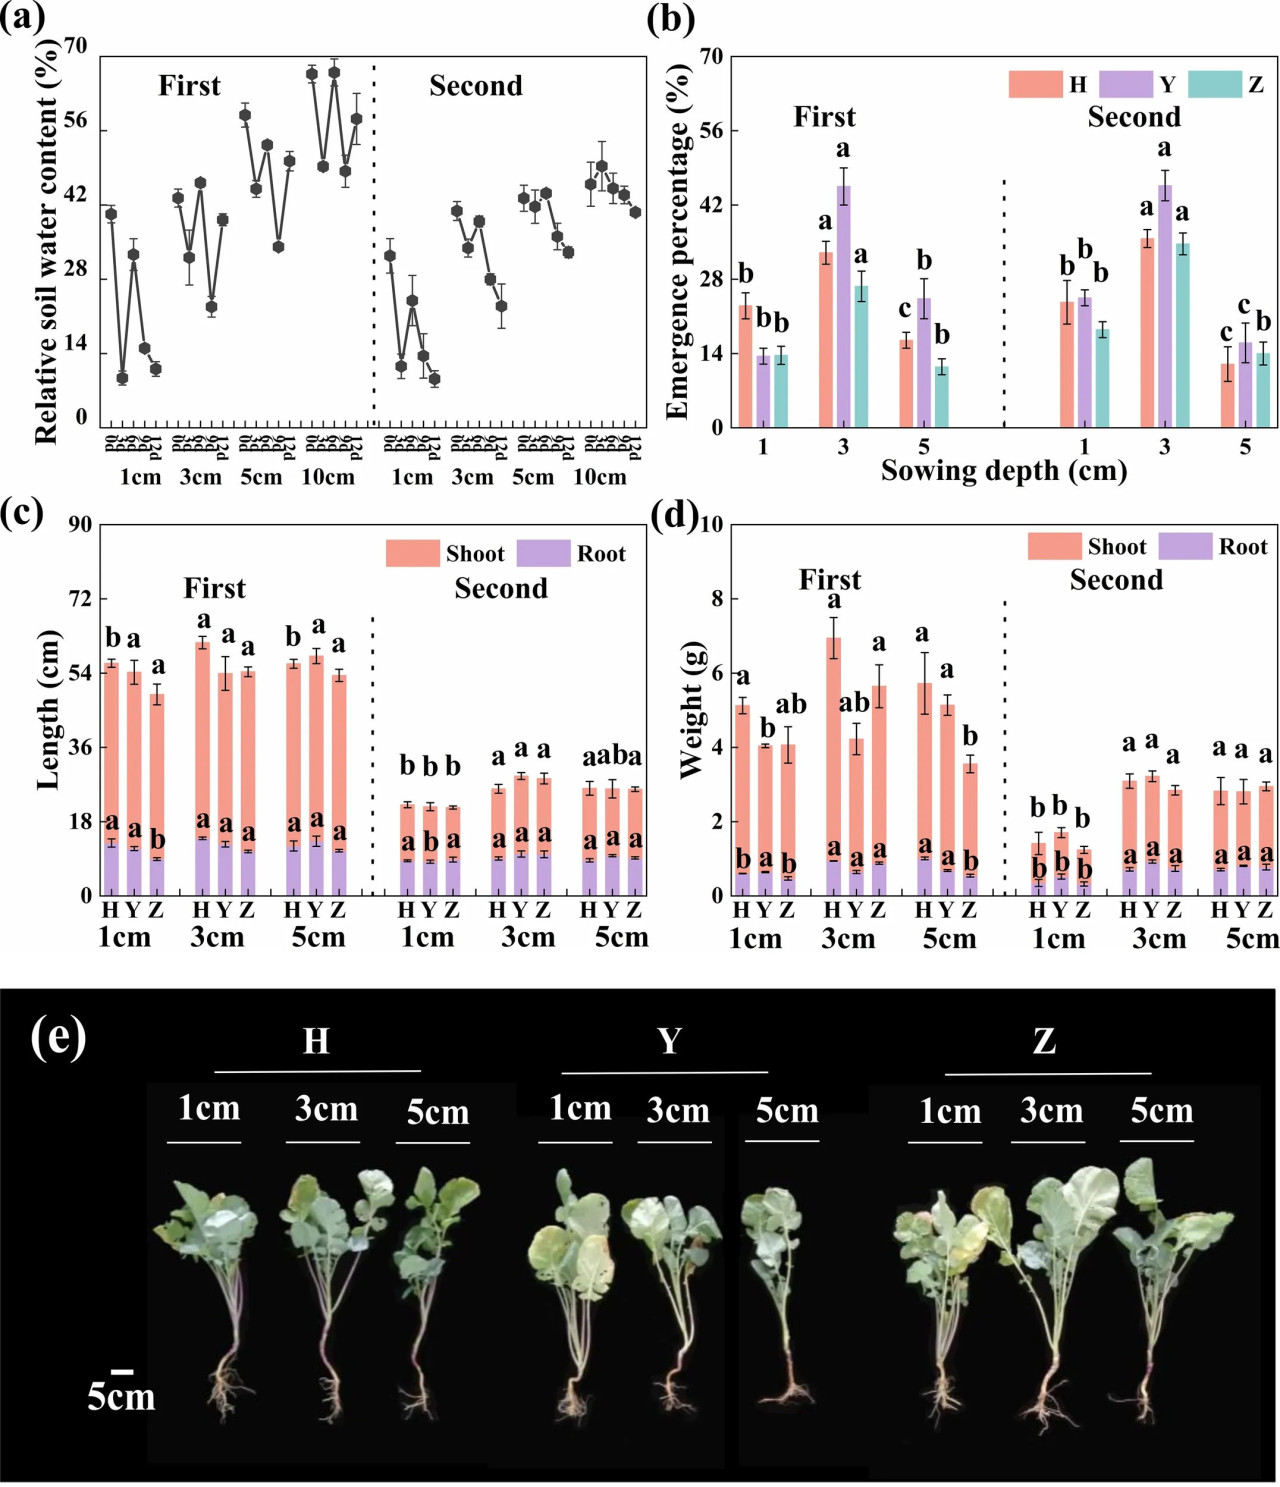
Рисунок 3 Содержание почвенной влаги, всхожесть проростков и рост при различных глубинах посева в условиях стресса от засухи. (a) Относительное содержание почвенной влаги 0–10 см; (b) процент всхожести проростков; (c) длина корней и побегов; (d) сухая масса корней и побегов; и (e) рост растений при трёх глубинах посева (1, 3 и 5 см) соответственно. Столбцы представляют ± стандартное отклонение повторностей. Малые буквы обозначают значимые различия на уровне p < 0,05 согласно тесту множественных сравнений Дункана. H — Huayouza62; Y — Huayou2101; Z — Zhongshuang11.
На стадии проростков значимых различий (p ≥ 0,082) по длине корня и сухой массе побегов не наблюдалось между Г1, Г3 и Г5, тогда как все остальные показатели были значительно выше (p ≤ 0,024) при Г3 и Г5 по сравнению с Г1. Более того, для среднего значения трёх сортов за оба года средняя длина корня увеличилась на 13,7% при Г3 по сравнению с Г1, как и диаметр корневой шейки (18,2%), сухая масса корней (75,9%), высота растений (21,1%), площадь листьев (63,9%) и сухая масса побегов (69,6%) (Рисунки 3c–e; Дополнительный рисунок 2c, d).
3.4 Всхожесть проростков и рост растений в условиях стресса от переувлажнения при различных глубинах посева
В условиях стресса от переувлажнения в полевом эксперименте содержание почвенной влаги показывало небольшие колебания по слоям почвы во время всхожести проростков (Рисунок 4a). В целом ПВ проростков снижался с увеличением глубины посева, хотя значимых различий (p ≥ 0,095) для сортов HY2101 и ZS11 в течение первого года, или для HY2101 в течение второго года, при Г3 по сравнению с Г1 не наблюдалось. Однако ПВ всех трёх сортов был значительно ниже (p < 0,001) при Г5, чем при Г1 (Рисунок 4b).
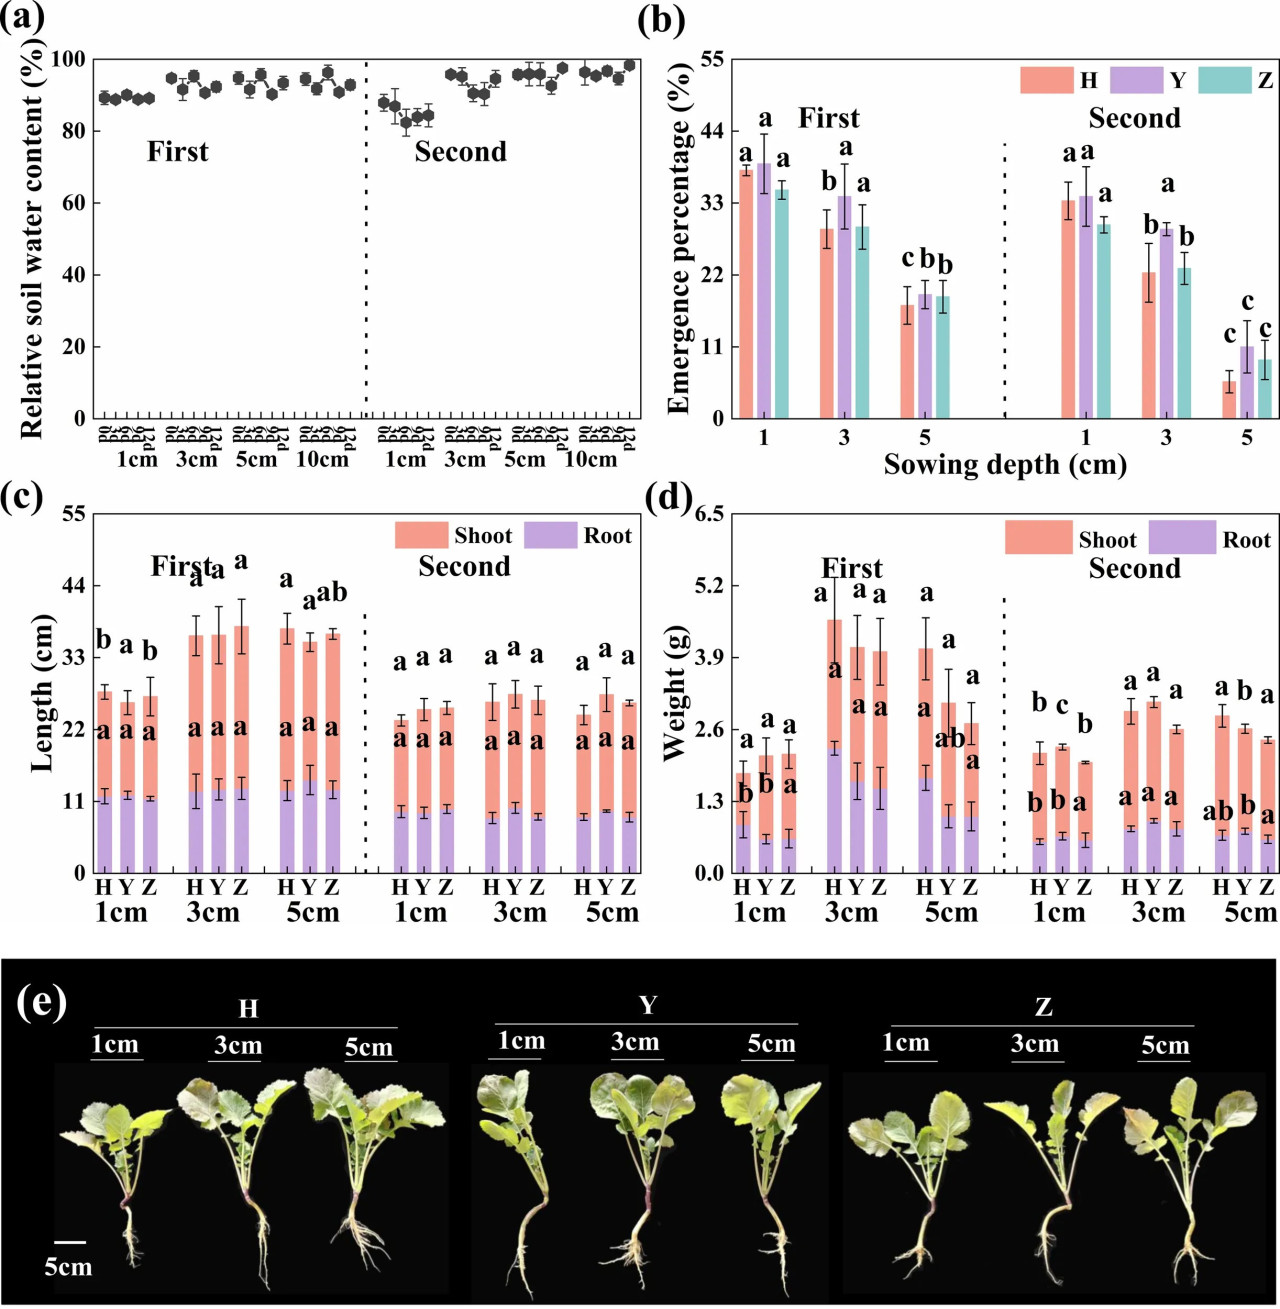
Рисунок 4 Содержание почвенной влаги, всхожесть проростков и рост при различных глубинах посева в условиях стресса от переувлажнения. (a) Относительное содержание почвенной влаги 0–10 см; (b) процент всхожести проростков; (c) длина корней и побегов; (d) сухая масса корней и побегов; и (e) рост растений при трёх глубинах посева (1, 3 и 5 см) соответственно. Столбцы представляют ± стандартное отклонение повторностей. Малые буквы обозначают значимые различия на уровне p < 0,05 согласно тесту множественных сравнений Дункана. H — Huayouza62; Y — Huayou2101; Z — Zhongshuang11.
На стадии проростков значимых различий (p ≥ 0,056) по длине корня и площади листьев не наблюдалось между Г1, Г3 и Г5, тогда как все остальные показатели были значительно увеличены (p ≤ 0,018) при Г3 и Г5 по сравнению с Г1. Между тем, для среднего значения трёх сортов за оба года средняя длина корня увеличилась на 2,2% при Г3 по сравнению с Г1, как и диаметр корневой шейки (32,3%), сухая масса корней (97,9%), высота растений (37,7%), площадь листьев (30,4%) и сухая масса побегов (61,2%) (Рисунки 4c–e; Дополнительный рисунок 2e, f).
3.5 Почвенная влага и глубина посева влияют на всхожесть и жизнеспособность проростков
В горшечном эксперименте 16 сортов рапса выращивали при трёх водных условиях (засуха, нормальное увлажнение и переувлажнение) при пяти глубинах посева (Г1, Г2, Г3, Г4 и Г5). Вариацию их реакций оценивали с помощью анализа подбора кривых для определения оптимальной глубины посева в условиях стресса от засухи.
В условиях нормального увлажнения всхожесть проростков начиналась через 2–4 дня после посева, при этом ПВ достигал максимума через 8–10 дней при всех пяти глубинах (Дополнительный рисунок 3a). С увеличением глубины посева ПВ немного снижался, но значимых различий (p ≥ 0,229) не обнаружено между Г1, Г2 и Г3 у большинства сортов. В частности, 15 сортов exhibited ПВ > 90% при Г1, как и 14 при Г2, 13 при Г3, 12 при Г4 и 10 при Г5 (Рисунок 5a). По сравнению с Г1 средний ИВ по всем сортам снизился на 24,9%, а КС проростков снизилось, тогда как СВВ увеличилось на 0,9 дня при Г3 (Рисунки 5b, g; Дополнительный рисунок 3b, c).
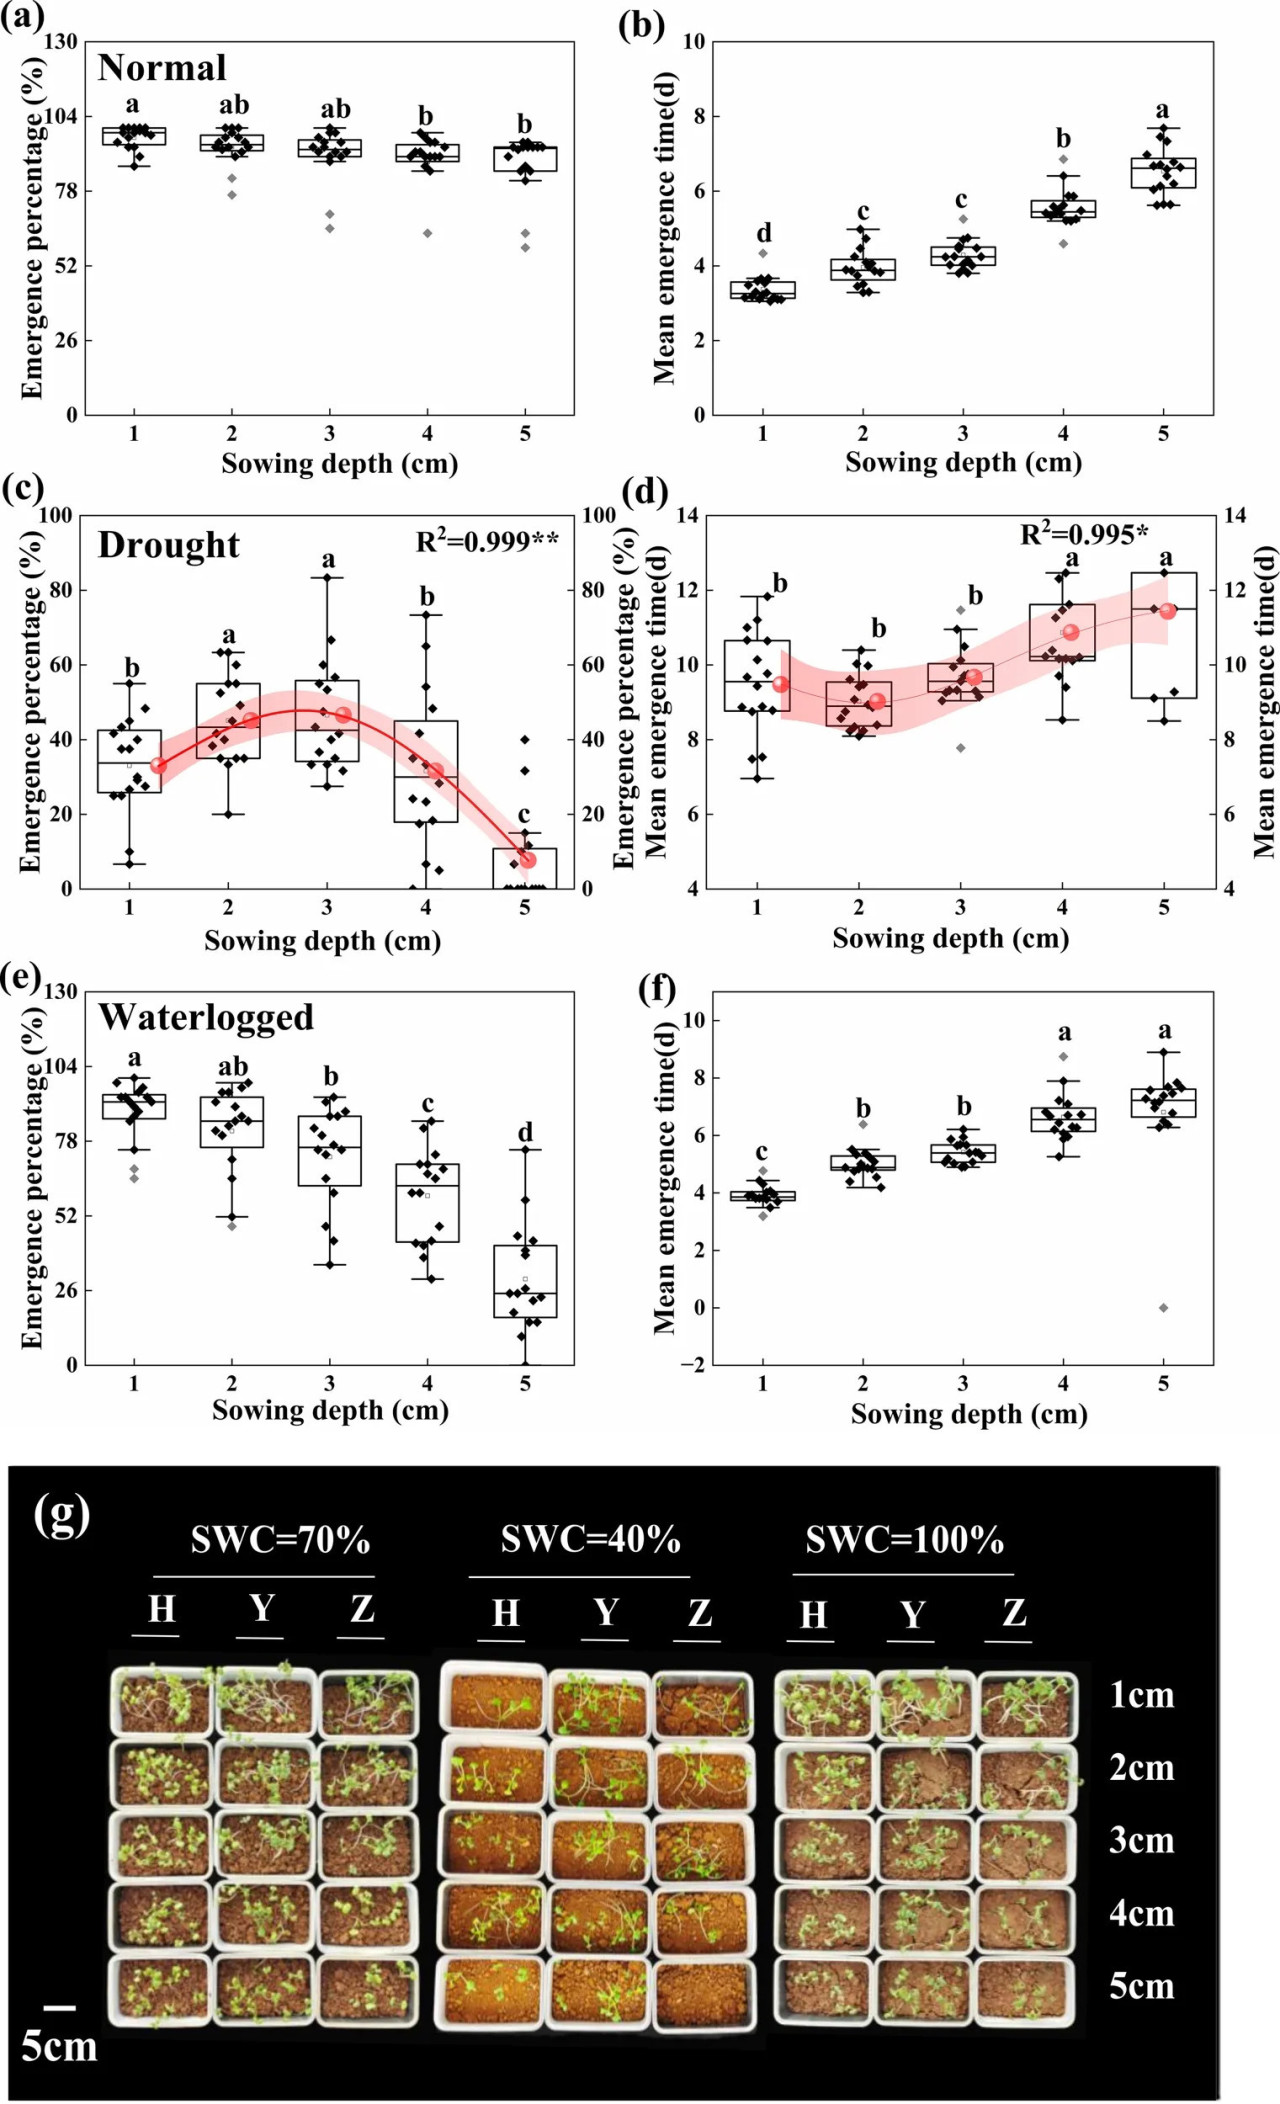
Рисунок 5 Способность к всхожести проростков при различных глубинах посева при различном содержании влаги. Процент всхожести проростков и среднее время всхожести при пяти глубинах посева (1, 2, 3, 4 и 5 см) в условиях (a, b) засухи (СПВ = 40% ± 5%), (c, d) нормального увлажнения (СПВ = 70% ± 5%) и (e, f) переувлажнения (СПВ = 100% ± 5%) соответственно. (g) Всхожесть и рост проростков при трёх водных условиях. ПВ и ВВ проростков всех сортов при пяти глубинах посева оценивали с помощью анализа подбора кривых в условиях засухи. R2 представляет корреляцию уравнения, а звёздочки указывают на значимые различия (*p < 0,05; **p < 0,01). Малые буквы обозначают значимые различия на уровне p < 0,05 согласно тесту множественных сравнений Дункана. H — Huayouza62; Y — Huayou2101; Z — Zhongshuang11.
В условиях стресса от засухи всхожесть начиналась через 5–7 дней после посева для пяти глубин, при этом ПВ проростков достигал максимума примерно через 15 дней для Г1–Г4 и 20 дней для Г5 (Дополнительный рисунок 3d). С увеличением глубины посева как ПВ, так и ИВ проростков сначала увеличивались, а затем снижались, с максимумом при Г3 и Г2, тогда как наименьшее СВВ было при Г2, без значимых различий (p = 0,207) между Г1, Г2 и Г3. Нелинейный фитинг показал, что ПВ, ИВ и СВВ достигнут максимальных значений при глубинах посева 2,5, 2,5 и 2 см. Однако ПВ и ИВ при Г2 и Г3 были значительно выше (p ≤ 0,020), чем при Г1, при этом ПВ увеличился на 36,6% при Г2 и на 41% при Г3 (Рисунки 5c, d; Дополнительный рисунок 3e). КС проростков также снижалось с увеличением глубины посева (Рисунок 5g; Дополнительный рисунок 3f).
В условиях стресса от переувлажнения всхожесть начиналась через 3–5 дней после посева, при этом ПВ достигал максимума через 9–11 дней при всех пяти глубинах (Дополнительный рисунок 3g). С увеличением глубины посева ПВ проростков снижался, с резким падением, наблюдаемым при Г4 и Г5. Значимые различия в ПВ были обнаружены среди сортов при Г2–Г5, тогда как значимых различий не найдено между Г1 и Г3 у восьми сортов (Рисунок 5e). Более того, по сравнению с Г1 средний ИВ снизился на 43,0%, а СВВ задержалось на 1,5 дня при Г3, сопровождаясь снижением КС проростков (Рисунки 5f, g; Дополнительный рисунок 3h, i).
В целом, относительно высокий уровень стабильности почвенной влаги при Г3 способствовал всхожести проростков в условиях засухи и нормального увлажнения. В условиях стресса от переувлажнения ПВ при Г3 не имел значимых различий для половины сортов. Однако чрезмерно глубокий посев (Г5) был вреден для всхожести проростков при всех условиях. Хотя параметры роста растений в целом улучшались с увеличением глубины посева (Г1–Г5), наивысшая совокупная продуктивность по всхожести проростков и раннему росту наблюдалась при Г3 в условиях засухи и нормального увлажнения.
3.6 Интерактивные эффекты множественных факторов и состава семян на толерантность к глубокому посеву
В полевом эксперименте местоположение, год, СПВ, глубина посева и сорт все значительно влияли на всхожесть проростков и ранний рост. В частности, как год, так и глубина посева оказывали значительное влияние на все измеряемые показатели. Более того, эффекты взаимодействия год × СПВ и год × глубина посева также были значимыми для всех показателей. В горшечном эксперименте СПВ, глубина посева и сорт значительно влияли на ПВ, ИВ и СВВ проростков. Более того, двухфакторные взаимодействия (СПВ × глубина посева, СПВ × сорт, глубина посева × сорт), а также трёхфакторное взаимодействие (СПВ × глубина посева × сорт) были статистически значимыми для этих трёх показателей (Таблица 2).
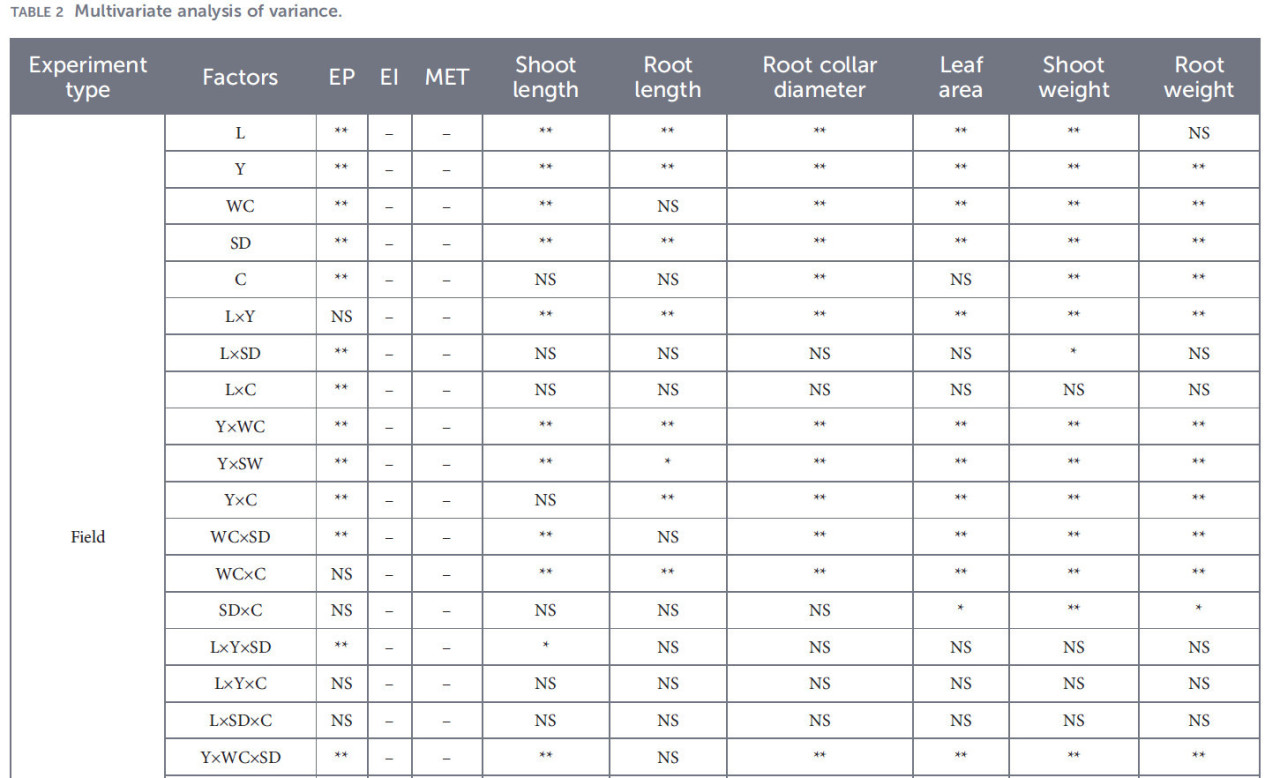
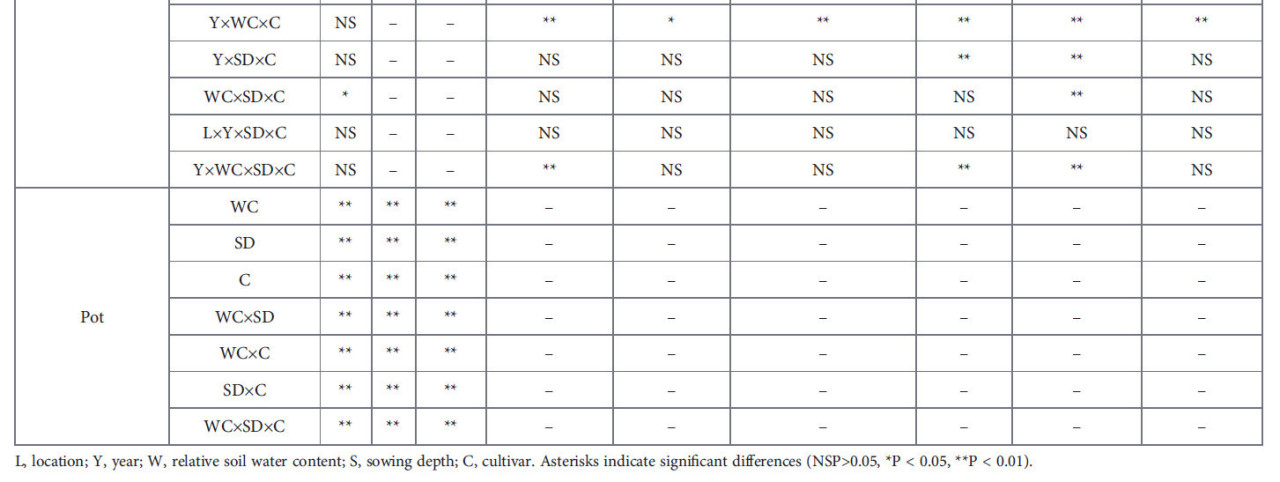
Таблица 2 Многомерный дисперсионный анализ.
Для дальнейшего изучения роли сорта в всхожести проростков при глубоком посеве анализировали взаимосвязи между составом семян 16 сортов рапса и оПВ, оИВ и оСВВ в условиях засухи, нормального увлажнения и переувлажнения в горшечном эксперименте. Результаты показали, что в условиях стресса от засухи как оПВ, так и оИВ проростков были значительно и положительно коррелированы с содержанием пальмитиновой и линоленовой кислот. В условиях переувлажнения оСВВ проростков было значительно и положительно коррелировано с содержанием пальмитиновой кислоты (Таблица 3).
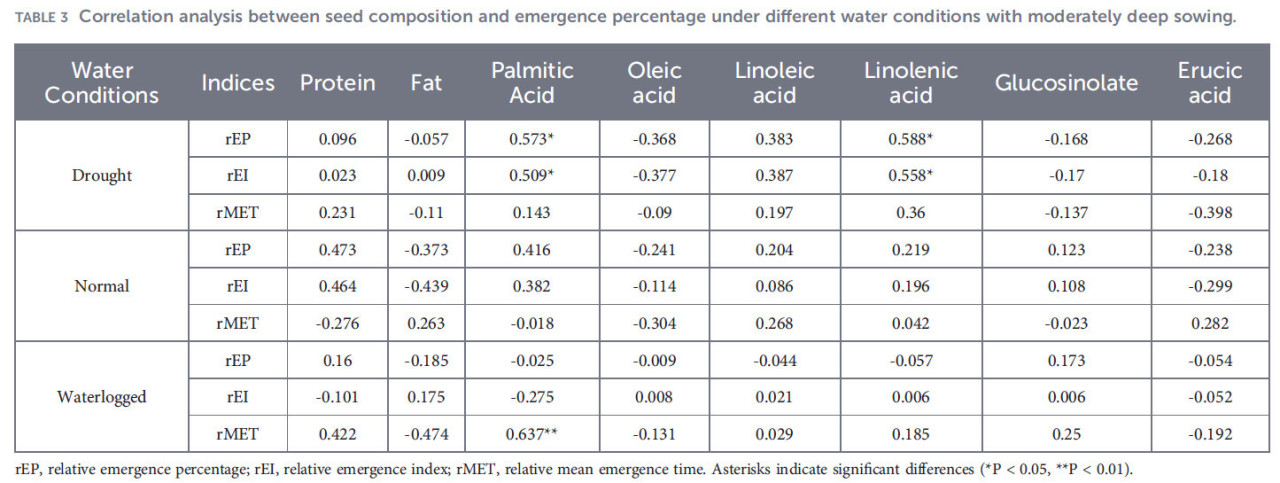
Таблица 3 Корреляционный анализ между составом семян и процентом всхожести при различных водных условиях с умеренно глубоким посевом.
3.7 Экзогенное применение глюкозинолата улучшает всхожесть проростков и рост растений при различных водных условиях с умеренно глубоким посевом
Для валидации нашей гипотезы мы оценили всхожесть проростков и рост растений при оптимальной глубине посева (Г3) в условиях засухи, нормального увлажнения и переувлажнения после праймизации семян ГС. В условиях нормального увлажнения значимых различий (p = 0,524) между обработками H2O и ГС не наблюдалось (Рисунки 6a, g). Напротив, в условиях стресса от засухи и переувлажнения ПВ проростков при Г3 с обработкой ГС значительно увеличился (p ≤ 0,048) по сравнению с Г1, на 46,4% и 63,0% соответственно (Рисунки 6b, c, g).
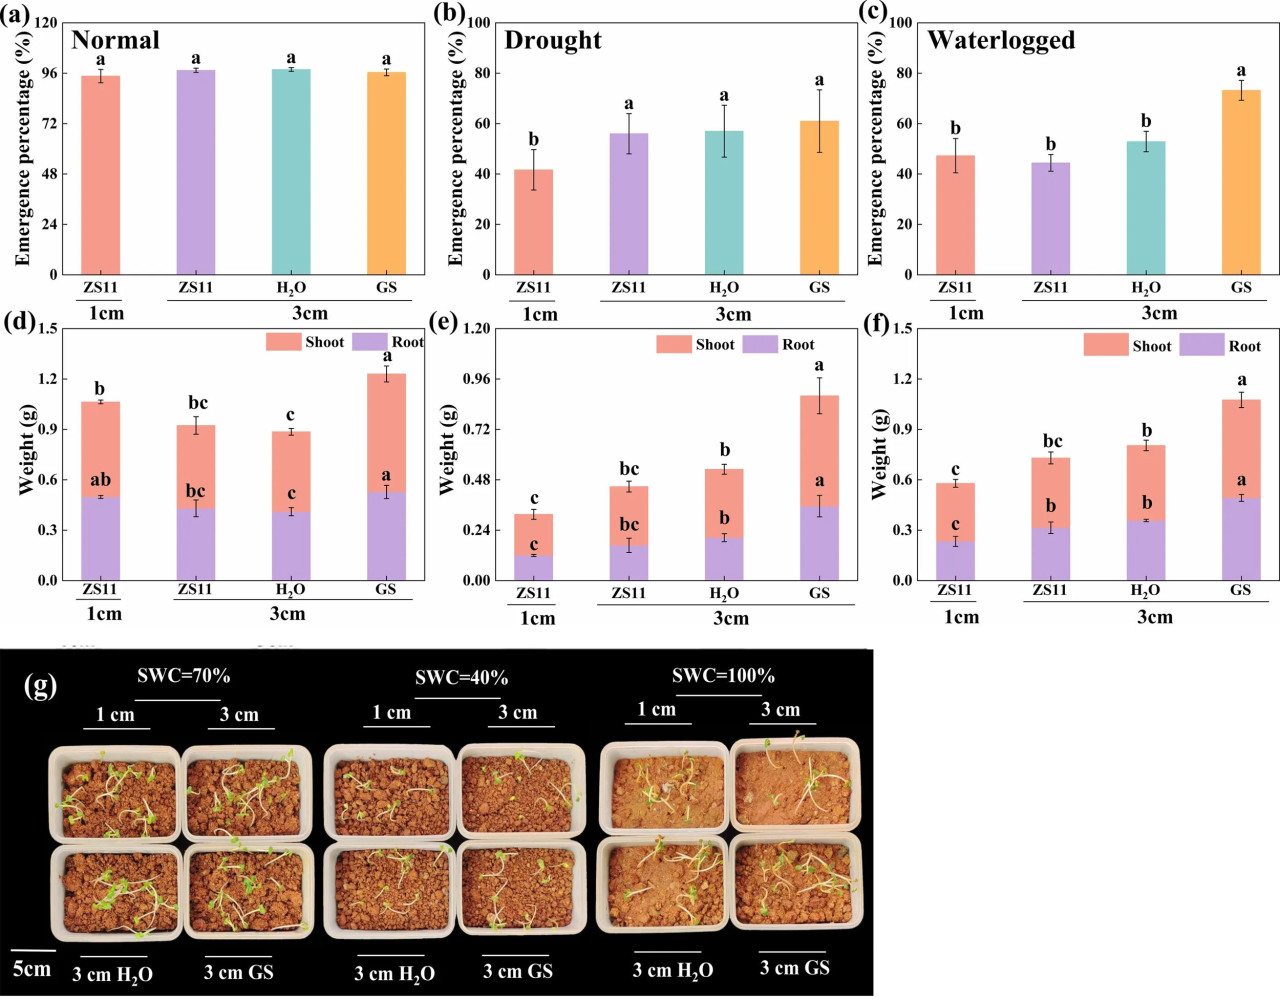
Рисунок 6 Экзогенное применение ГС улучшает всхожесть проростков и рост растений при различных водных условиях с умеренно глубоким посевом. Процент всхожести проростков и сухая масса побегов и корней в условиях (a, d) нормального увлажнения, (b, e) засухи и (c, f) переувлажнения при глубинах посева 1 и 3 см после праймизации семян ГС соответственно. (g) Всхожесть проростков при трёх водных условиях после праймизации семян ГС. Столбцы представляют ± стандартное отклонение повторностей. Малые буквы обозначают значимые различия на уровне p < 0,05 согласно тесту множественных сравнений Дункана. ZS11 — необработанные семена; H2O — дважды дистиллированная вода; ГС — глюкозинолат.
Что касается роста растений при Г3 с обработкой ГС по сравнению с Г1, в условиях нормального увлажнения значимых различий по длине корня, сухой массе корней и диаметру корневой шейки не было (p ≥ 0,050), тогда как все остальные показатели были значительно выше (p ≤ 0,036), с увеличением на 15,1% (высота растений), 30,1% (площадь листьев) и 24,2% (сухая масса побегов) (Рисунок 6d; Дополнительный рисунок 4a–c). В условиях стресса от засухи все показатели были значительно улучшены (p ≤ 0,022), показывая увеличение на 12,2% (длина корня), 43,8% (диаметр корневой шейки), 195,4% (сухая масса корней), 24,8% (высота растений), 172,6% (площадь листьев) и 168,8% (сухая масса побегов) (Рисунки 6e, Дополнительный рисунок 4d–f). В условиях стресса от переувлажнения длина корня не показала значимых различий (p = 0,167), но все остальные показатели были значительно увеличены (p ≤ 0,003), с улучшениями на 29,5% (диаметр корневой шейки), 111,0% (сухая масса корней), 24,3% (высота растений), 85,1% (площадь листьев) и 68,8% (сухая масса побегов) (Рисунок 6f; Дополнительный рисунок 4g–i).
4 Обсуждение
4.1 Умеренно глубокий посев является ключевым фактором для улучшения стабильности всхожести проростков при различных водных условиях
Доступность воды является критическим фактором жизнеспособности семян. В нашем исследовании по сравнению с нормальной доступностью воды как засуха, так и переувлажнение снижали ПВ и ИВ проростков, одновременно удлиняя СВВ, что соответствует более ранним находкам (Llanes и др., 2016; Queiroz и др., 2019; Shen и др., 2020). Наши результаты подтверждают эту реакцию: с увеличением содержания почвенной влаги всхожесть проростков сначала возрастает, но затем резко снижается в условиях переувлажнения (Khaeim и др., 2022).
Предыдущие исследования продемонстрировали, что влажность поверхностной почвы характеризуется значительной вариабельностью, и глубокий посев в условиях засухи является эффективной стратегией для стимулирования прорастания семян и укоренения проростков (Cheng и др., 2025). Наши результаты показывают, что в горшечном эксперименте с увеличением глубины посева наблюдалось первоначальное увеличение ПВ и ИВ проростков с последующим снижением, при этом СВВ показывало обратную картину. При 2,5 см как ПВ, так и ИВ достигали максимума, тогда как СВВ достигало минимума. Между тем, в полевом эксперименте ПВ проростков был значительно выше при Г3, чем при Г1, тогда как значимых различий между Г1 и Г5 не наблюдалось, что указывает на то, что чрезмерно глубокий посев также вреден для всхожести проростков (Cheng и др., 2025; Kanno и др., 2025). Снижение доступности O2 с увеличением глубины почвы вероятно способствует недостаточной активации энергетических резервов во время прорастания семян и раннего роста проростков (Conlin and Driessche, 2000), тем самым увеличивая риск гибели проростков после истощения доступных источников энергии (Li и др., 2020). Аналогично, в условиях нормального увлажнения ПВ проростков в поле сначала увеличивался, а затем снижался. Следовательно, даже когда СПВ в слое 1–10 см составляло 60%–90%, оно всё ещё может быть недостаточным для удовлетворения потребности во влаге для прорастания мелкозаглублённых семян (Padilla and Pugnaire, 2007; Pinto и др., 2016).
Глубокий посев вреден для всхожести и роста проростков в условиях переувлажнения (Kanno и др., 2025). В нашем исследовании как ПВ, так и ИВ снижались, тогда как ВВ увеличивалось с увеличением глубины посева. Тем не менее, существовала значительная вариация среди сортов: для половины из 16 сортов ПВ проростков не показал значимых различий между Г3 и Г1. Эти результаты были валидированы в полевом эксперименте, хотя величина снижения ПВ с глубиной посева в условиях стресса от переувлажнения была менее выраженной, чем в горшечном эксперименте. Это может быть связано с рыхлой структурой почвы и улучшенной аэрацией, а также с большей вентиляцией в результате возврата соломы, что смягчает неблагоприятные эффекты механического сопротивления почвы на всхожесть проростков (Özmerzi и др., 2002; Zheng и др., 2019). Это наблюдение согласуется с представлением о том, что генетический фон играет критическую роль в определении толерантности проростков в условиях стресса (Pan и др., 2023; Sohail и др., 2025).
Более того, наш корреляционный анализ показывает, что содержание пальмитиновой и линоленовой кислот в семенах положительно влияет на всхожесть при более глубоком посеве в условиях засухи, связывая состав жирных кислот с ранней устойчивостью к стрессу (Bai и др., 2024). Растения часто увеличивают ненасыщенность жирных кислот при абиотическом стрессе, особенно линоленовой кислоты (He and Ding, 2020). α-Линоленовая кислота улучшает прорастание и рост проростков в условиях засухи путём модуляции активности α-амилазы и ремоделирования подвижности клеточной мембраны (Li и др., 2018). Пальмитиновая кислота вносит вклад в структуру фосфолипидов и полярность мембран, но, по-видимому, имеет ограниченные прямые роли в толерантности к стрессу (Zhao and Qin, 2005; Zhukov, 2015). Примечательно, что некоторые сорта с высоким содержанием линоленовой кислоты не показали улучшения всхожести, что указывает на то, что одного состава жирных кислот недостаточно для придания толерантности к стрессу. Эта вариабельность вероятно отражает различия в других признаках, таких как размер семян, антиоксидантная способность или эффективность мобилизации резервов (Pan и др., 2021; Wiraguna, 2022), которые взаимодействуют с профилями жирных кислот для определения общей устойчивости. С точки зрения селекции, отбор на высокое содержание линоленовой кислоты может принести пользу только определённым генетическим фонам. Поэтому линоленовая кислота может служить ценным индикатором для улучшения толерантности к глубокому посеву в условиях ограниченной влаги, но она должна быть интегрирована с другими дополнительными признаками в целостной стратегии отбора.
В целом, глубина посева 3 см обычно рекомендуется как оптимальная для достижения надёжной жизнеспособности проростков рапса при различных водных условиях. Хотя некоторые исследования предполагали, что 1 см является оптимальной глубиной посева, эта рекомендация в первую очередь применима к системам пересадки и непригодна для прямо сеяного рапса, поскольку мелкий посев делает семена уязвимыми к быстрым колебаниям влажности поверхностной почвы, особенно в условиях засухи (Harker и др., 2012; Gesch и др., 2017). Эти результаты информируют агрономические практики для оптимизации всхожести проростков в различных режимах почвенной влаги.
4.2 Умеренно глубокий посев способствует росту растений рапса
Взаимодействие между ранним статусом роста и экологическими условиями имеет значительную важность для моделирования роста культур и урожайности в экстремальных климатических сценариях (Bao и др., 2025). Хорошо развитая корневая система благоприятна для роста растений, повышая способность поглощать воду и питательные вещества (Asch и др., 2005; Hodge и др., 2009) и снижая риск полегания (Zuo и др., 2017). В условиях глубокого посева всхожесть проростков обусловлена быстрым удлинением гипокотиля, но сопровождается более медленным ростом корней, что приводит к значительному снижению раннего соотношения корень/стебель (КС) проростков. Хотя проростки могут пытаться стимулировать рост корней в ответ на неблагоприятный водный стресс, развитие корней часто подавляется в глубоко засеянных средах, что приводит к слабому раннему росту проростков (Grossnickle, 2005).
Интересно, что рост растений рапса стимулировался на стадии восьми листьев с увеличением глубины посева. Длина побега, диаметр корневой шейки, площадь листьев, а также сухая масса побегов и корней были больше при Г3, чем при Г1. Этот результат согласуется с предыдущими исследованиями, показывающими, что рост рапса сначала увеличивался, а затем снижался с увеличением глубины посева, при этом умеренно глубокий посев улучшал рост и жизнеспособность растений в засушливых регионах (Yagmur and Kaydan, 2009; Cheng и др., 2016). Хотя ПВ проростков при глубоком посеве немного задерживается по сравнению с мелким посевом, что приводит к снижению роста проростков и накопления сухого вещества на стадии удлинения стебля, начало самозатенения также, по-видимому, задерживается после появления всходов. Эта задержка может смягчить внутривидовую конкуренцию среди растений рапса, тем самым компенсируя недостатки раннего роста проростков (Zimmermann и др., 2010). Эффект компенсации, однако, не может компенсировать ущерб, вызванный чрезмерно глубоким посевом (Aikins and Afuakwa, 2008). В нашем исследовании небольшая разница в длине корня наблюдалась между Г1 и Г2, возможно, из-за необратимого повреждения кончика корня, вызванного глубоким посевом (Koyama и др., 2001). Тем не менее, корневые системы, сформированные в условиях более глубокого посева, лучше приспособлены получать воду и питательные вещества из более глубоких слоёв почвы, что в конечном итоге может стимулировать рост и развитие корней (Cheng и др., 2020). Действительно, как диаметр корневой шейки, так и сухая масса корней были значительно выше при Г3, чем при Г1, что указывает на то, что глубокий посев может стимулировать радиальное расширение корней и образование боковых корней (Cao и др., 2015). Эти результаты свидетельствуют о том, что хотя глубокий посев временно подавляет раннее развитие корней проростков, он благоприятен для последующего роста растений.
4.3 Экзогенное применение ГС улучшает толерантность к стрессу во время всхожести проростков и роста растений
Образцы с высоким содержанием ГС или праймизация семян ГС улучшают прорастание семян в условиях засухи (Ai и др., 2024). Аналогично, после обработки ГС ПВ проростков значительно увеличился при Г3 в условиях засухи и переувлажнения. Кроме того, экзогенное применение ГС стимулировало рост растений в условиях засухи, нормального увлажнения и переувлажнения в сочетании с глубоким посевом.
Исследования показали, что растения в условиях стресса от засухи и переувлажнения накапливают более высокие уровни ГС, что может способствовать улучшению клеточной осморегуляции (Schreiner и др., 2009; Brazel и др., 2021). Более того, абиотический стресс индуцирует релокализацию ГС из вакуоли в цитозоль, тем самым увеличивая его доступность для гидролиза мирозиназами. Продукты гидролиза ГС вызывают ингибирование ионных каналов и закрытие устьиц, предотвращая потерю воды (Zhao и др., 2008). Также сообщалось, что ГС увеличивает активность антиоксидантных ферментов и повышает антиоксидантную способность (Gantait и др., 2024). Более того, экзогенный ГС влияет на накопление биомассы во время роста растений и, по-видимому, связан с накоплением сахарозы (Francisco и др., 2016). ГС и их продукты деградации не только действуют непосредственно на растение, но и активно модулируют микробную среду ризосферы (Siebers и др., 2018), подобно эффектам нитрата и швертманнита (Chen и др., 2025).
Однако следует отметить, что хотя экзогенное применение ГС продемонстрировало положительные эффекты на прорастание семян и рост растений, лежащие в основе физиологические и молекулярные механизмы остаются недостаточно обоснованными прямыми экспериментальными доказательствами. Следовательно, объяснения относительно опосредованной ГС модуляции осморегуляции, метаболизма гормонов, антиоксидантных систем или микробных сообществ ризосферы следует рассматривать как предполагаемые механизмы, требующие дальнейшего исследования. На данном этапе более осторожная интерпретация состоит в том, что обработка ГС связана с повышенной толерантностью к стрессу и улучшенным ростом, тогда как точные механизмы действия требуют более глубокого механистического изучения.
4.4 Регулирование глубины посева в производстве рапса
Точный контроль глубины посева является ключевым подходом к улучшению жизнеспособности проростков и укоренения культуры (Masilamani и др., 2023). Обычно считается, что мелкосемянные виды с ограниченными энергетическими резервами, такие как рапс, подходят для мелкого посева (1 см), хотя это часто может приводить к неравномерной всхожести проростков, большим потерям при посеве и более высоким производственным затратам (Håkansson и др., 2013). Наше исследование предоставляет первые доказательства того, что умеренно глубокий посев (3 см) может обеспечить оптимальную всхожесть проростков как в нормальных, так и в засушливых условиях. Однако в условиях стресса от переувлажнения различия в всхожести проростков среди сортов были заметно усилены при больших глубинах посева. Hosseini и др. (2009) аналогично сообщили, что всхожесть проростков, время начала появления семян и ранний рост проростков при различных условиях почвенной влаги все были подвержены влиянию генотипа семян (Hosseini и др., 2009). Поэтому скрининг сортов рапса на их способность поддерживать высокий ПВ при умеренно глубоком посеве в сочетании со стрессом от переувлажнения может повысить толерантность семян к водному стрессу (Xu и др., 2011; Nabloussi и др., 2019; Ahmad и др., 2022). Кроме того, наше исследование продемонстрировало, что праймизация семян ГС дополнительно улучшает всхожесть проростков и рост при различных водных условиях с умеренно глубоким посевом (3 см), особенно в условиях переувлажнения. По сравнению с 1 см, хотя затраты увеличились на 5,5%, ПВ проростков увеличился на 46,4% и 63,0% в условиях засухи и переувлажнения соответственно. Поэтому при одинаковых условиях плотности общие затраты снизились на 27,9% и 35,3%. Эти результаты свидетельствуют о том, что интеграция умеренно глубокого посева с праймизацией семян ГС вероятно дополнительно повысит жизнеспособность проростков при различных водных условиях, одновременно снижая общие производственные затраты.
Механизация, наряду с точными и интеллектуальными методами производства, всё больше внедряется в сельскохозяйственное развитие. Ручные колышки широко использовались в полевом производстве для контроля глубины семян. Однако традиционные колышковые сеялки часто требуют много времени, трудоёмки и усугубляют уплотнение почвы, что увеличивает трудность всхожести проростков; поэтому они непригодны для мелкосемянных культур, таких как рапс (Bagautdinov и др., 2018; Agrawal, 2021). С развитием механизированного производства современные точные конусные сеялки были оптимизированы и широко внедрены для многих культур, при этом глубина посева и расстояние более точно контролируются чувствительными к давлению датчиками (Özmerzi и др., 2002; Romaneckas и др., 2022). Кроме того, применение технологии посева с беспилотных летательных аппаратов (БПЛА) минимизирует нарушение почвы, вызванное механизированными сеялками, и может снизить стоимость и время посева благодаря более низкому энергопотреблению и повышенной скорости посева (Yamunathangam и др., 2020; Qi и др., 2022). Однако контроль глубины посева остаётся плохо регулируемым с текущими системами БПЛА. Поэтому мы рекомендуем широкое внедрение умеренно глубокого посева для механизированного производства рапса с использованием точных конусных сеялок.
Физические свойства почвы в значительной степени влияют на качество посева, особенно на содержание почвенной влаги. В условиях избытка воды работа техники становится затруднительной, а равномерность глубины посева снижается. При дефиците воды семена с трудом впитывают достаточное количество влаги. Поэтому необходимо орошение или расчёт на осадки после посева; однако это может вызвать образование почвенной корки и уплотнение, дополнительно препятствуя появлению проростков (Obour и др., 2019). Мы предлагаем поддерживать относительное содержание почвенной влаги на уровне не менее 40% при использовании конусных сеялок для достижения умеренной глубины посева, обеспечивая как работоспособность техники, так и успешную всхожесть проростков. Кроме того, размер почвенных комков должен быть умеренно небольшим, поскольку крупные комки могут неблагоприятно влиять на глубину посева, всхожесть проростков и рост растений (Bai и др., 2024).
5 Заключение
Умеренно глубокий посев рапса является важной стратегией для улучшения водной адаптивности во время всхожести проростков и раннего роста. В горшечном эксперименте результаты показали, что ПВ проростков достигал максимума при глубине посева 3 см как в условиях засухи, так и в нормальных условиях. Для многих сортов значимых различий в ПВ проростков не наблюдалось между 1 и 3 см в условиях стресса от переувлажнения, хотя последующий рост растений был более энергичным при 3 см. Примечательно, что когда семена были праймизированы глюкозинолатом при глубине посева 3 см, как ПВ проростков, так и рост растений были улучшены по сравнению с 1 см в условиях засухи и переувлажнения. В заключение, глубина посева 3 см с экзогенным применением глюкозинолата благоприятна для жизнеспособности проростков и укоренения культуры для прямо сеяного рапса.
Дополнительный материал
Дополнительный материал к данной статье можно найти онлайн по адресу: https://www.frontiersin.org/articles/10.3389/fpls.2026.1752750/full#supplementary-material
Bai C, Lei Y, Batool M, El-Badri AM, Chang Y, Kuai J, Wang B, Zhao J, Xu Z, Anwar S, King GJ, Wang J and Zhou G (2026) Mitigation of soil water stress by moderately deep sowing and exogenous application of glucosinolates during the early seedling stage in rapeseed. Front. Plant Sci. 17:1752750. doi: 10.3389/fpls.2026.1752750
Перевод статьи «Mitigation of soil water stress by moderately deep sowing and exogenous application of glucosinolates during the early seedling stage in rapeseed» авторов Bai C, Lei Y, Batool M, El-Badri AM, Chang Y, Kuai J, Wang B, Zhao J, Xu Z, Anwar S, King GJ, Wang J and Zhou G, оригинал доступен по ссылке. Лицензия: CC BY. Изменения: переведено на русский язык
Фото: Designed by Freepik




Комментарии (0)